


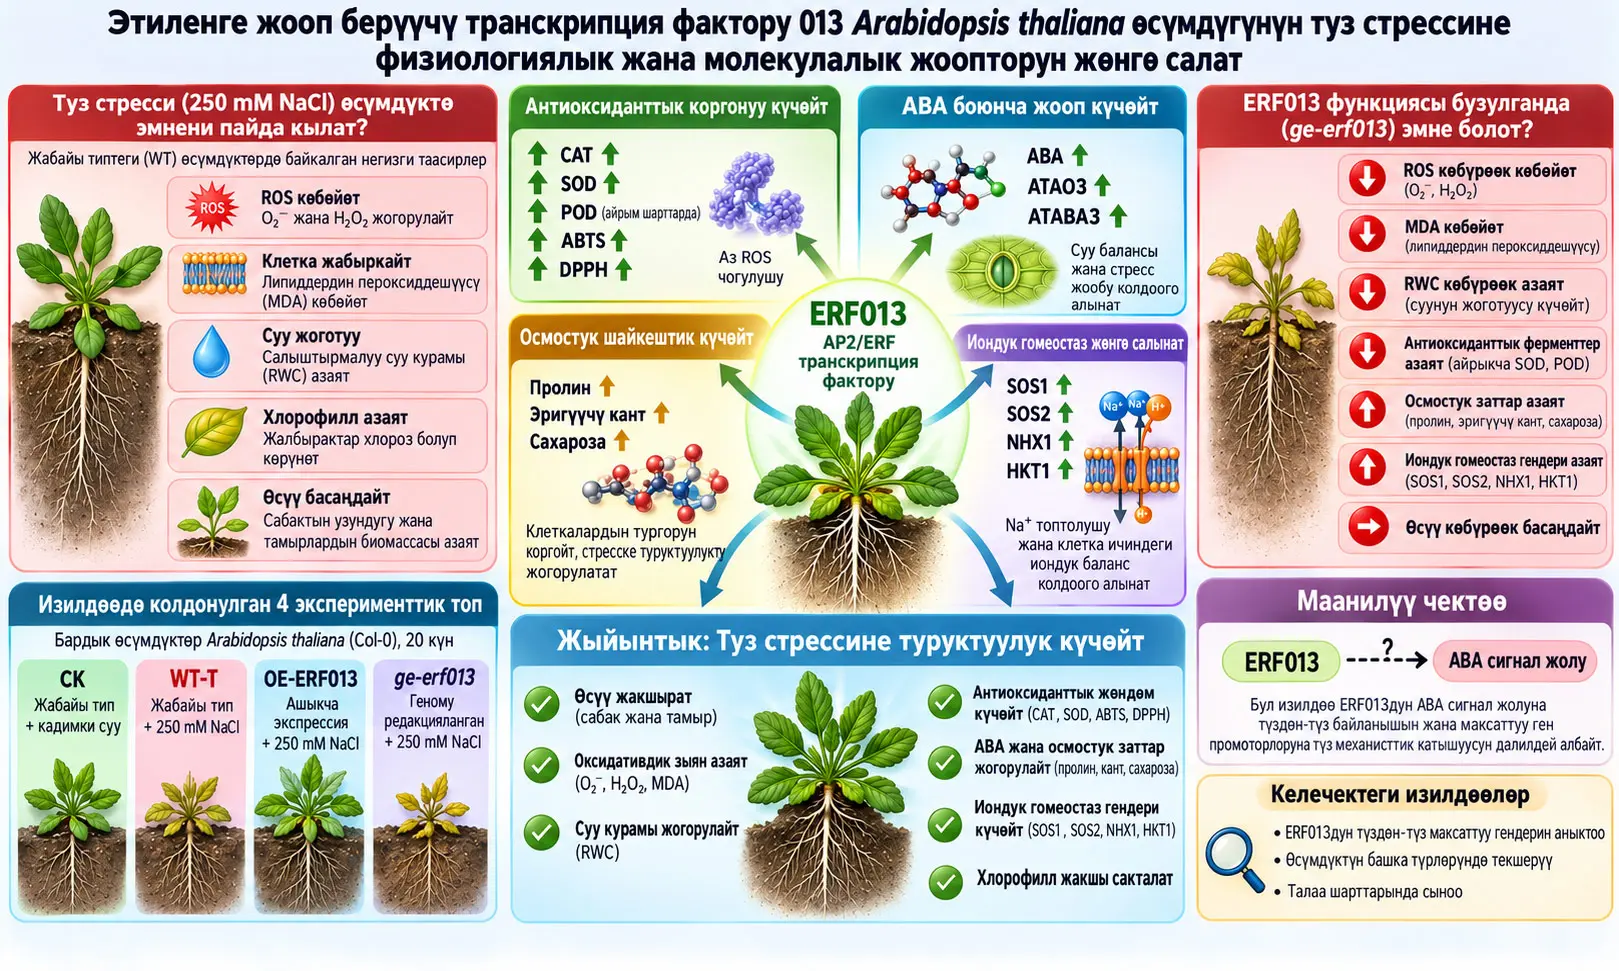
ERF013 — APETALA2/Ethylene Responsive Factor (AP2/ERF) транскрипция факторлорунун үй-бүлөсүнө кирген жана бул изилдөөдө Arabidopsis thaliana өсүмдүгүнүн туз стрессине физиологиялык, биохимиялык жана молекулалык жоопторун жөнгө салуучу фактор катары изилденген белок. Изилдөөчүлөр кадимки жапайы типтеги контролду (CK), 250 mM NaCl берилген жапайы типти (WT-T), ERF013ти ашыкча экспрессиялаган жана туз берилген линияны (OE-ERF013) жана ERF013 функциясы геномду редакциялоо аркылуу бузулган, туз берилген линияны (ge-erf013) салыштырышкан. Натыйжалар ERF013тин ашыкча экспрессиясы туз шартында өсүштүн сакталышы, реактивдүү кычкылтек түрлөрүнүн азайышы, антиоксиданттык коргонуунун күчөшү, салыштырмалуу суу курамынын сакталышы, ABA топтолушунун көбөйүшү, осмолиттердин топтолушу жана иондук гомеостазга байланыштуу гендердин жогорку экспрессиясы менен байланыштуу экенин көрсөтөт. Тескерисинче, ge-erf013 өсүмдүктөрү көптөгөн көрсөткүчтөр боюнча туз стрессинен оорураак зыян көргөн. Ошол эле учурда изилдөө ERF013 ABA сигналдашуу жолун же белгилүү бир максаттуу гендердин промоторлорун түздөн-түз байланып жөнгө саларын механистикалык түрдө далилдебейт.
Изилдөөдө колдонулган бардык өсүмдүктөр Arabidopsis thaliana Col-0 экотипине таандык. Өсүмдүктөр 16 саат жарык/8 саат караңгы фотопериоддо, 25 °C температурада жана %60 салыштырмалуу нымдуулукта өстүрүлгөн. Себүүдөн 20 күн өткөн соң туз стресси башталган; CK тобу кадимки суу ала берген, ал эми WT-T, OE-ERF013 жана ge-erf013 топторуна 250 mM туз эритмеси берилген. Көптөгөн физиологиялык, биохимиялык жана молекулалык талдоолор үчүн толук жетилген розетка жалбырактары туз берилгенден эки күн өткөн соң, болжол менен саат 10.00-де чогултулуп, суюк азотто тоңдурулуп, −80 °Cде сакталган.
Өсүү натыйжаларында OE-ERF013 өсүмдүктөрүнүн өркүнүнүн жаңы массасы WT-Tге салыштырмалуу болжол менен %17, тамырдын жаңы массасы болжол менен %100 жогору болгон. OE-ERF013 тамырынын узундугу WT-Tге салыштырмалуу болжол менен %6 жогору болсо, ge-erf013 тамырынын узундугу WT-Tге салыштырмалуу %21 төмөн болгон. Кызыгы, WT-T тамырынын узундугу CKдан болжол менен %15 жогору өлчөнгөн. Авторлор муну “туз өсүүнү күчөттү” деп чечмелешпейт; туз берүү өнүп чыккандан 20 күн өткөн соң, тамыр системасы олуттуу калыптанып калгандан кийин башталгандыктан, өлчөнгөн узундук стресс алдындагы жана стресстен кийинки өсүүнү бирге чагылдырышы жана мүмкүн болгон тамыр архитектурасынын ыңгайлашуусу менен байланыштуу болушу мүмкүн экенин белгилешет.
Оксидативдик стресс өлчөөлөрүндө WT-T өсүмдүктөрүндө супероксид (O2−) CKга салыштырмалуу %62, суутек пероксиди (H2O2) %134 көбөйгөн. ge-erf013 өсүмдүктөрүндө өсүштөр тиешелүүлүгүнө жараша %122 жана %193 болгон. OE-ERF013 өсүмдүктөрүндө болсо O2− WT-Tге салыштырмалуу %34, H2O2 %64 төмөн болгон. NBT боёосунда OE-ERF013 жалбырактарындагы алсызыраак көк түс да супероксиддин аз топтолушуна шайкеш келет.
ERF013тин ашыкча экспрессиясы клеткалык бүтүндүктүн сакталышы менен да байланыштуу болгон. Туз стрессинде жалбырактын салыштырмалуу суу курамы CKга салыштырмалуу WT-Tде %27, ge-erf013те %39 азайса, OE-ERF013те төмөндөө болгону %15 деңгээлде болгон. OE-ERF013тин салыштырмалуу суу курамы WT-Tден %16 жогору болгон. Электролит агып чыгышы WT-Tде CKга салыштырмалуу %101, ge-erf013те %126 көбөйсө, OE-ERF013те төмөн бойдон калган.
Антиоксиданттык системада OE-ERF013 өсүмдүктөрүнүн каталаза (CAT) активдүүлүгү WT-Tден болжол менен %55, супероксид дисмутаза (SOD) активдүүлүгү %44 жогору болгон. ABTS менен бааланган жалпы антиоксиданттык активдүүлүк WT-Tге салыштырмалуу %67, DPPH радикалын тазалоо активдүүлүгү %62 жогору болгон. ge-erf013 линиясында болсо малондиальдегид (MDA) WT-Tге салыштырмалуу %47 көбөйүп, липиддердин көбүрөөк пероксидациясын көрсөткөн.
Молекулалык деңгээлде OE-ERF013 өсүмдүктөрү иондук гомеостазга байланыштуу SOS1, SOS2, NHX1 жана HKT1 гендеринде күчтүү экспрессия өсүшүн көрсөткөн. Мисалы, NHX1 транскриптинин деңгээли WT-Tде CKга салыштырмалуу %260 көбөйсө, OE-ERF013те CK деңгээлинен болжол менен %765 жогору экени билдирилген. SOS2 экспрессиясы OE-ERF013те WT-Tге салыштырмалуу %172 жогоруласа, ge-erf013те WT-Tге салыштырмалуу %85 азайган.
ABA жообунда OE-ERF013 өсүмдүктөрүнүн эндогендик абсциз кислотасынын деңгээли CK деңгээлинин %386-ына жеткен. Бул жерде айтылганы “%386 көбөйүү” эмес, CK деңгээлинин %386-ы дегенди билдирет. Мындан тышкары ATAO3 жана ATABA3 гендери OE-ERF013 өсүмдүктөрүндө күчтүү жогорулаган. Ошентсе да авторлор ERF013тин ABA сигнал жолуна түз механистикалык салымын бул экспериментте ырастабаганын ачык белгилешет.
Осмостук ыңгайлашуу жагынан OE-ERF013 өсүмдүктөрү WT-Tге салыштырмалуу %54 көбүрөөк пролин, %54 көбүрөөк жалпы эригич кант жана %33 көбүрөөк сахароза топтогон. ge-erf013 линиясында ошол эле салыштыруулар тиешелүүлүгүнө жараша %38, %23 жана %44 азайууну көрсөткөн. Туз шартында хлорофилл бардык генотиптерде азайган; WT-Tде %24, ge-erf013те %37 төмөндөгөн, OE-ERF013 болсо чектелүүрөөк азайууну көрсөткөн.
Изилдөө маселеси эмнеде?
Туздуулук өсүмдүктөрдө бир убакта эки негизги басымды жаратышы мүмкүн: осмостук стресс жана иондук уулуулук. Тышкы чөйрөдөгү туз концентрациясы көбөйгөндө өсүмдүктүн суу алышы кыйындайт; ошол эле учурда клетканын ичинде өзгөчө Na+ топтолушу метаболизмдик процесстерди бузушу мүмкүн. Бул жагдай реактивдүү кычкылтек түрлөрүнүн пайда болушун, мембрананын бузулушун, белок жана нуклеин кислоталарынын зыянга учурашын, суу жоготууну жана өсүштүн басаңдашын күчөтүшү мүмкүн.
AP2/ERF үй-бүлөсүндөгү көптөгөн транскрипция факторлору кургакчылык, туздуулук жана оксидативдик стресс жоопторунда кызмат аткарары белгилүү болчу. Бирок ERF013тин туз стрессиндеги өзгөчө функциясы жетиштүү түшүндүрүлгөн эмес. Изилдөөчүлөр мурда ERF013 өсүүдө жана өнүгүүдө роль ойноорун көрсөтүшкөн; азыркы изилдөө болсо ERF013 антиоксиданттык коргонууну, ABAны, осмолиттердин топтолушун жана иондук гомеостазды бириктирүү аркылуу туз-стресс жообуна салым кошобу же жокпу, ошону текшерет.
ERF013 деген эмне жана бул изилдөөдө эмнени жөнгө салды?
ERF013 — AP2/ERF үй-бүлөсүнө кирген транскрипция фактору; бул изилдөөдө ERF013тин жогорку экспрессиясы туз стрессинде ROSтун азыраак топтолушу, күчтүүрөөк антиоксиданттык мүмкүнчүлүк, суунун жакшыраак абалы, көбөйгөн ABA жана осмолит деңгээлдери, ион-гомеостаз гендеринин жогору экспрессиясы жана жакшыраак өсүү көрсөткүчтөрү менен бирге байкалган. ERF013 функциясы бузулган ge-erf013 линиясы болсо жалпысынан карама-каршы багыттагы стресс фенотибин көрсөткөн.
Транскрипция фактору эмнени билдирет?
Транскрипция фактору — клеткада белгилүү гендер канча RNA өндүрөрүн жөнгө салууга катышкан белок. AP2/ERF үй-бүлөсүнүн мүчөлөрү ар кандай максаттуу промотор аймактарындагы cis-жөнгө салуучу тизмектер менен өз ара аракеттениши мүмкүн. Бирок жалпы ERF биологиясы менен бул изилдөөдө ERF013 үчүн түз көрсөтүлгөн механизмди ажыратып кароо керек: бул эксперимент ERF013 кайсы промоторлорго түз байланышаарын өлчөгөн эмес.
ERF013 түздөн-түз SOS1, SOS2, NHX1 же HKT1 гендерине байланыштыбы?
Бул изилдөө муну көрсөткөн эмес. qRT-PCR бул гендердин транскрипт деңгээлдери OE-ERF013 жана ge-erf013 фонунда кандай өзгөргөнүн гана көрсөтөт. Гендин экспрессиясы ERF013 бар кезде жогорулашы өзүнчө ERF013 ошол гендин промоторуна физикалык жактан түз байланышты дегенди далилдебейт.
Төрт эксперимент тобу эмнени билдирет?
| Топ | Генетикалык түзүлүш | Туз берүү | Илимий ролу |
|---|---|---|---|
| CK | Жапайы тип Col-0 | Кадимки суу | Стресссиз негизги контроль |
| WT-T | Жапайы тип Col-0 | 250 mM NaCl | Туз стрессинин жапайы типтеги таасирин көрсөтүүчү салыштыруу |
| OE-ERF013 | ERF013 ашыкча экспрессия линиясы | 250 mM NaCl | ERF013 экспрессиясынын көбөйүшүнүн туз шартындагы таасирин текшерет |
| ge-erf013 | ERF013 геном-редакцияланган линия | 250 mM NaCl | ERF013 функциясын жоготуунун туз шартындагы таасирин текшерет |
OE-ERF013 жана ge-erf013 үчүн өзүнчө тузсуз дал келген топтор бул эксперименттик дизайнда билдирилген эмес. Ошондуктан азыркы эксперименттеги эң күчтүү салыштыруу — генотиптердин туз стресси шартындагы жүрүм-туруму.
Реактивдүү кычкылтек түрлөрү эмне үчүн маанилүү?
Реактивдүү кычкылтек түрлөрү (ROS), өзгөчө O2− жана H2O2, туз стрессинде көбөйүшү мүмкүн болгон оксидативдүү молекулалар. Көзөмөлдөнгөн деңгээлде алар клеткалык сигнал берүү функцияларына ээ болушу мүмкүн; бирок ашыкча топтолуу липиддерди, белокторду жана нуклеин кислоталарын кычкылдандырып, мембрана бүтүндүгүн жана метаболизмди бузушу мүмкүн.
SOD, CAT жана POD эмнени көрсөтөт?
SOD супероксидден келип чыккан оксидативдик жүктү көзөмөлдөөгө, CAT суутек пероксидин жок кылууга жана POD пероксиддерди детоксикациялоого байланыштуу реакцияларга катышкан антиоксиданттык ферменттер. Бул изилдөө бул ферменттердин активдүүлүгүн түз өлчөп, ERF013 генотиптеринин арасында салыштырган.
OE-ERF013те CAT активдүүлүгү WT-Tден болжол менен %55, SOD активдүүлүгү %44 жогору. POD боюнча WT-T жана OE-ERF013 менен CK ортосунда маанилүү айырма табылган эмес; ge-erf013 линиясында болсо CKга салыштырмалуу болжол менен %60 азайуу байкалган. Бул натыйжа POD жалпы антиоксиданттык жооп учурунда башка ферменттер менен бирдей өлчөмдө өзгөрбөгөнүн да көрсөтөт.
NBT боёосу эмнени көрсөтөт?
Nitro blue tetrazolium (NBT) боёосу ткандардагы супероксид топтолушун визуалдык баалоо үчүн колдонулган ыкма. Изилдөөдө жалбырактар %0.1 NBT ичинде 25 °Cде караңгыда 16 саат кармалган. Андан кийин хлорофилл спирт-лактофенол менен алынган. Коюураак көк түс супероксиддин көбүрөөк топтолушуна шайкеш. Ошондуктан NBT сүрөтү сандык O2− өлчөөсүн колдогон визуалдык далил; өзүнчө абсолюттук концентрация өлчөөсү эмес.
Жалбырактын Салыштырмалуу Суу Курамынын Формуласы Эмнени Өлчөйт?
Жалбырактын салыштырмалуу суу курамы (RWC) жалбырактын өлчөө учурундагы суу абалын толук суу менен каныккандагы потенциалдуу суу курамына салыштырып пайыз менен көрсөтөт; ошондуктан туз стрессинде өсүмдүк ткандарда сууну канчалык сактай аларын баалоочу физиологиялык көрсөткүч.
RWC формуласы
\(\displaystyle RWC(\%)=\frac{FW-DW}{TW-DW}\times100\)
1. Формула эмнени эсептейт? Жалбырактын учурдагы суу курамынын ткандын толук тургор абалында кармай ала турган жеткиликтүү суу көлөмүнө катышын.
2. Өзгөрмөлөр: \(FW\) жаңы масса; \(TW\) толук тургордон кийинки масса; \(DW\) кургаткандан кийинки кургак масса.
3. Бирдиктер: Үч масса бирдей бирдикте өлчөнөт. Катыш өлчөмсүз жана пайызга айландырылат.
4. Математикалык ролу: \(FW-DW\) өлчөө учурунда ткандын ичиндеги сууну; \(TW-DW\) болсо толук тургор абалында болушу мүмкүн болгон сууну билдирет.
5. Биологиялык мааниси: RWC жогору болсо, жалбырак суу абалын жакшыраак сактап жатат дегенди билдирет.
6. Изилдөөдөгү шарт: 5 mm жалбырак дисктеринин FWси өлчөнгөн; дисктер 10 mL таза сууда 3 саат кармалып TW, андан соң 70 °Cде 24 саат кургатылып DW аныкталган.
7. Натыйжа: OE-ERF013 туз шартында CKга салыштырмалуу болгону %15 RWC жоготсо, WT-T %27, ge-erf013 %39 жоготкон.
MDA эмнени өлчөйт?
Малондиальдегид (MDA) — липиддердин пероксидациясынын кеңири колдонулган көрсөткүчтөрүнүн бири. Клетка мембранасындагы липиддердин оксидативдик зыяны көбөйгөндө MDA деңгээли жогорулашы мүмкүн. Ошондуктан MDA бул жерде мембрана липиддеринин оксидативдик бузулушунун биохимиялык көрсөткүчү катары колдонулган.
MDA эсептөө формуласы
\(\displaystyle C=\frac{S_a}{S_v}\times D\)
\(C\) эсептелген MDA курамын/концентрациясын, \(S_a\) үлгүдө аныкталган MDA көлөмүн, \(S_v\) үлгү көлөмүн жана \(D\) суюлтуу факторун билдирет.
10 mg жалбырак тканы 300 µL lysis buffer ичинде даярдалып, 3 µL BHT кошулуп, 13.000 rpmде 10 мүнөт центрифугаланган жана 200 µL супернатант 600 µL TBA реагенти менен 95 °Cде бир саат инкубацияланган. Абсорбанс 532 nmде өлчөнгөн.
Электролит агып чыгышы кантип эсептелди?
\(\displaystyle Elektrolit\ Sızıntısı(\%)=\frac{EC_1}{EC_2}\times100\)
\(EC_1\) — болжол менен 100 mg жаңы жалбырак тканы 10 mL деионизацияланган сууда 32 °Cде эки саат кармалгандан кийинки эритменин баштапкы электр өткөрүмдүүлүгү. \(EC_2\) — ошол эле ткандар 120 °Cде 20 мүнөт автоклавдалып, клеткалардагы калган электролиттер толук бошотулгандан кийинки жалпы өткөрүмдүүлүк.
EC1/EC2 катышынын жогорулашы жалпы клеткалык иондордун чоңураак бөлүгү башында тышкы чөйрөгө агып чыкканын билдирет жана мембрана бүтүндүгүнүн көбүрөөк бузулушуна шайкеш келет.
ABTS радикалын тазалоо формуласы
\(\displaystyle ABTS\ Temizleme(\%)=\frac{A_c-A_s}{A_c}\times100\)
\(A_c\) контроль абсорбансы, \(A_s\) үлгү абсорбансы. Үлгү ABTS радикалын күчтүүрөөк нейтралдаштырса, абсорбанс төмөндөйт жана эсептелген тазалоо пайызы жогорулайт. ABTS•+ радикалы 7 mM ABTS менен 2.4 mM калий персульфатын тең көлөмдө аралаштырып, караңгыда 12 саат кармоо аркылуу даярдалган; өлчөө 734 nmде жүргүзүлгөн.
DPPH радикалын тазалоо формуласы
\(\displaystyle DPPH\ Temizleme(\%)=\left[1-\frac{A-A_0}{B-B_0}\right]\times100\)
\(A\) DPPH–үлгү аралашмасынын абсорбансы; \(A_0\) үлгү камтыган метанол blank; \(B\) DPPH контроль абсорбансы жана \(B_0\) жалгыз метанол абсорбансы. Алып салуу мүчөлөрү үлгүнүн өзүнүн оптикалык салымын жана эриткичтин фонун ажыратууга жардам берет. DPPH өлчөөсү 517 nmде, 25 °Cде жана караңгыда 30 мүнөт инкубациядан кийин жүргүзүлгөн.
2^-ΔΔCt Ыкмасы Ген Экспрессиясында Эмнени Билдирет?
\(2^{-\Delta\Delta Ct}\) ыкмасы qRT-PCRде максаттуу ген транскриптин адегенде референс генге, андан кийин контроль топко салыштырып нормалдаштырып, салыштырмалуу экспрессия өзгөрүшүн “fold change” катары билдирет; бул изилдөөдө референс ген actin болуп, статистикалык талдоолор үч көз карандысыз биологиялык кайталоодон алынган ΔCt маанилеринин үстүндө жүргүзүлгөн.
qRT-PCR кантип жүргүзүлдү?
Жалпы RNA RNeasy Plant Mini Kit менен бөлүнүп алынган. 2 µg тазаланган RNA cDNAга айландырылып; StepOne Plus Real-Time PCR системасы жана SYBR Green негизиндеги 2× Real-Time PCR Master Mix колдонулган. Максаттуу транскрипттер actin референс генине салыштырып нормалдаштырылган.
Булак колдонгон \(2^{-\Delta\Delta Ct}\) ыкмасынын стандарттык математикалык ачылышы окутуу максатында төмөнкүдөй көрсөтүлүшү мүмкүн:
\(\displaystyle \Delta Ct=Ct_{hedef}-Ct_{referans}\)
\(\displaystyle \Delta\Delta Ct=\Delta Ct_{örnek}-\Delta Ct_{kontrol}\)
\(\displaystyle Göreli\ ekspresyon=2^{-\Delta\Delta Ct}\)
Бул аралык теңдемелер изилдөөнүн жаңы табылгасы эмес; булакта аталган \(2^{-\Delta\Delta Ct}\) ыкмасынын математикалык ачылышы.
Ct — флуоресценция сигналы белгиленген босогодон өткөн PCR циклдеринин саны. Башка шарттар бирдей болгондо төмөн Ct баштапкы учурда максаттуу нуклеин кислотасы көбүрөөк болгонун көрсөтөт. Референс ген боюнча нормалдаштыруу үлгүлөр ортосундагы RNA/cDNA көлөмү сыяктуу техникалык айырмачылыктарды азайтууга жардам берет.
Иондук гомеостаз гендери эмне кылат?
SOS1 клетка мембранасындагы Na+/H+ алмашуу системалары менен байланышкан Na+ чыгаруу механизмдеринин; SOS2 SOS сигнал жолунун жөнгө салуучу компоненттеринин; NHX1 вакуолярдык Na+/H+ антипорту жана Na+ секвестрациясынын; HKT1 болсо Na+ ташылышын жөнгө салууга байланышкан гендердин бири. Бул изилдөөдө алардын транскрипт деңгээлдери өлчөнгөн; чыныгы клеткалык Na+ агымы же транспортер белок активдүүлүгү түз өлчөнгөн эмес.
| Ген | Салыштыруу | Булак табылгасы | Түшүндүрмө чеги |
|---|---|---|---|
| SOS1 | OE-ERF013 vs CK | %195 көбөйүү | Транскрипт деңгээли |
| SOS1 | ge-erf013 vs CK | %56 азайуу | Транскрипт деңгээли |
| SOS1 | OE-ERF013 vs WT-T | %73 көбөйүү; статистикалык жактан маанилүү эмес | Түз промотор байланышын көрсөтпөйт |
| SOS2 | OE-ERF013 vs WT-T | %172 көбөйүү | Транскрипт деңгээли |
| SOS2 | ge-erf013 vs WT-T | %85 азайуу | Транскрипт деңгээли |
| NHX1 | WT-T vs CK | %260 көбөйүү | Транскрипт деңгээли |
| NHX1 | OE-ERF013 vs CK | %765 көбөйүү | Транскрипт деңгээли |
| HKT1 | OE-ERF013 | WT-T жана CKга салыштырмалуу ачык жогорулаш | Булак тексти бул жерде так пайыз бербейт |
ABA деген эмне?
Абсциз кислотасы (ABA) — өсүмдүктөрдө кургакчылык жана туздуулук сыяктуу суу/осмостук стресс шарттарында маанилүү кызматтарды аткарган фитогормон. Стомалык жүрүм-турум, стресс гендери, иондук баланс жана осмолит метаболизми сыяктуу көптөгөн процесстер менен байланыштуу.
Изилдөөдө ABA туз берилгенден эки күн өткөн соң жаңы жалбырактарда коммерциялык Plant Abscisic Acid ELISA Kit менен өлчөнгөн. OE-ERF013 тобундагы ABA деңгээли CKнын %386-ына жеткен; ge-erf013 болсо CKдан %32 төмөн болгон.
ATAO3 жана ATABA3 эмнени көрсөтөт?
Изилдөө ATAO3тү ABA менен байланышкан/ABA-responsive ген, ATABA3тү ABA биосинтезине байланышкан ген катары карайт. OE-ERF013те ATAO3 WT-Tге салыштырмалуу %520 жогорулаган. ge-erf013те WT-Tге салыштырмалуу %76 азайуу болгон, бирок бул салыштыруу статистикалык жактан маанилүү эмес.
ATABA3 OE-ERF013те CKга салыштырмалуу %459 көбөйгөн. WT-Tде CKга салыштырмалуу болжол менен %100 көбөйүү билдирилген, бирок бул көбөйүү маанилүү эмес. OE-ERF013 WT-Tден %179 жогору, ge-erf013 болсо WT-Tден %84 төмөн ATABA3 экспрессиясын көрсөткөн.
Бул маалыматтар ERF013 менен ABA системасынын ортосунда күчтүү байланыш бар экенин колдойт; бирок авторлор өздөрүнүн чектөөлөр бөлүмүндө белгилегендей, ERF013тин ABA сигналына түз механистикалык салымы бул экспериментте ырасталган эмес.
Пролин жана эригич канттар эмне үчүн өлчөндү?
Пролин, эригич канттар жана сахароза — клетканын осмостук балансына салым кошо ала турган шайкеш эриген заттар. Туз стресси тышкы чөйрөнүн суу потенциалын төмөндөтсө, мындай метаболиттердин топтолушу клеткалык тургорду, белокторду жана мембраналарды сактоого жардам бере алат.
Пролин үчүн 300 mg жаңы жалбырак тканы %3 сульфосалицил кислотасында экстракцияланып, нингидрин реакциясы жүргүзүлүп, хромофор 520 nmде өлчөнгөн. Натыйжалар µg g−1 жаңы масса катары көрсөтүлгөн.
Жалпы эригич кант жана сахароза freeze-dried жалбырак тканынан %80 этанол менен экстракцияланып, HPLC менен өлчөнгөн. Bio-Rad Aminex 87C колонкасы (300 × 7.8 mm) колдонулган; мобилдик фаза таза суу, агым ылдамдыгы 0.6 mL мүнөт−1 деп белгиленген.
Хлорофилл кантип бааланды?
Хлорофилл курамы SPAD-502 Plus хлорофилл өлчөгүчү менен бааланган. Ар бир дарылоо тобунда беш жалбырактын апикалдык, ортоңку жана базалдык бөлүктөрүнөн көрсөткүчтөр алынып, орточо SPAD мааниси статистикалык талдоого киргизилген.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Эксперименттик түзүлүш
| Элемент | Булакта колдонулган ыкма |
|---|---|
| Өсүмдүк | Arabidopsis thaliana Col-0 |
| Өстүрүү | 16 саат жарык / 8 саат караңгы, 25 °C, %60 салыштырмалуу нымдуулук |
| Туз берүү убактысы | Себүүдөн 20 күн өткөн соң |
| Туз шарты | 250 mM NaCl |
| Негизги биохимиялык үлгү алуу | Туз берилгенден эки күн өткөн соң, болжол менен 10.00 |
| Үлгүнү сактоо | Суюк азотто тоңдуруу, −80 °C |
| Биологиялык кайталоо | 3 көз карандысыз биологиялык кайталоо |
| Статистика | Бир факторлуу ANOVA + Tukey көп салыштыруу |
| Отчет берүү | Орточо ± стандарттык четтөө |
| График программасы | GraphPad Prism 10 |
Өсүү жана тамыр натыйжалары
| Өлчөө | OE-ERF013 | ge-erf013 | Референс |
|---|---|---|---|
| Тамыр узундугу | %6 көбөйүү | %21 азайуу | WT-Tге салыштырмалуу |
| Өркүн жаңы массасы | болжол менен %17 көбөйүү | болжол менен %10 азайуу | WT-Tге салыштырмалуу |
| Тамыр жаңы массасы | болжол менен %100 көбөйүү | Төмөн | WT-Tге салыштырмалуу |
Булактын розетка сүрөттөрүндө жана тамыр сүрөттөрүндө WT-T жана ge-erf013 өсүмдүктөрүндө кичирээк розетка, хлороз жана өсүштүн басаңдашы көрүнгөн, ал эми OE-ERF013 өсүмдүктөрү жашыл түсүн жана жалпы өсүмдүк жандуулугун жакшыраак сактаган. Тамырларда OE-ERF013 күчтүүрөөк каптал тамыр өнүгүүсүн көрсөткөн.
Оксидативдик стресс жана клеткалык бүтүндүк
| Өлчөө | WT-T | OE-ERF013 | ge-erf013 |
|---|---|---|---|
| O₂⁻ | CKга салыштырмалуу %62 көбөйүү | WT-Tге салыштырмалуу %34 азайуу | CKга салыштырмалуу %122 көбөйүү |
| H₂O₂ | CKга салыштырмалуу %134 көбөйүү | WT-Tге салыштырмалуу %64 азайуу | CKга салыштырмалуу %193 көбөйүү |
| Электролит агып чыгышы | CKга салыштырмалуу %101 көбөйүү | WT-Tден маанилүү түрдө төмөн | CKга салыштырмалуу %126 көбөйүү |
| RWC | CKга салыштырмалуу %27 төмөндөө | CKга салыштырмалуу болгону %15 төмөндөө; WT-Tден %16 жогору | CKга салыштырмалуу %39 төмөндөө |
Антиоксиданттык коргонуу натыйжалары
| Көрсөткүч | OE-ERF013 табылгасы | ge-erf013 табылгасы |
|---|---|---|
| CAT | WT-Tден болжол менен %55 жогору | CKдан %23 төмөн |
| POD | CK менен маанилүү айырма жок | CKдан болжол менен %60 төмөн |
| SOD | WT-Tден %44 жогору | WT-Tден %26 төмөн; CKдан %54 төмөн |
| ABTS | WT-Tден %67 жогору; CK менен маанилүү айырма жок | Туз шартында азайган |
| DPPH | WT-Tден %62 жогору; CKдан %23 жогору | WT-Tден %16 төмөн |
| MDA | CKга жакын жана WT-Tден төмөн | WT-Tден %47 жогору |
ABA жана осмолит натыйжалары
| Өлчөө | OE-ERF013 | ge-erf013 | Референс |
|---|---|---|---|
| ABA | CK деңгээлинин %386-ы | CKдан %32 төмөн | CK |
| ATAO3 | %520 көбөйүү | %76 азайуу; маанилүү эмес | WT-T |
| ATABA3 | %179 көбөйүү | %84 азайуу | WT-T |
| Пролин | %54 көбөйүү | %38 азайуу | WT-T |
| Эригич кант | %54 көбөйүү | %23 азайуу | WT-T |
| Сахароза | %33 көбөйүү | %44 азайуу | WT-T |
Pearson корреляция талдоосу эмнени көрсөттү?
Өсүү менен байланышкан өркүн жаңы массасы, тамыр жаңы массасы, RWC жана хлорофилл; CAT, POD жана SOD активдүүлүктөрү жана пролин, эригич кант, сахароза сыяктуу осмолиттер менен күчтүү оң корреляция көрсөткөн. Ошол эле өсүү көрсөткүчтөрү ROS, электролит агып чыгышы жана MDA менен терс корреляция көрсөткөн.
SOS1, SOS2, NHX1 жана HKT1 экспрессиялары; ABA, ATAO3, ATABA3 жана антиоксиданттык мүмкүнчүлүк менен оң, оксидативдик зыян көрсөткүчтөрү менен терс корреляция көрсөткөн. ABA өзгөчө NHX1 жана HKT1 экспрессиясы менен жакын байланыш көрсөткөн.
Критикалык түшүндүрмө чеги: Pearson корреляциясы эки өзгөрмө бирге көбөйүп-азаюусун көрсөтөт; бир өзгөрмө экинчисинин түз себеби экенин далилдебейт. Демек корреляция матрицасы, мисалы, ABA NHX1ди түз активдештирерин же ERF013 өлчөнгөн бардык гендерди түз көзөмөлдөөрүн өз алдынча көрсөтпөйт.
Статистикалык талдоо кантип жүргүзүлдү?
Бардык эксперименттер толук кокустук дизайнда үч көз карандысыз биологиялык кайталоо менен жүргүзүлгөн. Топтор арасындагы айырмачылыктар бир факторлуу дисперсия талдоосу (one-way ANOVA) менен бааланып, топ орточолорунун жуп салыштыруусу Tukey көп салыштыруу тести менен жүргүзүлгөн. Натыйжалар орточо ± стандарттык четтөө катары берилген.
Сүрөттөрдөгү статистикалык белгилөө * p<0.05, ** p<0.01, *** p<0.001 жана ns = маанилүү эмес түрүндө. Булак тексти ар бир салыштыруунун так p-маанисин өзүнчө тизмектебегендиктен Verianla жылдыз категорияларынан жасалма тактык менен так p-маани чыгарбайт.
Изилдөө колдогон жыйынтыктар
- ERF013 ашыкча экспрессиясы 250 mM NaCl шартында өркүн жана тамырдын жакшыраак көрсөткүчтөрү менен байланыштуу.
- OE-ERF013 өсүмдүктөрү WT-T жана ge-erf013ке салыштырмалуу ROS азыраак топтолушун көрсөтөт.
- ERF013 ашыкча экспрессиясы антиоксиданттык коргонуу мүмкүнчүлүгүнүн жакшыраак сакталышы менен байланыштуу.
- OE-ERF013 өсүмдүктөрүндө салыштырмалуу суу курамы жакшыраак сакталып, мембрана зыяны азыраак болгон.
- SOS1, SOS2, NHX1 жана HKT1 экспрессиялары OE-ERF013те көбөйсө, ge-erf013те жалпысынан басаңдаган.
- ERF013 ашыкча экспрессиясы жогорку ABA топтолушу жана ATAO3/ATABA3 экспрессиясы менен байланыштуу.
- OE-ERF013 өсүмдүктөрүндө пролин, эригич кант жана сахароза топтолушу жогору.
- ge-erf013 линиясы оксидативдик зыян, суу жоготуу жана өсүштүн басаңдашы боюнча сезимталыраак фенотип көрсөткөн.
Изилдөө колдобогон жыйынтыктар
- ERF013 ABA сигнал жолун түз активдештирери механистикалык жактан далилденген эмес.
- ERF013 SOS1, SOS2, NHX1, HKT1, ATAO3 же ATABA3 промоторлоруна түз байланышаары көрсөтүлгөн эмес.
- ERF013 антиоксидант гендерин түз GCC-box байланышы аркылуу жөнгө салаары азыркы экспериментте көрсөтүлгөн эмес.
- Pearson корреляциялары себептүүлүктүн далили эмес.
- Arabidopsisте алынган натыйжаларды түз эле талаа өсүмдүктөрүнө жалпылоого болбойт.
- 250 mM NaCl шартындагы көзөмөлдөнгөн лаборатория/күнөскана көрсөткүчтөрү реалдуу талаа туздуулугунда ошол эле натыйжалуулукту кепилдебейт.
- Изилдөө ERF013 негизиндеги коммерциялык тузга туруктуу продукт иштелип чыкканын көрсөтпөйт.
- OE-ERF013 жана ge-erf013 үчүн тузсуз дал келген топтор бул экспериментте билдирилбегендиктен, бардык базалдык генотип таасирлерин азыркы эксперименттин ичинде бөлүп кароого мүмкүн эмес.
Изилдөөнүн күчтүү жактары
Изилдөөнүн негизги күчтүү жагы бир эле фенотип өлчөөсүнө таянбаганы. Өсүү, ROS, мембрана зыяны, суу абалы, ферменттик антиоксиданттар, химиялык радикал тазалоо, липид пероксидациясы, ABA, осмолиттер, хлорофилл жана ген экспрессиясы бир эксперименттик алкакта бааланган.
Экинчи күчтүү жагы — ERF013 ашыкча экспрессия линиясы гана эмес, геном-редакцияланган erf013 линиясы да колдонулган. Ашыкча экспрессия жана функция жоготуунун чоң даражада карама-каршы фенотиптерди жаратышы ERF013 менен туз-стресс жообунун ортосундагы байланышты бир багыттуу ашыкча экспрессия экспериментине салыштырмалуу кеңири колдойт.
Үчүнчү күчтүү жагы — физиологиялык натыйжалар молекулалык ген-экспрессия маалыматтары менен бирге бааланып, Pearson корреляция матрицасы аркылуу стресс жообунун ар кандай катмарларынын байланышы изилденген.
Негизги чектөөлөр
ABA механизми: Авторлор ачык белгилеген эң маанилүү чектөө — ERF013тин ABA сигналдашуусуна түз салымы эксперименттик түрдө ырасталбаганы.
Түз максаттуу гендер: ERF013 үчүн геномдук масштабда максат аныктоо же түз промотор байланышын текшерүү эксперименти жүргүзүлгөн эмес. Ошондуктан ген экспрессиясындагы өзгөрүүлөр түзбү же кыйыр жөнгө салуучу тармактар аркылуу болобу — белгисиз.
Модель өсүмдүк: Эксперимент Arabidopsis thaliana менен жүргүзүлгөн. Айыл чарба өсүмдүктөрүндө ошол эле таасирдин көлөмү же багыты түз көрсөтүлгөн эмес.
Талаа шарттары: 250 mM NaCl менен көзөмөлдөнгөн чөйрөдө берилген стресс чыныгы талаа туздуулугунун убакыттык жана мейкиндиктик татаалдыгын толук чагылдырбайт. Булак келечекте талаага реалдуу туздуулук шарттарында айыл чарба өсүмдүктөрүндө ырастоону ачык сунуштайт.
Эксперименттик топ түзүлүшү: Азыркы изилдөөдө OE-ERF013 жана ge-erf013 үчүн өзүнчө тузсуз контроль топтор билдирилген эмес. Изилдөө дизайны өзгөчө туз шартындагы ERF013 функциясын баалоого багытталган.
Биологиялык кайталоолордун саны: Негизги эксперименттер үч көз карандысыз биологиялык кайталоо менен жүргүзүлгөн. Бул көзөмөлдөнгөн молекулалык өсүмдүк эксперименттеринде колдонулган дизайн болгону менен, кеңири экологиялык/генетикалык ар түрдүүлүктү чагылдырган талаа популяциясы эмес.
Келечектеги изилдөөлөр
Авторлор ERF013тин чыныгы максаттуу гендерин жана жөнгө салуучу механизмдерин геномдук масштабдагы ыкмалар менен аныктоону сунуштайт. Ошондо кайсы гендер ERF013 тарабынан түз, кайсылары экинчи сигналдык тармактар аркылуу өзгөртүлөрүн ажыратууга болот.
Экинчи маанилүү келечектеги кадам — ERF013 функциясын айыл чарба өсүмдүктөрүндө жана реалдуу айыл чарба туздуулугуна жакыныраак чөйрөлөрдө ырастоо. Бирок азыркы изилдөө бул айыл чарбалык колдонмо ийгиликтүү бүткөнүн көрсөтпөйт.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска аталышы: Ethylene-Responsive Transcription Factor 013 Regulates Physiological and Molecular Responses to Salt Stress in Arabidopsis thaliana.
Авторлор жана ирети: Rahmatullah Jan, Shahzad Iqbal, Sajad Ali, Muhammad A. Almalki, Mohammad Alfredan, Sajjad Asaf, Kyung-Min Kim.
Тең салым: Rahmatullah Jan жана Shahzad Iqbal тең салым кошкон.
Жооптуу авторлор: Sajjad Asaf жана Kyung-Min Kim.
Мекеме 1: Coastal Agriculture Research Institute, Kyungpook National University, Daegu 41566, Republic of Korea.
Мекеме 2: Department of Semiconductor Engineering, Gachon University, Seongnamdaero, Sujeong-gu, Seongnam-si 13120, Republic of Korea.
Мекеме 3: Department of Biological Sciences, College of Science, King Faisal University, Al-Ahsa 31982, Saudi Arabia.
Мекеме 4: Natural and Medical Science Research Center, University of Nizwa, Nizwa 616, Oman.
Мекеме 5: Department of Applied Biosciences, Graduate School, Kyungpook National University, Daegu 41566, Republic of Korea.
Журнал: Antioxidants.
Басма: MDPI, Basel, Switzerland.
Том / сан / макала номери: 15(7), 834.
DOI: 10.3390/antiox15070834.
Received: 12 Май 2026.
Revised: 25 Июнь 2026.
Accepted: 29 Июнь 2026.
Published: 1 Июль 2026.
Булак түрү: Оригиналдуу эксперименттик өсүмдүк физиологиясы жана молекулалык биология боюнча изилдөө макаласы.
Рецензия абалы: Жарыяланган журналдык макала жана Received–Revised–Accepted жарыялоо процесси билдирилген. PDF өзүнчө “peer-reviewed” энбелгисин бербейт.
Preprint абалы: Берилген PDF жарыяланган журналдык макала; preprint эмес.
Лицензия: PDF Creative Commons Attribution (CC BY) лицензиясын ачык көрсөтөт. PDFде лицензиянын версия номери так жазылбагандыктан, бул жерде версия номери божомолдонгон эмес.
Академиялык редактор: Alessandra Napolitano.
Модель организм: Arabidopsis thaliana ecotype Col-0.
Эксперимент топтору: CK, WT-T, OE-ERF013 жана ge-erf013.
Туз стресси: 250 mM NaCl.
Стресс башталышы: Себүүдөн 20 күн өткөн соң.
Өстүрүү: 16 саат жарык / 8 саат караңгы, 25 °C, %60 салыштырмалуу нымдуулук.
Негизги үлгү алуу: Туз берилгенден эки күн өткөн соң, болжол менен 10.00.
Сактоо: Суюк азотто тез тоңдуруу жана −80 °C.
Биологиялык кайталоо: Үч көз карандысыз биологиялык кайталоо.
NBT: %0.1 NBT, 25 °C, 16 саат караңгы инкубация.
RWC: 5 mm жалбырак дисктери; 10 mL таза сууда 3 саат тургор; 70 °Cде 24 саат кургатуу.
MDA: Sigma MDA Assay Kit; 10 mg жалбырак, 300 µL lysis buffer + 3 µL BHT; 13.000 rpm 10 мүнөт; TBA реакциясы 95 °C 1 саат; 532 nm.
Электролит агып чыгышы: Болжол менен 100 mg жалбырак; 10 mL суу; 32 °C 2 саат; андан кийин 120 °Cде 20 мүнөт автоклав.
ABTS: 7 mM ABTS + 2.4 mM калий персульфаты; 12 саат караңгы; 734 nm.
DPPH: %0.1 DPPH; 100 µL экстракт + 100 µL DPPH; 25 °Cде 30 мүнөт караңгы; 517 nm.
qRT-PCR: RNeasy Plant Mini Kit; 2 µg RNA; qPCR-Bio cDNA Synthesis Kit; StepOne Plus Real-Time PCR System; SYBR Green негизиндеги 2× Real-Time PCR Master Mix; actin референс гени; \(2^{-\Delta\Delta Ct}\) салыштырмалуу экспрессия ыкмасы.
ABA: Plant Abscisic Acid ELISA Kit.
Пролин: 300 mg жаңы жалбырак; %3 сульфосалицил кислотасы; нингидрин реакциясы; 520 nm; µg g−1 FW.
Эригич кант жана сахароза: Freeze-dried ткань; %80 этанол экстракциясы; HPLC; Bio-Rad Aminex 87C, 300 × 7.8 mm; таза суу мобилдик фаза; 0.6 mL мүнөт−1.
Хлорофилл: SPAD-502 Plus; ар бир топто беш жалбырактын апикалдык, ортоңку жана базалдык аймактары.
Статистика: Толук кокустук дизайн; бир факторлуу ANOVA; Tukey көп салыштыруу тести; орточо ± SD.
График программасы: GraphPad Prism 10.
Маанилүүлүк көрсөтүлүшү: * p<0.05; ** p<0.01; *** p<0.001; ns = маанилүү эмес.
Корреляция: Pearson корреляция талдоосу.
Supplementary Material: Table S1; qRT-PCR үчүн колдонулган гендер, праймер тизмектери жана accession номерлери.
Автордук салымдар: Rahmatullah Jan жана Sajjad Asaf эксперимент дизайнына, изилдөөгө жана алгачкы кол жазмага; Shahzad Iqbal, Sajad Ali, Muhammad A. Almalki жана Mohammad Alfredan маалымат даярдоого; Kyung-Min Kim алгачкы кол жазууга, көзөмөлгө жана каржылоону камсыздоого салым кошкон. Бардык авторлор жарыяланган версияны окуп, жактырган.
Каржылоо: Cooperative Research Program for Agriculture Science and Technology Development, Rural Development Administration, Republic of Korea, Project No. RS-2026-25516544; мындан тышкары King Faisal University Deanship of Scientific Research тарабынан KFU263553 номери менен колдоо.
Institutional Review Board: Колдонулбайт.
Informed Consent: Колдонулбайт.
Маалымат жеткиликтүүлүгү: Авторлор изилдөөнүн табылгаларын колдогон бардык маалыматтар макаланын ичинде бар экенин билдиришет.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Негизги илимий чектөө: ERF013тин ABA сигналдашуусуна түз салымы эксперименттик түрдө ырасталган эмес. ERF013тин түз максаттуу гендерин жана жөнгө салуучу байланыш механизмдерин геномдук масштабдагы ыкмалар менен аныктоо керек.
Колдонуу чеги: Натыйжалар Arabidopsis жана көзөмөлдөнгөн 250 mM NaCl стресс шартына таандык. Айыл чарба өсүмдүктөрүндө жана талаага реалдуу туздуулук шарттарында ырастоо дагы талап кылынат.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген