


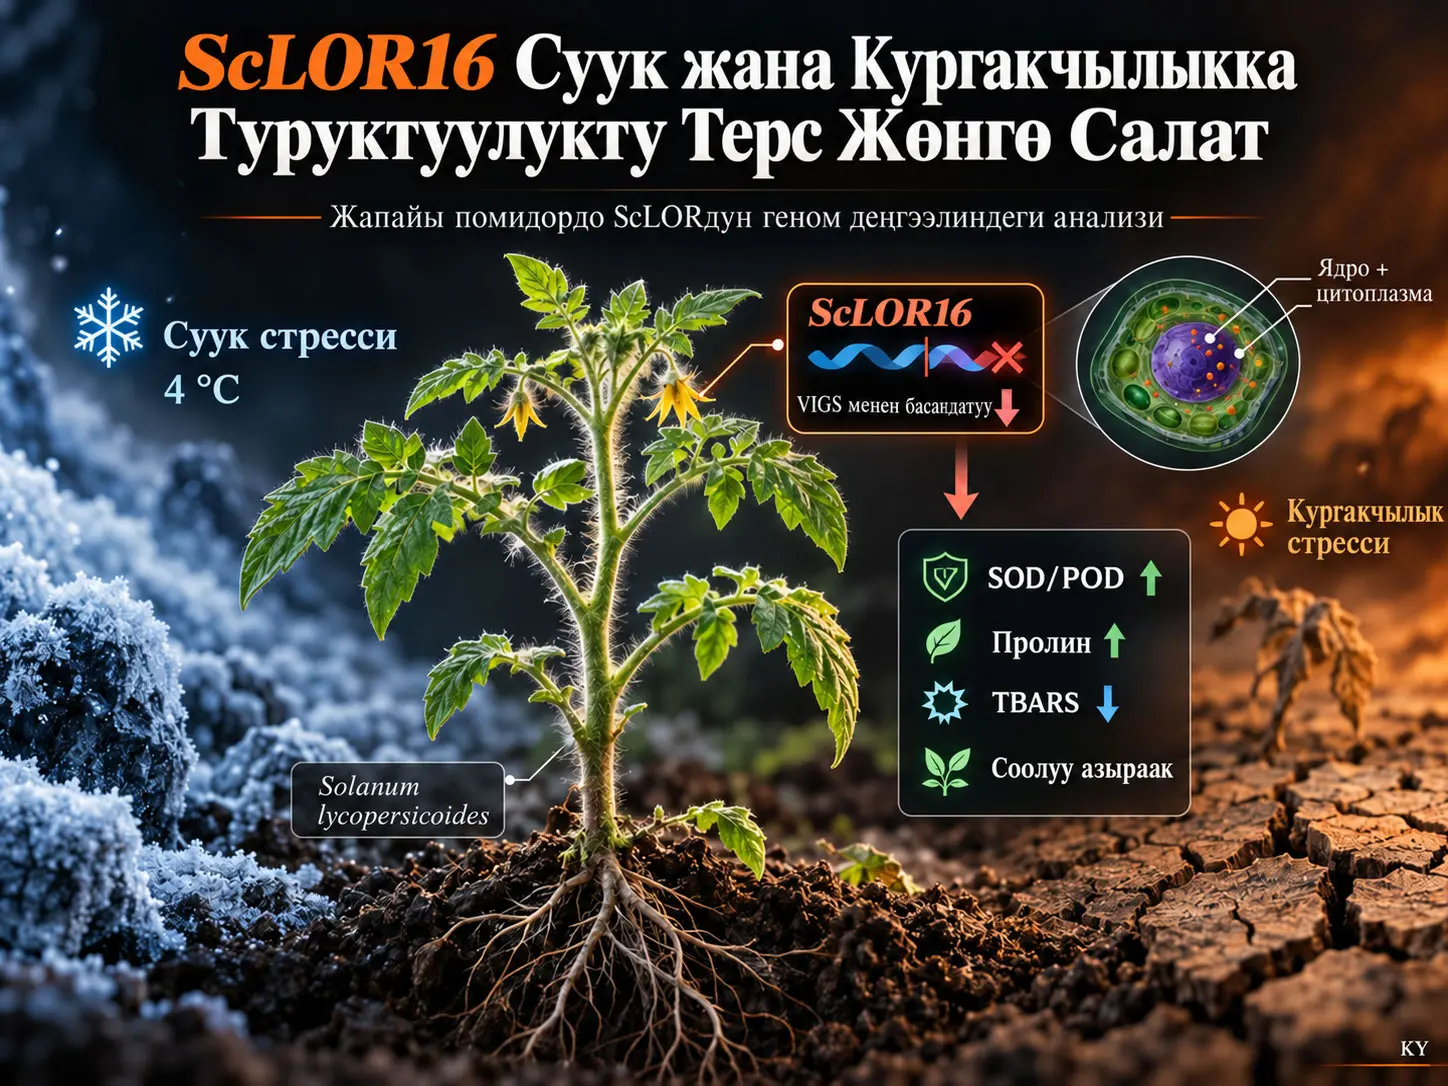
Бул изилдөө жапайы помидордун тууганы Solanum lycopersicoides түрүндө LOR (LURP-one related) гендер үй-бүлөсүн геном деңгээлинде аныктоо жана суук менен кургакчылыкка жооп берүүдө өзгөчө көрүнгөн ScLOR16 генинин функциясын эксперименттик түрдө баалоо үчүн жүргүзүлгөн. LOR гендер үй-бүлөсү консервацияланган LOR белок доменин алып жүргөн жана өсүмдүктөрдүн стресс жооптору менен байланышкан гендер үй-бүлөсү болуп саналат. Изилдөөчүлөр геномдук скринингди, филогенетикалык анализди, ген жана мотив түзүлүшүн, промотордук cis-элементтерди, хромосомалык синтенияны, RT-qPCR, GFP негизиндеги клетка ичиндеги локализацияны жана Virus-Induced Gene Silencing (VIGS) ыкмаларын айкалыштырышкан. Жалпысынан 19 ScLOR гени аныкталып, сегиз филогенетикалык кичи топко бөлүнгөн.
ScLOR16 4 °C суукта жана %20 PEG6000 менен түзүлгөн осмостук стрессте күчтүү индукцияланган; бирок туз стрессинде ушундай эле айкын жогорулаш байкалган эмес. ScLOR16-GFP фузиялык белогу гетерологиялык тамеки эпидермиси системасында ядро менен цитоплазмада байкалган. Ген VIGS аркылуу басаңдатылгандан кийин өсүмдүктөр 24 сааттык суук жана төрт күн суу бербөөгө негизделген кургакчылык шарттарында бош вектордук контролго салыштырмалуу азыраак соолууну көрсөткөн.
ScLOR16-басаңдатылган өсүмдүктөрдө суук жана кургакчылыктан кийин супероксиддисмутаза (SOD) жана пероксидаза (POD) активдүүлүктөрү менен пролиндин топтолушу контролдук өсүмдүктөргө караганда жогору, ал эми thiobarbituric acid-reactive substances (TBARS) деңгээли төмөн болгон. Бул натыйжалар ScLOR16 экспрессиясынын азайышы күчтүүрөөк антиоксиданттык коргонуу, осмостук ылайыкташуу жана мембрана липиддеринин азыраак пероксиддешүүсү менен байланыштуу экенин көрсөтөт.
Ошол эле учурда бул изилдөө ScLOR16 генин өстүрүлүүчү помидордо ырасталган селекциялык генге айлантпайт. Функциялык далил VIGS аркылуу убактылуу басаңдатууга, чектелүү сандагы физиологиялык көрсөткүчтөргө жана LA4259 интрогрессиялык линиясына негизделет. Туруктуу генди редакциялоо, ар башка генетикалык фон, талаадагы көрсөткүчтөр, түшүмдүүлүк жана ооруга туруктуулук сыяктуу мүмкүн болуучу компромисстер бул изилдөөдө текшерилген эмес.
Изилдөө маселеси
Өсүмдүктөр төмөн температурага, кургакчылыкка, туздуулукка жана башка чөйрөлүк стресстерге дуушар болгондо клеткалардын суу тең салмактуулугу, фотосинтез, мембрана түзүлүшү жана редокс тең салмактуулугу бузулушу мүмкүн. Стресс шарттарында реактивдүү кычкылтек түрлөрүнүн ашыкча топтолушу клеткалык кычкылдануу зыяндарын күчөтөт, ал эми өсүмдүк антиоксидант ферменттерди жана осмостук жөнгө салгычтарды камтыган көп деңгээлдүү коргонуу системаларын ишке киргизет.
LOR үй-бүлөсүнүн айрым мүчөлөрү өсүмдүк иммунитети, ABA сигнал берүүсү, кургакчылык же тузга жооп берүү менен байланышкан болсо да, жапайы Solanaceae гермплазмасындагы геномдук түзүлүшү жана абиотикалык стресс функциялары негизинен түшүндүрүлө элек. Изилдөө бул боштукту S. lycopersicoides аркылуу карайт.
Эмне үчүн Solanum lycopersicoides?
Solanum lycopersicoides өстүрүлүүчү помидорго жакын жапайы тууган жана өзгөчө төмөн температурага карата байкаларлык туруктуулук касиеттерине ээ. Булак бул жапайы гермплазманы өстүрүлүүчү помидордо стресс туруктуулугунун генетикалык негизин изилдөө үчүн баалуу ресурс катары мүнөздөйт.
Функциялык тажрыйбалар таза жапайы материалда эмес, LA4259 интрогрессиялык линиясында жүргүзүлгөн. LA4259 — VF36 өстүрүлүүчү помидору менен S. lycopersicoides LA2951 материалын камтыган генетикалык фон. Ошондуктан натыйжалардын биологиялык контексти “жапайы LOR гендер үй-бүлөсү + интрогрессиялык линияда функциялык тест” катары түшүнүлүшү керек.
LOR белок үй-бүлөсү деген эмне?
LOR — “LURP-one related” деген сөз айкашынын кыскартылышы. Үй-бүлө мүчөлөрү PF04525 менен көрсөтүлгөн консервацияланган LOR доменин алып жүрөт. Булактагы адабияттарга ылайык LORдун структуралык бүктөлүшү 12 жипчелүү β-бочка жана борбордогу C-терминалдык α-спираль менен байланышкан; бул архитектура белок–белок жана белок–DNA өз ара аракеттенүүсүндө роль ойной ала турган түзүлүш катары бааланат.
Бул изилдөөдө мындай структуралык бүктөлүү ScLOR16 үчүн эксперименттик белок кристаллографиясы же cryo-EM менен чечмеленген эмес. Структуралык түшүндүрмө LOR үй-бүлөсүнүн белгилүү консервацияланган архитектурасына жана мотив анализине негизделген.
Геном деңгээлиндеги ScLOR скрининги
PF04525 үчүн Hidden Markov Model профили колдонулуп, hmmsearch v3.4 аркылуу талапкер белок тизмектери скринингден өткөрүлгөн. GA threshold колдонулуп, E-маанинин чеги:
\[ E < 1\times10^{-10} \]
деп белгиленген. Алгачкы талапкерлер тизмеси SMART, NCBI Conserved Domain Database жана Pfam аркылуу кайра текшерилип, консервацияланган LOR доменин ишенимдүү алып жүргөн кайталанбаган тизмектер ScLOR үй-бүлөсүнө кабыл алынган.
Бул скринингдин жыйынтыгында ScLOR1–ScLOR19 деп аталган 19 үй-бүлө мүчөсү аныкталган.
| Касиет | Булактагы натыйжа |
|---|---|
| ScLOR гендеринин саны | 19 |
| Филогенетикалык кичи топ | 8; A–H |
| Белоктун узундугу | 173–266 аминокислота |
| Молекулалык масса | Болжол менен 19,62–30,22 kDa |
| Теориялык pI | 5,18–9,94 |
| Интрондордун саны | 1–3 |
| Экзондордун саны | 2–4; көпчүлүгүндө 3 экзон |
| MEME менен табылган консервацияланган мотив | 8 |
| Промотор cis-элемент категориясы | 46 |
Филогенетикалык түзүлүш
Филогенетикалык салыштырууга 19 S. lycopersicoides ScLOR белогу менен катар 20 Arabidopsis thaliana AtLOR жана 56 Brassica napus BnLOR белогу киргизилген. Белок тизмектери MUSCLE v3.8.31 менен тегизделип, начар консервацияланган аймактар trimAl v1.4.rev22 менен тазаланган жана максималдык ыктымалдуулук дарагы IQ-TREE2 v2.2.2 менен түзүлгөн. ModelFinder автоматтык алмашуу моделин тандоо үчүн колдонулуп, бутактардын колдоосу 1000 bootstrap кайталоосу менен бааланган.
Дарак сегиз кичи топко бөлүнгөн. Бир эле кичи топтогу белоктордун мотив жана ген түзүлүштөрүндөгү окшоштук LOR үй-бүлөсүнүн ичинде айрым структуралык өзгөчөлүктөр эволюциялык жактан сакталганын колдойт.
Ген түзүлүшү жана консервацияланган мотивдер
ScLOR гендеринде интрондордун саны 1–3, экзондордун саны 2–4 аралыгында өзгөрөт. Гендердин көбүндө үч экзон бар. MEME анализи эң көп 10 мотив издөө жана мотивдин узундугу 6–50 аминокислота болуу шарты менен жүргүзүлүп, сегиз мотив аныкталган.
Мотив 1 жана Мотив 3 үй-бүлө боюнча эң жогорку консервацияны көрсөткөн өзөк аймактардын катарына кирет. Мотив 1 белоктордун C-терминалдык бөлүгүндө, Мотив 3 болсо борборго жакыныраак жайгашкан. Башка мотивдердин кичи топтор арасында өзгөрүшү LOR үй-бүлөсү жалпы структуралык өзөгүн сактоо менен функциялык айырмаланууга мүмкүндүк берген кошумча өзгөчөлүктөрдү өнүктүргөн болушу мүмкүн деген түшүндүрмө берилет.
Промотордук cis-элементтер
Ар бир ScLOR генинин трансляция башталуучу кодонунан 2000 bp жогору жайгашкан аймак промотор катары алынып, PlantCARE менен талданган. Жалпысынан 46 cis-элемент категориясы төрт жалпы топко бөлүнгөн: өзөк промотор элементтери, гормонго жооп берүүчү элементтер, стресске жооп берүүчү элементтер жана жарыкка жооп берүүчү элементтер.
ABA жооп элементи ABRE 19 ScLOR промоторунун ичинен 15 промотордо кездешип, айрым промоторлордо алты көчүрмөгө чейин жеткен. Мындан тышкары SA менен байланышкан TCA, MeJA менен байланышкан CGTCA/TGACG, GA менен байланышкан GARE/P-box жана auxin менен байланышкан TGA элементтери аныкталган.
Стресс жагынан LTR, MBS, ARE жана TC-rich repeats элементтери үй-бүлө боюнча кеңири таралган. Бирок ScLOR16 промотору суук жана кургакчылыкта айкын индукцияланганына карабастан классикалык LTR жана MBS мотивдерин алып жүрбөйт. ScLOR16да бир нече ABRE болушу авторлорго ABA-көз каранды жөнгө салуу мүмкүнчүлүгүн талкуулоого түрткү берген.
Бул промотор анализи жөнгө салуучу механизмди түздөн-түз далилдебейт. Cis-элементтин болушу потенциалдуу транскрипциялык жооп жөндөмүн көрсөтөт; белгилүү бир транскрипция фактору ScLOR16 промоторуна чындап байланыша турганын көрсөтүү үчүн кошумча байланыш жана функциялык тажрыйбалар талап кылынат.
Хромосомалык бөлүштүрүү жана синтения
19 ScLOR гени геном боюнча бирдей бөлүштүрүлгөн эмес. Эң жогорку тыгыздык 8 жана 9-хромосомаларда байкалат, ал эми 1, 2, 4, 5, 7 жана 11-хромосомаларда ScLOR гени билдирилген эмес. ScLOR19 болсо anchoring жүргүзүлбөгөн геномдук аймакта жайгашкан.
MCScanX анализи S. lycopersicoides менен A. thaliana ортосунда 10, S. lycopersicoides менен өстүрүлүүчү помидор S. lycopersicum ортосунда 15 коллинеардык ген жубун аныктаган. 8-хромосома коллинеардык жуптардын эң жогорку тыгыздыгын көрсөткөн.
Авторлор бул көрүнүштү сегменттик дупликация ScLOR үй-бүлөсүнүн кеңейишине чоң салым кошкон болушу мүмкүн, ал эми тандемдик дупликация кошумча роль ойногон деген түшүндүрмө менен беришет.
Стресс тажрыйбаларынын түзүлүшү
LA4259 көчөттөрү көзөмөлдөнгөн шарттарда өстүрүлгөн. Уруктар 55 °C сууда 10 мүнөт кармалып, андан кийин 30 °C караңгыда өнүп чыгарылган. Көчөттөр перлит:вермикулит:азыктуу топурак 1:1:1 аралашмасында, 16 саат жарык/8 саат караңгы, 25 °C/22 °C күндүз/түн температурасы, болжол менен %65–70 салыштырма нымдуулук жана 400 µmol·m−2·s−1 PPFD шарттарында өстүрүлгөн.
| Стресс | Колдонуу | RT-qPCR үлгү алуу убакыттары |
|---|---|---|
| Суук | 4 °C | 0, 1, 3, 6, 12, 24, 36 саат |
| Осмостук/кургакчылык симуляциясы | %20 PEG6000 | 0, 1, 3, 6, 12, 24, 36 саат |
| Туз | 200 mM NaCl | 0, 1, 3, 6, 12, 24, 36 саат |
Ар бир убакыт чекити үч көз карандысыз биологиялык кайталоону камтыйт. Булак ар бир стресс үчүн жети убакыт чекитинде 21 көчөт, үч стресс колдонмосу үчүн жалпысынан 63 көчөт пайдаланылганын билдирет.
RT-qPCR
RNA FreeZol менен бөлүнүп алынып, HiScript III RT SuperMix менен cDNA синтезделген. qPCR 20 µL реакция көлөмүндө жүргүзүлгөн: 10 µL 2× ChamQ Universal SYBR qPCR Master Mix, 0,5 µL түз праймер, 0,5 µL тескери праймер, 1,0 µL cDNA жана 8 µL нуклеазасыз суу.
QuantStudio 3 системасында баштапкы денатурация 95 °Cде 30 секунд; андан кийин 40 цикл бою 95 °Cде 5 секунд жана 60 °Cде 30 секунд колдонулган.
Салыштырма экспрессия:
\[ 2^{-\Delta\Delta C_t} \]
ыкмасы менен эсептелип, Scβ-Actin ички референс катары колдонулган. Бир, курч melting peak байкалышы amplicon спецификалуулугун колдоо үчүн пайдаланылган.
Стресс экспрессиясы эмнени көрсөттү?
Суук шартында ScLOR5, ScLOR6, ScLOR11, ScLOR13 жана ScLOR16 айкын индукцияланган. ScLOR16 бул топтун ичинде өзгөчө күчтүү суук жоопту көрсөткөн.
%20 PEG6000 шартында ScLOR5, ScLOR10, ScLOR11 жана ScLOR16 көбөйгөн. Туз стрессинде болсо ScLOR1 айкын басаңдап, ScLOR4 күчтүү индукцияланып, ScLOR14 жана ScLOR17 динамикалык өзгөрүүнү көрсөткөн.
Бул натыйжалар LOR үй-бүлөсүнүн бардык мүчөлөрү бирдей стресс функциясына ээ эмес экенин жана үй-бүлөнүн ичинде айкын функциялык айырмалануу бар экенин колдойт.
ScLOR16 Суукка жана Кургакчылыкка Туруктуулукка Кантип Таасир Этет?
Бул изилдөөдө ScLOR16 экспрессиясын VIGS аркылуу азайтуу LA4259 көчөттөрүнүн 24 сааттык 4 °C суук жана төрт күн суу бербөө шарттарында азыраак соолушу; жогорку SOD жана POD активдүүлүктөрүнө жана пролин деңгээлдерине, ошондой эле төмөн TBARS мазмунуна ээ болушу менен байланышкан. Бул эксперименттик көрүнүш ScLOR16 изилденген генетикалык фондо суукка жана кургакчылыкка туруктуулукту терс багытта модуляциялоочу жөнгө салгыч болушу мүмкүн экенин колдойт; бирок анын түз молекулалык буталары жана жөнгө салуу жолу бул изилдөөдө аныкталган эмес.
ScLOR16 эмне үчүн талапкер ген катары тандалды?
ScLOR16 4 °C суукта да, PEG6000 менен шартталган осмостук стрессте да айкын индукцияланган. Ал эми туз стрессинде ушундай күчтүү индукция байкалган эмес. Бул стресс тандалмалуулугу жана күчтүү экспрессиялык жооп генди кийинки функциялык текшерүү үчүн тандоонун негизин түзгөн.
Ткандарга мүнөздүү экспрессия
ScLOR16 экспрессиясы тамыр, сабак, жалбырак, гүл, мөмө жана үрөн ткандарында өлчөнгөн. Эң жогорку транскрипт молчулугу үрөндөрдө, андан кийин гүлдөрдө жана жалбырактарда байкалган; сабакта төмөнүрөөк экспрессия аныкталган.
Үрөндөрдөгү жогорку экспрессия ScLOR16 вегетативдүү стресс жоопторунда гана эмес, үрөндүн өнүгүүсү, жетилиши же кургоого адаптациясы сыяктуу башка процесстерде да роль ойношу мүмкүн экенин көрсөтөт. Бирок бул мүмкүнчүлүктөр изилдөөдө эксперименттик түрдө текшерилген эмес.
Клетка ичиндеги локализация
ScLOR16нын толук коддоочу тизмеги pSuper1300-GFP векторуна клондолуп, Agrobacterium tumefaciens GV3101 аркылуу тамекинин эпидермис клеткаларында убактылуу экспрессияланган. Ядролук маркер менен бирге жүргүзүлгөн конфокалдык сүрөттөөдө ScLOR16-GFP сигналы ядродо да, цитоплазмада да байкалган.
Бул табылга биоинформатикалык божомол менен толук шайкеш келбейт. WoLF PSORT негизиндеги божомол ScLOR16ны хлоропласт жана вакуоль менен байланыштырган. Авторлор бул айырма багыттоо сигналдарынын божомол алгоритми тарабынан туура эмес бааланганынан же гетерологиялык Nicotiana системасы жаратышы мүмкүн болгон локализациялык артефакттардан келип чыгышы мүмкүн экенин белгилешет.
VIGS кандай колдонулган?
ScLOR16 коддоочу тизмегинен SGN VIGS Tool аркылуу ылайыктуу 300 bp басаңдатуу аймагы тандалып, pTRV2-ScLOR16 вектору даярдалган. pTRV1 менен pTRV2-ScLOR16 культуралары 1:1 көлөмдүк катышта аралаштырылган. pTRV2 бош вектору терс контроль, pTRV2-PDS болсо VIGS системасы иштегенин көрсөткөн оң контроль катары колдонулган.
Бир жумалык көчөттөрдүн котиледондоруна инфильтрация жүргүзүлүп, өсүмдүктөр 20 °Cде 24 саат караңгыда кармалып, андан кийин 25 °C/22 °C күндүз/түн шарттарына өткөрүлгөн.
Башында 20 ScLOR16-VIGS өсүмдүгү бааланып, алардын 14 өсүмдүгү басаңдатуу натыйжалуулугу боюнча %50 көрсөткүчүнөн жогору критерийге жооп берген жана 12 көз карандысыз өсүмдүк кийинки физиологиялык анализдерге киргизилген.
Функциялык суук тести
ScLOR16-басаңдатылган жана бош вектордук контролдук өсүмдүктөр 4 °Cде 24 саат кармалган. Бош вектордук өсүмдүктөр көбүрөөк соолууну көрсөткөн, ал эми басаңдатылган өсүмдүктөр жеңилирээк фенотип көрсөткөн.
24 сааттын аягында эки топто тең стресске жооп катары SOD, POD, пролин жана TBARS жогорулаган; бирок ScLOR16-басаңдатылган өсүмдүктөр ошол эле убакыт чекитинде контролдук топко караганда жогору SOD/POD жана пролин, төмөн TBARS көрсөткөн.
Функциялык кургакчылык тести
Функциялык VIGS баскычындагы кургакчылык тажрыйбасы мурунку PEG6000 экспрессия скринингинен айырмаланат. Контролдук жана басаңдатылган өсүмдүктөр башында толук каныкканга чейин сугарылып, андан кийин төрт күн бою суу берилген эмес.
Төртүнчү күнү бош вектордук топто айкын суу жоготуу, жалбырактын бүктөлүшү, соолуу жана хлороз байкалган, ал эми ScLOR16-басаңдатылган өсүмдүктөр жеңилирээк белгилерди көрсөткөн.
Басаңдатылган өсүмдүктөрдүн SOD жана POD активдүүлүктөрү жогору, пролиндин көлөмү көбүрөөк жана TBARS деңгээли төмөн болгон. Бул айкалыш күчтүүрөөк антиоксиданттык коргонуу жана осмостук коргоо, ошондой эле мембрананын төмөн кычкылдануу зыяны менен шайкеш келет.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Биоинформатикалык анализ чынжыры
- S. lycopersicoides геному жана ген аннотациясы алынды.
- PF04525 HMM профили менен потенциалдуу LOR белоктору скринингден өткөрүлдү.
- SMART, NCBI CDD жана Pfam аркылуу консервацияланган домендер кайра ырасталды.
- Белоктун узундугу, молекулалык массасы, теориялык pI жана божомолдонгон локализация эсептелди.
- TBtools менен экзон–интрон түзүлүштөрү чыгарылды.
- MEME менен консервацияланган белок мотивдери аныкталды.
- 2000 bp промотор аймактары PlantCARE менен сканерленди.
- A. thaliana жана B. napus LOR белоктору менен максималдык ыктымалдуулук филогениясы түзүлдү.
- MCScanX менен S. lycopersicoides, өстүрүлүүчү помидор жана A. thaliana ортосундагы коллинеардык байланыштар изилденди.
- Стресс RT-qPCR скрининги менен ScLOR16 функциялык талапкер катары тандалды.
- ScLOR16 клетка ичиндеги локализациясы GFP фузиясы менен изилденди.
- VIGS аркылуу ScLOR16 экспрессиясы азайтылып, суук жана кургакчылык фенотиптери бааланды.
ScLOR16нын негизги молекулалык касиеттери
| Касиет | Маани / натыйжа |
|---|---|
| Ген | ScLOR16 |
| Ген идентификатору | Scoides10g062800.1 |
| Хромосома | Chr10 |
| Белоктун узундугу | 214 аминокислота |
| Теориялык pI | 8,41 |
| Молекулалык масса | 23.993,47 Da |
| Биоинформатикалык локализация божомолу | Хлоропласт, вакуоль |
| Эксперименттик убактылуу локализация | Ядро, цитоплазма |
19 ScLOR генинин стресс жоопторундагы айырмаланышы
| Стресс | Өзгөчө гендер | Түшүндүрмө |
|---|---|---|
| 4 °C суук | ScLOR5, ScLOR6, ScLOR11, ScLOR13, ScLOR16 | ScLOR16 эң күчтүү суук-индукцияланган талапкер катары өзгөчөлөндү. |
| %20 PEG6000 | ScLOR5, ScLOR10, ScLOR11, ScLOR16 | ScLOR16 суук жана осмостук стресс жоопторунун экөөндө тең жалпы талапкер болду. |
| 200 mM NaCl | ScLOR1 ↓; ScLOR4 ↑; ScLOR14 жана ScLOR17 динамикалык | Үй-бүлө мүчөлөрү туз стрессине ар башка багытта жооп берди. |
Физиологиялык көрсөткүчтөрдүн биологиялык мааниси
SOD супероксид радикалдарын жок кылууда негизги роль ойногон антиоксидант ферменттердин бири. POD пероксиддерди детоксикациялоо менен байланышкан антиоксиданттык коргонуунун дагы бир компоненти.
Пролин стресс шартында клеткалык осмостук тең салмактуулукту сактоого салым кошо алган шайкеш осмолит катары бааланат. TBARS болсо мембрана липиддеринин пероксиддешүүсүнүн жана кычкылдануу зыяндарынын кыйыр көрсөткүчү катары колдонулат.
Бул изилдөөдө ScLOR16 басаңдатылганда стресстен кийин SOD/POD жана пролин жогору, TBARS төмөн болушу гендин кадимки экспрессиясы бул коргонуу процесстерин чектеши мүмкүн деген терс жөнгө салуучу моделди колдойт.
Статистикалык анализ
Жалпысынан тажрыйбалар үч көз карандысыз биологиялык кайталоо менен жүргүзүлүп, натыйжалар орточо ± стандарттык ката катары берилген.
Суук, PEG6000 жана NaCl убакыт катарларындагы ScLOR экспрессия маанилери бир факторлуу ANOVA менен талданып, ар бир стресс убакыт чекити 0 сааттык контролго каршы Dunnett көп салыштыруу тести менен текшерилген.
ScLOR16 басаңдатуу абалы, стресс узактыгы жана бул эки фактордун физиологиялык көрсөткүчтөргө таасири ordinary two-way ANOVA жана андан кийин Tukey жуптук салыштыруу тести менен бааланган. Маанилүүлүк чеги:
\[ p < 0.05 \]
деп белгиленген.
Булактагы сүрөттөрдүн илимий мааниси
Сүрөт 1: S. lycopersicoides, A. thaliana жана B. napus LOR белокторунун сегиз эволюциялык кичи топко бөлүнгөн максималдык ыктымалдуулук дарагын көрсөтөт.
Сүрөт 2: ScLOR мүчөлөрүнүн консервацияланган мотивдерин жана экзон–интрон архитектурасын бирге көрсөтөт. Кичи топ ичиндеги мотив окшоштугу эволюциялык сакталуунун визуалдык көрүнүшү болуп саналат.
Сүрөт 3: 19 ScLOR промоторундагы 46 cis-элемент категориясынын бөлүштүрүлүшүн жылуулук картасы катары көрсөтөт. ABREнин үй-бүлө боюнча кеңири тарашы өзгөчө көңүл бурат.
Сүрөт 4: ScLOR гендеринин хромосомалардагы топтолушун жана S. lycopersicoides–S. lycopersicum–A. thaliana коллинеардык байланыштарын көрсөтөт.
Сүрөт 5: Жети убакыт чекитинде суук, PEG6000 жана NaCl шарттарында маанилүү экспрессия өзгөрүүлөрүн көрсөткөн ScLOR мүчөлөрүн салыштырып, ScLOR16нын суук/кургакчылык үчүн жалпы талапкер экенин көрсөтөт.
Сүрөт 6: ScLOR16нын ткандарга мүнөздүү экспрессиясын жана GFP фузиялык белогунун тамеки эпидермисинде ядро/цитоплазма боюнча бөлүштүрүлүшүн бирге көрсөтөт.
Сүрөт 7: Сууктагы ScLOR16-VIGS фенотибин жана SOD, POD, пролин менен TBARS натыйжаларын көрсөтөт.
Сүрөт 8: Төрт күндүк кургакчылыктан кийин бош вектор жана ScLOR16-басаңдатылган өсүмдүктөрдүн морфологиялык жана физиологиялык айырмаларын көрсөтөт.
ScLOR16 Азыртан Эле Помидор Селекциясы үчүн Ырасталган Бутабы?
Жок. Изилдөө ScLOR16 LA4259 интрогрессиялык линиясында суукка жана кургакчылыкка туруктуулукту терс багытта модуляциялашы мүмкүн экенине VIGS негизиндеги функциялык далил берет, бирок өстүрүлүүчү помидордо туруктуу knockout же генди редакциялоо, ар башка генетикалык фондо кайталоо, талаадагы көрсөткүчтөр, түшүмдүүлүк жана ооруга туруктуулук сыяктуу селекция үчүн зарыл болгон ырастоолор азырынча жүргүзүлгөн эмес.
Изилдөө колдогон жыйынтыктар
- S. lycopersicoides геномунда 19 ScLOR үй-бүлө мүчөсү бар.
- ScLOR үй-бүлөсү сегиз филогенетикалык кичи топко бөлүнөт.
- Үй-бүлө мүчөлөрү ген түзүлүшү, мотив профили жана стресс экспрессиясы боюнча функциялык айырмалануунун белгилерин көрсөтөт.
- ScLOR промоторлорунда ABA, суук, кургакчылык жана башка стресстер менен байланышкан көптөгөн cis-элементтер бар.
- ScLOR16 суук жана PEG6000 менен шартталган осмостук стрессте күчтүү индукцияланат.
- Гетерологиялык GFP тажрыйбасында ScLOR16 ядро менен цитоплазмада байкалган.
- ScLOR16 басаңдатылышы суук жана кургакчылык шарттарында азыраак соолуу менен байланышкан.
- Басаңдатылган өсүмдүктөр стресс шартында жогорку SOD/POD жана пролин, төмөн TBARS көрсөткөн.
- Бул натыйжалар ScLOR16 LA4259 фонунда суукка жана кургакчылыкка туруктуулуктун терс модуляциясында роль ойношу мүмкүн экенин колдойт.
Изилдөө колдобогон жыйынтыктар
- ScLOR16 өстүрүлүүчү помидордо ырасталган генди редакциялоо бутасы экени көрсөтүлгөн эмес.
- ScLOR16нын түз молекулалык буталары аныкталган эмес.
- ABREнин болушу ABA ScLOR16ны түз жөнгө салат дегенди өз алдынча далилдебейт.
- ScLOR16 промоторуна белгилүү транскрипция факторунун байланыштары эксперименттик түрдө көрсөтүлгөн эмес.
- Ядро жана цитоплазма локализациясы табигый LA4259 клеткаларында туруктуу трансгендик материал менен азырынча ырасталган эмес.
- ScLOR16нын үрөн өнүгүүсүндөгү же үрөндүн кургоого туруктуулугундагы функциясы текшерилген эмес.
- Узак мөөнөттүү талаа көрсөткүчтөрү, мөмө түшүмдүүлүгү жана сапатка таасири бааланган эмес.
- Суук/кургакчылыкка туруктуулуктагы мүмкүн болгон пайда ооруга туруктуулук же башка агрономиялык өзгөчөлүктөр менен компромисс жаратабы-жокпу белгисиз.
Негизги методологиялык чектөөлөр
VIGS — убактылуу ген басаңдатуу ыкмасы. Ал ген геномдон туруктуу түрдө алынып салынган стабилдүү knockout менен барабар эмес. Ошондуктан VIGS фенотиби күчтүү талапкер-функция далилин берет, бирок өз алдынча так генетикалык механизмди чечпейт.
Клетка ичиндеги локализация тажрыйбасы Nicotiana жалбырагында гетерологиялык убактылуу экспрессия менен жүргүзүлгөн. Табигый S. lycopersicoides фонундагы белок локализациясы стабилдүү трансгендик системаларда кошумча ырасталышы керек.
Физиологиялык өлчөөлөр жаңы массага карата нормалдаштырылган. Кургакчылыкта өсүмдүктүн суу курамынын өзгөрүшү жаңы массага негизделген маанилерде потенциалдуу четтөөлөрдү жаратышы мүмкүн.
Изилдөө SOD, POD, пролин жана TBARS менен чектелген физиологиялык панелди колдонгон. ROS/H₂O₂ көлөмү, электролит агып чыгышы, салыштырма суу курамы, хлорофилл флуоресценциясы жана фотосинтездик көрсөткүчтөр сыяктуу кошумча индикаторлор өлчөнгөн эмес.
Белок–белок өз ара аракеттенүүлөрү жана ScLOR16нын төмөнкү агымдагы транскриптомдук тармагы аныкталган эмес. Ошондуктан “ScLOR16 антиоксиданттык активдешүүнү түздөн-түз басат” деген билдирүү изилдөө тарабынан молекулалык механизм деңгээлинде далилденген эмес; байкалган физиологиялык көрүнүш бул моделге шайкеш келет.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө: Genome-Wide Characterization of the ScLOR Gene Family in Wild Tomato Solanum lycopersicoides Reveals ScLOR16 as a Negative Regulator of Cold-and Drought-Stress Tolerance.
Авторлор: Xinyi Tang; Yueqi Huang; Aoxue Wang; Liguo Zhang; Mingfang Feng.
Жооптуу авторлор: Aoxue Wang; Liguo Zhang; Mingfang Feng.
Мекемелер: College of Life Sciences, Northeast Agricultural University; Institute of Industrial Crops, Heilongjiang Academy of Agricultural Sciences; College of Horticulture, Northeast Agricultural University; Harbin, Кытай.
Журнал жана жарыя идентификациясы: Biology, 2026, Том 15, Сан 17, Макала 1542. Басмакана: MDPI. DOI: 10.3390/biology15171542.
Жарыялоо процесси: Кабыл алынган 4 Август 2026; ревизия 30 Август 2026; кабыл алуу 2 Сентябрь 2026; жарыялоо 4 Сентябрь 2026.
Булак түрү: Рецензияланган, ачык жеткиликтүү оригиналдуу изилдөө макаласы. Геном деңгээлиндеги биоинформатикалык мүнөздөмөнү өсүмдүккө негизделген молекулалык жана физиологиялык функциялык тажрыйбалар менен бириктирет.
Лицензия: Creative Commons Attribution (CC BY).
Өсүмдүк материалы: Solanum lycopersicoides introgression line LA4259; VF36 × S. lycopersicoides LA2951 генетикалык теги.
Негизги ыкмалар: HMM/hmmsearch; SMART; NCBI CDD; Pfam; WoLF PSORT; ExPASy; TBtools; MEME; PlantCARE; MUSCLE; trimAl; IQ-TREE2/ModelFinder; MCScanX; RT-qPCR; GFP фузиялуу конфокалдык микроскопия; TRV негизиндеги VIGS; SOD, POD, пролин жана TBARS өлчөөлөрү.
Стресс шарттары: 4 °C суук; экспрессия скринингинде %20 PEG6000; 200 mM NaCl; VIGS функциялык тажрыйбасында төрт күн суу бербөөгө негизделген кургакчылык.
Статистика: Жалпысынан үч көз карандысыз биологиялык кайталоо; орточо ± SE. Убакыт катарындагы экспрессияда one-way ANOVA + Dunnett; VIGS физиологиялык анализинде ordinary two-way ANOVA + Tukey; p < 0,05 маанилүүлүк чеги.
Каржылоо: National Natural Science Foundation of China General Program, Grant 32272702; Innovative Research Group Project, Grant 32072588; Local Joint Project of National Natural Science Foundation of China, Grant U22A20495; Taishan Industry Leading Talents Project атайын фонддору.
Этика комитети: Колдонулбайт.
Маалымдалган макулдук: Колдонулбайт.
Маалыматтардын жеткиликтүүлүгү: Изилдөөнүн оригиналдуу салымдары макалада жана Supplementary Material ичинде берилгени, кошумча суроолор жооптуу авторлорго жөнөтүлүшү мүмкүн экени көрсөтүлгөн.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Автордук салымдар: Xinyi Tang: маалыматтарды иретке келтирүү жана алгачкы долбоор; Yueqi Huang: изилдөө; Aoxue Wang: кароо/редакциялоо жана каржылоо; Liguo Zhang: кароо/редакциялоо жана көзөмөл; Mingfang Feng: көзөмөл, каржылоо жана кароо/редакциялоо.
Булактагы маанилүү түшүндүрмө белгилери
ScLOR16 үчүн эсептөөчү локализация божомолу хлоропласт/вакуоль болсо, эксперименттик гетерологиялык GFP локализациясы ядро/цитоплазма болуп чыккан. Булак бул айырманы жашырбайт жана табигый генетикалык фондо стабилдүү ырастоону талап кылат.
ScLOR16 промоторунда бир нече ABA-responsive ABRE бар болгону менен, типтүү суук-responsive LTR жана кургакчылык-responsive MBS мотивдери жок. Демек, ScLOR16нын суук жана кургакчылык тарабынан индукцияланышынын механизми промотордук мотивдердин тизмеси менен гана чечилбейт.
Изилдөөдө PEG6000 экспрессия профили үчүн “кургакчылык симуляциясы” катары колдонулган, ал эми функциялык VIGS кургакчылык тажрыйбасында өсүмдүктөргө төрт күн суу берилген эмес. Бул эки эксперименттик стресс модели бири-бири менен аралаштырылбашы керек.
Авторлор ScLOR16ны практикалык селекциялык бута катары кабыл алуу үчүн учурдагы VIGS натыйжалары жетишсиз экенин ачык белгилешет. Өстүрүлүүчү помидордогу так ортологду аныктоо жана кийинки генди редакциялоо аркылуу ырастоо келечектеги изилдөө катары калтырылган.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген