


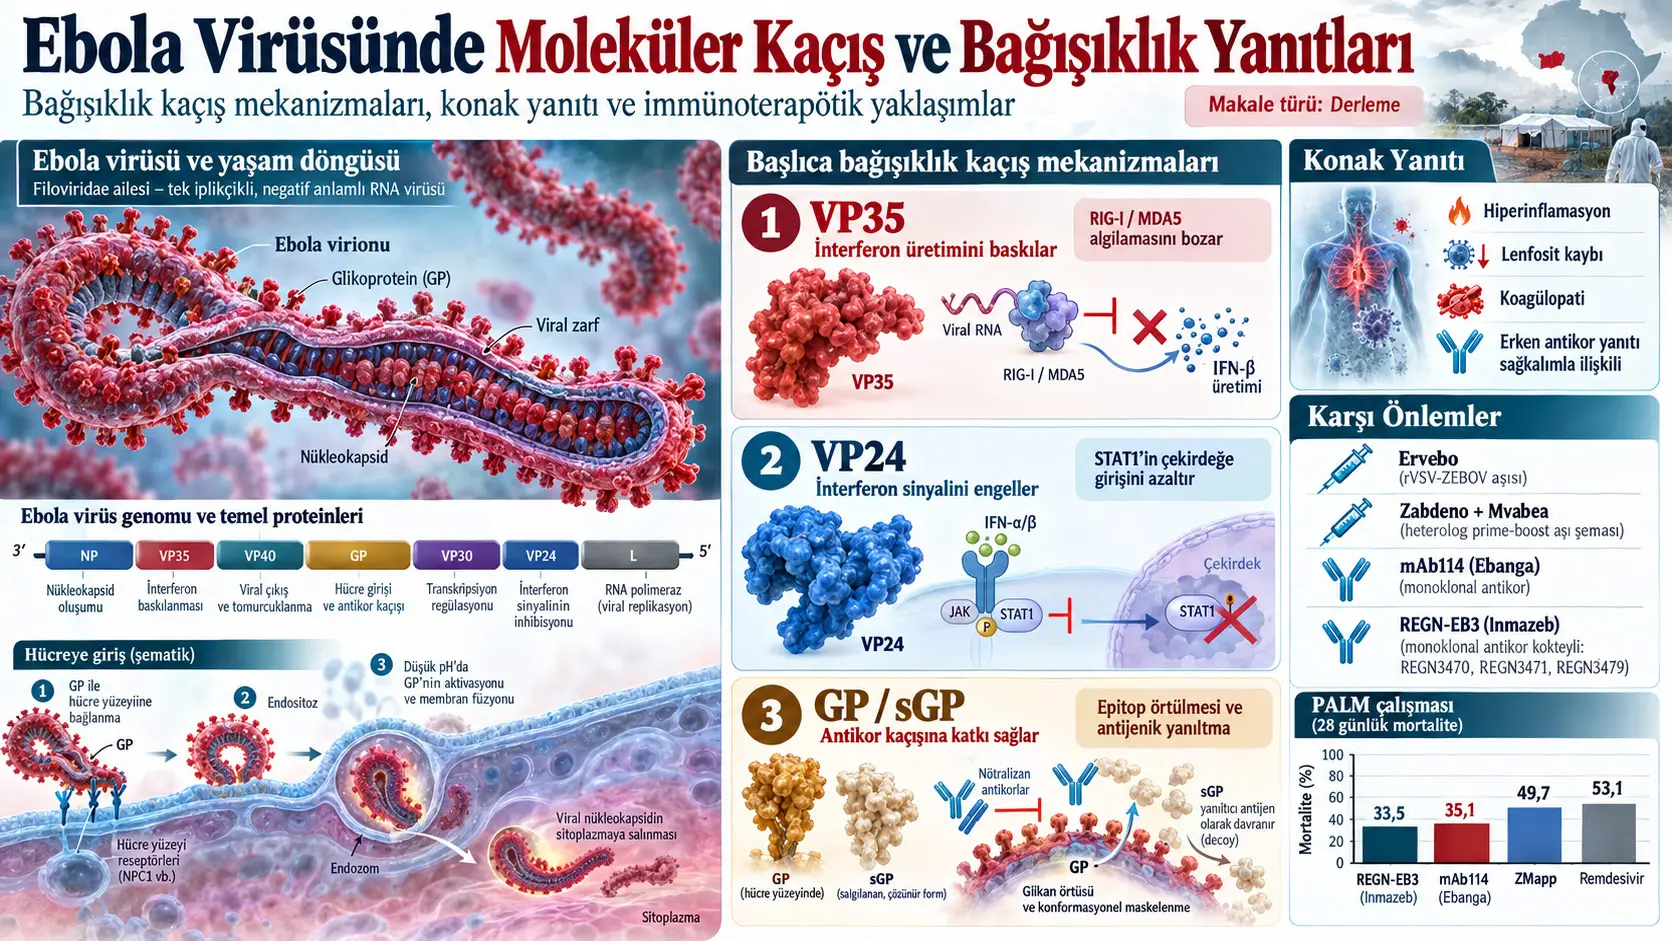
Ebola virüsü (Ebola virus, EBOV), Zaire ebolavirus türüne ve Filoviridae ailesine ait, negatif anlamlı tek iplikli RNA genomu taşıyan ve Ebola virüsü hastalığına (Ebola virus disease, EVD) neden olan bir filovirüstür. Bu derleme, EBOV'un yaklaşık 18,9 kilobazlık genomundan ve yedi geninden başlayarak virion yapısını, hücreye giriş ve çoğalma döngüsünü, VP35 ve VP24 tarafından yürütülen interferon karşıtı mekanizmaları, GP/sGP temelli antikor kaçışını, doğuştan ve adaptif bağışıklık yanıtlarını ve bu biyolojik bilginin aşılar ile monoklonal antikor tedavilerine nasıl dönüştürüldüğünü birlikte ele almaktadır. Kaynağın temel biyolojik çerçevesine göre VP35 interferon üretiminin başlamasını, VP24 üretilmiş interferona verilen hücresel yanıtı baskılar; GP1,2 ve sGP ise antikor erişimi, antijenik yanıltma ve tetherin karşıtlığı gibi ek kaçış katmanları oluşturur. Buna karşılık sağkalım; erken ve etkili antikor yanıtı, kontrollü inflamasyon ve işlevsel T-hücresi yanıtıyla ilişkilendirilirken ölümcül seyirde kontrolsüz viremi, hiperinflamasyon, lenfosit kaybı, koagülopati ve şok ön plana çıkar.
Derleme ayrıca bu mekanistik bilginin klinik karşılığını gösteren aşı ve tedavileri değerlendirir. rVSV-ZEBOV temelli Ervebo ve Ad26.ZEBOV/MVA-BN-Filo temelli Zabdeno + Mvabea aşı yaklaşımlarını; ansuvimab (mAb114/Ebanga) ve REGN-EB3 (Inmazeb) gibi GP hedefli monoklonal antikorları ele alır. PALM randomize çalışmasından aktarılan sonuçlarda 28 günlük mortalite mAb114 ile %35,1 ve REGN-EB3 ile %33,5 iken ZMapp kolunda %49,7 ve remdesivir kolunda %53,1 olarak verilmiştir. Bununla birlikte bu Verianla makalesinin temel kaynağı yeni bir klinik deney değil, önceki moleküler, deneysel, gözlemsel ve klinik araştırmaları bir araya getiren bir derlemedir; mekanistik açıklamalar ile randomize hasta sonuçları aynı kanıt düzeyi olarak yorumlanmamalıdır.
Derlemenin bilimsel amacı
Kaynağın ana amacı Ebola virüsünün yalnız hangi proteinleri taşıdığını sıralamak değildir. Derleme, virüsün moleküler yapısını bağışıklık sistemindeki sonuçlarına ve daha sonra bu bilgiden geliştirilen aşı/antikor tedavilerine bağlayan bir zincir kurmaktadır. Bu zincir dört düzeyde okunabilir: virüsün yapısı ve çoğalması; doğuştan bağışıklığın moleküler olarak baskılanması; bunun sistemik inflamasyon ve adaptif bağışıklık üzerindeki sonuçları; son olarak koruyucu bağışıklığın aşı veya terapötik antikor yoluyla dışarıdan sağlanması.
Ebola virüsü hastalığının tarihsel bağlamı
Kaynak, EVD'nin ilk kez 1976 yılında günümüzde Demokratik Kongo Cumhuriyeti olan Zaire'deki Yambuku ile Sudan'ın güneyindeki Nzara'da meydana gelen iki büyük hemorajik ateş salgınıyla tıbbi olarak tanındığını anlatır. Sonraki onlarca yılda ekvatoral Afrika'da çok sayıda salgın görülmüş ve bildirilen vaka ölüm oranları virüs türüne, sağlık hizmetlerine ve salgın koşullarına bağlı olarak yaklaşık %25 ile %90 arasında değişmiştir.
2013–2016 Batı Afrika epidemisi kaynakta 28.600'den fazla doğrulanmış, olası ve şüpheli vaka ile 11.325 ölüm üzerinden ele alınmaktadır. Bu salgın, Ebola için aşı ve terapötik geliştirme çalışmalarının hızlanmasında belirleyici bir dönüm noktası olarak değerlendirilmiştir.
Ebolavirus cinsindeki altı tür
| Tür / virüs | İlk tanımlanma | Kaynağın öne çıkardığı durum | Kaynakta bildirilen insan CFR aralığı |
|---|---|---|---|
| Zaire ebolavirus (EBOV) | 1976, Yambuku, DRC | 2013–2016 Batı Afrika; 2018–2020 DRC; 2025 Kasai | Yaklaşık %50–90 |
| Sudan ebolavirus (SUDV) | 1976, Nzara | Uganda'daki birden fazla salgın | Yaklaşık %41–65 |
| Bundibugyo ebolavirus (BDBV) | 2007, Bundibugyo, Uganda | DRC 2012 ve kaynağın yazıldığı sıradaki 2026 salgını | Yaklaşık %25–36 |
| Taï Forest ebolavirus (TAFV) | 1994, Côte d'Ivoire | Tek belgelenmiş, ölümcül olmayan insan vakası | Belirlenmemiş |
| Reston ebolavirus (RESTV) | 1989, Reston, ABD | Macaque epizootileri ve asemptomatik insan serokonversiyonu | İnsan hastalığı belgelenmemiş |
| Bombali ebolavirus (BOMV) | 2018 | Kaynakta yarasalarda saptanmış; insan enfeksiyonu bilinmiyor | Bilinmiyor |
Bu değerler derlemenin derlediği tarihsel/literatür bilgileridir; makalenin kendi oluşturduğu yeni epidemiyolojik veri değildir. Ayrıca 2025–2026 salgın bilgileri yayının hazırlandığı dönemin zaman kesitini yansıtır.
EBOV genomu nasıl düzenlenmiştir?
EBOV genomu yaklaşık 18,9 kb uzunluğunda, negatif anlamlı, segmentlere ayrılmamış tek bir RNA molekülüdür. Kaynağa göre yedi genin sırası 3′-NP-VP35-VP40-GP-VP30-VP24-L-5′ biçimindedir. Her gen kendi başlangıç ve durma sinyalleriyle ayrı, kaplı ve poliadenile edilmiş mRNA üretir. Gen birleşim noktalarında meydana gelen transkripsiyon azalması nedeniyle genomun 3′ ucuna yakın NP transkripti daha bol, 5′ ucundaki L transkripti daha az üretilir.
Yedi viral protein ne yapar?
| Protein | Derlemedeki temel işlev |
|---|---|
| NP | Viral RNA genomunu kaplayarak ribonükleoprotein kompleksinin temelini oluşturur. |
| VP35 | Viral polimeraz kofaktörüdür ve aynı zamanda tip-I interferon üretiminin başlamasını baskılar. |
| VP40 | Ana matriks proteinidir; virion montajını, şekillenmesini ve tomurcuklanmasını yönlendirir. |
| GP | Hücreye tutunma ve membran füzyonunda görev alan yüzey glikoproteinini ve RNA editing aracılığıyla farklı GP ürünlerini kodlar. |
| VP30 | Transkripsiyon aktivatörüdür; özellikle NP transkriptinin etkin oluşumunda anti-termination işlevi görür. |
| VP24 | Virion yapısının bir parçasıdır ve interferon sinyal yolunda STAT1'in nükleer taşınmasını engeller. |
| L | RNA'ya bağımlı RNA polimerazdır; viral transkripsiyon ve genom replikasyonunun katalitik merkezidir. |
GP genindeki RNA editing neden önemlidir?
GP geni tek bir sabit protein ürünü üretmekle sınırlı değildir. Kaynağa göre düzenlenmemiş GP mRNA'sı yoğun biçimde salgılanan sGP'yi kodlarken, viral polimerazın belirli bir uridin dizisinde yaptığı “stuttering” sırasında şablonda bulunmayan ek bir sitozinin RNA'ya eklenmesi okuma çerçevesini değiştirir ve tam uzunluklu membran glikoproteininin öncülü GP0'ın oluşmasını sağlar. GP0 daha sonra GP1 ve GP2 alt birimlerine işlenir. Bu düzenleme, aynı genin hem virionun yüzey füzyon proteinini hem de bağışıklık kaçışında rol oynayan salgılanan bir antijenik ürünü üretmesini mümkün kılar.
Ebola virionunun yapısı
Kaynağa göre Ebola virionları zarflı, filamentöz ve belirgin biçimde pleomorfiktir. Çubuk, halka, U biçimi, “6” biçimi veya çoban değneğine benzeyen şekiller görülebilir. Çap yaklaşık 80 nm'dir; filament uzunluğu yaklaşık 1.000 nm'ye yaklaşabilir. Dış yüzeyde trimerik GP1,2 çıkıntıları yer alır. Konak hücreden köken alan lipid zarfın hemen altında VP40 ağırlıklı matriks tabakası bulunur. İç bölümde ise negatif anlamlı RNA genomu, NP, VP35, VP30, VP24 ve L polimeraz bileşenlerini içeren ribonükleoprotein kompleksi bulunur.
VP40 neden “yapısal dönüştürücü” olarak ele alınıyor?
Derleme, VP40'ın farklı konformasyonlarda farklı işlevler üstlenebildiğini vurgular. Dimerik VP40 plazma membranına taşınma ve matriks oluşumuyla ilişkilidir; halka biçimli oktamer RNA bağlama ve viral transkripsiyon düzenlemesiyle ilişkilendirilirken, filament oluşturan daha yüksek oligomerik düzenler virion matriksinin ve tomurcuklanmanın oluşumuna katkı sağlar. Dolayısıyla VP40'ın görevi yalnız “kabuk proteini” olmak değildir; konformasyonel yeniden düzenlenme virüs yaşam döngüsündeki çoklu görevlerinin temelidir.
Ebola virüsü hücreye nasıl girer?
Kaynağın anlattığı giriş mekanizması iki aşamalı düşünülebilir. İlk aşamada GP1,2 hücre yüzeyindeki çeşitli attachment faktörleriyle etkileşerek virionu hücre yüzeyinde yoğunlaştırır. Derleme C-tipi lektinler, TIM/TAM ailesi fosfatidilserin reseptörleri ve glikozaminoglikanları bu bağlamda sayar. İkinci aşamada virion makropinositozla endozomal sisteme alınır. Endozomda katepsin B ve L, GP1'in glikan başlığı ve müsin-benzeri bölümlerini uzaklaştırarak reseptör bağlanma çekirdeğini açığa çıkarır. İşlenmiş GP daha sonra geç endozom/lizozomdaki Niemann–Pick C1 (NPC1) proteinine bağlanır; GP2'nin füzyon mekanizması endozomal membranla viral membranın birleşmesini sağlayarak ribonükleoprotein kompleksini sitoplazmaya bırakır.
Viral yaşam döngüsünün dokuz temel adımı
- Tutunma: GP1,2 hücre yüzeyindeki attachment faktörleriyle etkileşir.
- Makropinositoz: Virion endozomal bölmeye alınır.
- Endozomal işleme: Asidifikasyon ile katepsin B/L GP1'i proteolitik olarak işler.
- NPC1 ve füzyon: İşlenmiş GP, NPC1'e bağlanır; GP2 membran füzyonunu gerçekleştirir ve RNP sitoplazmaya bırakılır.
- Primer transkripsiyon: L·VP35 polimeraz kompleksi yedi viral mRNA'yı üretir.
- Protein sentezi: GP0 endoplazmik retikulum/Golgi yolunda işlenirken diğer viral proteinler sitoplazmik ribozomlarda üretilir.
- Genom replikasyonu: Tam uzunluklu pozitif anlamlı antigenom ara ürünü üzerinden yeni negatif anlamlı genomlar sentezlenir.
- Montaj: VP40 oligomerleri RNP'leri ve GP içeren plazma membranı bölgelerini bir araya getirir.
- Tomurcuklanma ve çıkış: Konak ESCRT bileşenleri de kullanılarak yeni virionlar hücre membranından ayrılır.
Ebola Virüsü Bağışıklık Sisteminden Nasıl Kaçar?
EBOV, doğuştan ve humoral bağışıklığı birbirini tamamlayan birkaç mekanizmayla baskılar: VP35 viral RNA'nın algılanmasına ve interferon üretiminin başlamasına müdahale eder; VP24 STAT1 içeren antiviral sinyal kompleksinin çekirdeğe taşınmasını engelleyerek interferon yanıtını susturur; GP1,2 ve salgılanan sGP ise koruyucu epitopları fiziksel olarak örter, antikorları yanıltabilen antijenik ürünler oluşturur, konak hücre yüzey moleküllerini maskeleyebilir ve tetherin aracılı tomurcuklanma kısıtlamasına karşı koyar.
VP35 ile VP24 Arasındaki Bağışıklık Kaçış Farkı Nedir?
VP35 ve VP24 interferon sistemini farklı noktalarda baskılar: VP35 viral çift iplikli RNA'nın RIG-I/MDA5 ekseni üzerinden algılanmasını ve IRF3/IRF7 aktivasyonunu engelleyerek IFN-α/β üretimini azaltırken, VP24 interferon üretilmiş olsa bile fosforile STAT1'in karyopherin-α5 aracılı nükleer taşınmasına müdahale ederek interferon-stimüle genlerin açılmasını engeller. Bu nedenle kaynak mekanizmayı iki aşamalı bir blokaj olarak ele alır: VP35 “interferon üretimini”, VP24 ise “interferona yanıtı” hedefler.
VP35'in interferon indüksiyonunu engellemesi
Normalde hücre içindeki viral çift iplikli RNA, RIG-I ve MDA5 gibi sensörler tarafından algılanır. Bu algılama MAVS, TBK1/IKKε ve IRF3/IRF7 yolunu harekete geçirerek tip-I interferon genlerinin transkripsiyonuna yol açar. Derlemeye göre VP35'in C-terminal interferon-inhibitory domain'i viral dsRNA'ya bağlanarak bu RNA'yı RIG-I-benzeri reseptörlerden gizleyebilir. Ayrıca PACT ve IRF3 kinazları gibi indüksiyon sisteminin bileşenleriyle etkileşerek IRF3/IRF7 fosforilasyonunu ve IFN-β transkripsiyonunu bozar.
VP24'ün interferon sinyalini engellemesi
Komşu hücrelerden interferon salınmış olsa bile antiviral yanıtın oluşabilmesi için IFNAR1/2 sinyalinden sonra STAT proteinlerinin aktive olması ve antiviral transkripsiyon kompleksinin çekirdeğe taşınması gerekir. Derlemeye göre VP24, karyopherin-α5 üzerindeki bir bağlanma bölgesini kullanarak fosforile STAT1 ile rekabete girer. Böylece STAT1 içeren kompleksin nükleer girişi engellenir ve interferon-stimüle genlerin etkili biçimde aktive edilmesi bozulur.
GP1,2 ve sGP neden yalnız giriş proteinleri değildir?
Virion yüzeyindeki GP1,2 hücreye giriş için gereklidir ancak derleme GP'nin aynı zamanda bağışıklık kaçışında çok katmanlı rol oynadığını belirtir. GP1 üzerindeki glikan başlığı ve yoğun O-glikozillenmiş müsin-benzeri bölge korunmuş epitoplara antikor erişimini azaltabilir. Salgılanan sGP, GP1 ile ortak N-terminal epitoplar taşıdığı için dolaşımdaki anti-GP antikorlarını bağlayan bir antijenik decoy görevi görebilir. Yüzey GP'si ayrıca MHC sınıf I ve β1-integrin gibi hücresel molekülleri fiziksel olarak maskeleyebilir ve konak kısıtlama proteini tetherin'in yeni virionları hücre yüzeyinde tutmasına karşı koyabilir.
Doğuştan bağışıklığın ilk hedef hücreleri
Derlemeye göre monositler, makrofajlar ve dendritik hücreler EBOV enfeksiyonunun erken ve önemli replikasyon alanlarındandır. VP35 ve VP24 tarafından interferon sisteminin baskılanması nedeniyle bu hücreler güçlü viral replikasyona izin verirken yeterli antiviral alarm oluşturamayabilir. Enfekte dendritik hücrelerin olgunlaşmasının bozulması, ko-stimülatör molekül artışının yetersiz kalması ve anormal sitokin profilleri daha sonraki T-hücresi yanıtının kurulmasını da zayıflatabilir.
“Sitokin fırtınası” burada ne anlama geliyor?
İnterferon ekseni baskılanmış olmasına rağmen enfekte monosit ve makrofajların diğer inflamatuvar yolları aşırı aktive olabilir. Kaynak, TNF-α, IL-1β, IL-6, IL-8 ve MCP-1 gibi mediyatörlerin artışını ve ciddi/ölümcül hastalıkta yüksek IL-10 ile IP-10 seviyelerini vurgular. Bu düzensiz sistemik inflamasyon damar geçirgenliğinin artmasına, yeni monositlerin aktive olmasına ve erken EVD'deki ateş, halsizlik ve gastrointestinal sıvı kaybı gibi sistemik belirtilere katkıda bulunabilir.
Koagülopati neden yalnız damar enfeksiyonu değildir?
Kaynak, Ebola'daki kanama bozukluğunu doğrudan ve yaygın endotelyal enfeksiyonla açıklamak yerine koagülasyon sisteminin düzensizliğiyle ilişkilendirir. Enfekte monosit ve makrofajların yüzeyinde tissue factor ekspresyonunun artması ekstrinsik koagülasyon yolunu aktive edebilir; yaygın fibrin oluşumu ve dissemine intravasküler koagülasyon gelişebilir. Pıhtılaşma faktörlerinin ve trombositlerin tüketimi kanamaya katkı sağlar. Endotelyal bozukluk ve damar geçirgenliğindeki artış ise sitokinler ve salgılanan GP gibi dolaylı mekanizmalarla güçlenebilir.
Lenfositler enfekte olmadan neden azalır?
Derlemenin dikkat çektiği özelliklerden biri, EBOV'un lenfositleri verimli biçimde enfekte etmemesine rağmen ölümcül EVD'de CD4+ ve CD8+ T hücreleri ile NK hücrelerinin büyük ölçüde azalabilmesidir. Kaynak bunu “bystander apoptosis” olarak ele alır. Yoğun inflamatuvar ölüm sinyalleri ve dendritik hücre desteğinin kaybı, virüsün doğrudan çoğalmadığı lenfositlerin kaybına yol açabilir.
Humoral yanıt sağkalımda nasıl farklılaşır?
Kaynağa göre sağ kalan hastalarda virüse özgü IgM ilk semptom haftasında görülebilir; daha güçlü ve kalıcı GP/NP'ye yönelik IgG yanıtı ikinci hafta sırasında ortaya çıkar ve viral temizlenmeyle aynı döneme denk gelebilir. Ölümcül vakalarda ise antikor yanıtı yeterince erken ortaya çıkmayabilir veya oluşan antikorlar koruyucu olmayan epitoplara yönelebilir. Derleme, erken ve doğru özgüllüğe sahip antikorların önemini monoklonal antikor tedavilerinin klinik başarısıyla da ilişkilendirir.
T-hücresi yanıtının miktarı mı, niteliği mi önemlidir?
Kaynak, ölümcül EVD'nin basit bir “bağışıklık felci” olmadığını vurgular. Fatal vakalarda da güçlü T-hücresi aktivasyonu görülebilir; ancak aktivasyonun niteliği farklıdır. Sağ kalanlarda daha erken ve kontrollü CD8+ T-hücresi aktivasyonu, korunmuş lenfosit sayıları ve hafıza yanıtına doğru kasılma görülürken; fatal seyirde aşırı fakat düzensiz aktivasyon, exhaustion göstergeleri, düşen lenfosit sayıları ve etkili antijene özgü işlev kaybı bildirilmiştir.
Sağkalım ile ölümcül seyri ayıran bağışıklık örüntüsü
| Alan | Sağkalımla ilişkilendirilen örüntü | Ölümcül seyirle ilişkilendirilen örüntü |
|---|---|---|
| Viral yük | Erken dönemde sınırlandırılmış | Kontrolsüz ve yüksek viremi |
| İnflamasyon | Kontrollü ve zamanla çözülen yanıt | Kendi kendini güçlendiren hiperinflamasyon |
| Antikor | Erken IgM ve daha sonra güçlü GP'ye özgü IgG | Geç, yetersiz veya koruyucu olmayan antikor yanıtı |
| T hücreleri | İşlevsel, antijene özgü yanıt ve hafıza gelişimi | Aşırı fakat düzensiz aktivasyon, exhaustion ve hücre kaybı |
| Lenfosit sayısı | Daha iyi korunur | Belirgin bystander apoptosis ve lenfosit kaybı |
| Koagülasyon | Daha kontrollü | Koagülopati / DIC gelişimi |
| Sonuç | Viral temizlenme ve iyileşme | Şok ve çoklu organ yetmezliğine ilerleme |
Çalışmanın Yöntemi ve Bulguları
Bu kaynak özgün deneysel araştırma olmadığı için klasik bir “Materials and Methods” bölümü bulunmamaktadır. Yazarlar moleküler viroloji, immünoloji, insan kohortları, hayvan çalışmaları, aşı deneyleri ve randomize klinik araştırmalardan oluşan literatürü anlatısal biçimde sentezlemektedir. Kaynak 46 referans listeler; ancak sistematik veri tabanı taraması, arama dizgesi, dahil etme/dışlama ölçütleri, PRISMA akış şeması, risk-of-bias değerlendirmesi veya meta-analiz protokolü bildirmez. Bu nedenle çalışma sistematik derleme veya meta-analiz olarak değil, bilimsel anlatısal derleme olarak okunmalıdır.
Derlemenin kullandığı kanıt katmanları
| Kanıt türü | Makaledeki kullanım örneği | Ne gösterir? |
|---|---|---|
| Moleküler / hücresel çalışmalar | VP35, VP24, GP, NPC1, tetherin mekanizmaları | Viral protein–konak etkileşimlerinin biyolojik mekanizmasını destekler. |
| Hayvan / primat çalışmaları | Aşı koruması, antikor tedavisi, koagülasyon mekanizmaları | Mekanizma ve müdahalenin canlı sistemdeki etkisini inceler; insan klinik sonucu değildir. |
| İnsan gözlemsel çalışmaları | Viral yük, sitokin, T-hücresi ve antikor profilleri | Sağkalım ve ölümcül seyirle ilişkili insan immünolojik örüntülerini gösterir. |
| Randomize klinik deney | PALM | Terapötik kollar arasında hasta mortalitesini karşılaştıran doğrudan klinik kanıt sağlar. |
| Aşı saha deneyi | Guinea ring vaccination | Salgın ortamında aşının korunma etkisini değerlendiren klinik/saha kanıtı sağlar. |
Aşılar hangi immünolojik mantığı kullanıyor?
Derlemenin çerçevesinde aşılar, virüsün doğal enfeksiyon sırasında oluşturduğu bağışıklık kaçış koşullarından bağımsız şekilde GP1,2 antijenini bağışıklık sistemine sunarak önceden koruyucu antikor ve hücresel yanıt oluşturmayı amaçlar. Kaynak iki ana lisanslı yaklaşımı öne çıkarır: rVSV-ZEBOV temelli Ervebo ile heterolog Ad26.ZEBOV / MVA-BN-Filo rejimi olan Zabdeno + Mvabea.
| Ürün | Tür | Platform / içerik | Kaynakta verilen ilk onay | Temel kullanım |
|---|---|---|---|---|
| Ervebo (rVSVΔG-ZEBOV-GP) | Canlı rekombinant tek doz aşı | EBOV GP1,2 ifade eden VSV vektörü | EMA ve FDA, 2019; WHO prequalification | EBOV kaynaklı EVD'nin önlenmesi / ring vaccination |
| Zabdeno + Mvabea | Heterolog iki doz prime–boost aşı | Ad26.ZEBOV prime + MVA-BN-Filo boost | EMA, 2020 | EVD'nin önlenmesi |
| Inmazeb (REGN-EB3) | Üçlü monoklonal antikor kokteyli | Atoltivimab + maftivimab + odesivimab | FDA, 2020 | EBOV kaynaklı EVD tedavisi |
| Ebanga (ansuvimab; mAb114) | Tek insan monoklonal antikoru | GP1'e karşı antikor | FDA, 2020 | EBOV kaynaklı EVD tedavisi |
Ervebo için kaynakta hangi klinik kanıt anlatılıyor?
Derleme, 2015 Guinea salgını sırasında yapılan açık etiketli, küme-randomize ring vaccination çalışmasını aktarır. Doğrulanmış vakaların temaslıları ve temaslıların temaslılarından oluşturulan kümeler hemen veya gecikmeli aşılamaya atanmıştır. Kaynak, hemen aşılanan grupta aşılamadan sonraki 10. günden itibaren vaka görülmediğini ve bunun yüksek koruyuculukla uyumlu olduğunu belirtir. Bu bulgu, aşının “her koşulda %100 koruma sağlar” biçiminde genellenmemelidir; çalışmanın kendi tasarımı ve zaman penceresi içinde yorumlanmalıdır.
Monoklonal antikor tedavilerinin mantığı
Monoklonal antikor tedavileri hastanın etkili humoral yanıt oluşturmasını beklemek yerine belirli EBOV GP epitoplarını hedefleyen hazır antikorları verir. ZMapp üç kimerik antikordan oluşan önceki kuşak bir kokteyldir. mAb114, 1995 Kikwit salgınından sağ kalan bir kişiden klonlanan tam insan antikorudur ve GP1 baş bölgesini hedefler. REGN-EB3 ise farklı GP epitoplarına bağlanan atoltivimab, maftivimab ve odesivimab antikorlarından oluşan üçlü kokteyldir.
PALM Randomize Deneyi Ne Gösterdi?
PALM çalışması, 2018–2020 DRC salgınında optimize destek tedavisine eklenen mAb114 ve REGN-EB3 kollarının ZMapp kontrol koluna göre daha düşük 28 günlük mortaliteyle ilişkili olduğunu gösteren randomize klinik kanıttır. Derlemenin ana metni 681 hastanın randomize edildiğini bildirir; kaynak Şekil 6 ise grafik başlığında N=673 kullanır ve bu farkı derleme içinde açıklamaz. Ana metinde 28 günlük mortalite ZMapp için %49,7, remdesivir için %53,1, mAb114 için %35,1 ve REGN-EB3 için %33,5 olarak verilir.
| Tedavi kolu | Tüm analiz edilen hastalarda 28 günlük mortalite | Düşük başlangıç viral yükü alt grubunda mortalite | Alt grup tanımı |
|---|---|---|---|
| ZMapp | %49,7 | %24,5 | NP cycle threshold > 22 |
| Remdesivir | %53,1 | %29,0 | NP cycle threshold > 22 |
| mAb114 / ansuvimab | %35,1 | %9,9 | NP cycle threshold > 22 |
| REGN-EB3 | %33,5 | %11,2 | NP cycle threshold > 22 |
Neden erken tedavi önemli görünüyor?
Derlemede düşük başlangıç viral yüküyle başvuran hastalarda antikor tedavisi kollarındaki mortalitenin belirgin biçimde daha düşük olduğu vurgulanmaktadır. Ana metin ayrıca semptomların başlamasından hastaneye kabulüne kadar geçen her ek günün ölüm odds'unda yaklaşık %11 artışla ilişkili olduğunu aktarır. Bu değer derlemenin kendi regresyon analizi değildir; PALM çalışmasından aktarılan klinik bulgudur.
Remdesivir bu derlemede nasıl konumlandırılıyor?
Remdesivir viral L polimerazını hedefleyen nükleotid analoğu bir ön ilaçtır. Kaynak, erken uygulandığında rhesus macaque modelinde güçlü koruma gösterdiğini ancak PALM klinik deneyinde antikor tedavilerine göre daha yüksek mortalite kolunda kaldığını vurgular. Bu örnek, hayvan modelindeki antiviral başarı ile insan klinik sonucunun aynı şey olmadığını ve tedavinin zamanlaması ile hastalığın immünolojik evresinin önemli olduğunu göstermektedir.
Kaynağın yazıldığı dönemde kalan karşı önlem boşlukları
Derleme, lisanslı aşı ve antikor karşı önlemlerinin esas olarak EBOV yani Zaire ebolavirus hedefli olduğunu belirtir. Kaynağın Haziran 2026 bağlamında SUDV ve BDBV için onaylanmış aşı veya tedavi bulunmadığı ifade edilmekte; Bundibugyo yanıtı için MBP134, maftivimab ve remdesivir gibi adayların değerlendirilmesinin gündemde olduğu aktarılmaktadır. Bu ifadeler yayın tarihindeki durumu temsil eder ve daha sonraki düzenleyici gelişmelerin yerine kullanılamaz.
Viral kalıcılık neden akut enfeksiyondan sonra da önemlidir?
Kan dolaşımındaki virüsün temizlenmesi EBOV ile konak arasındaki ilişkinin tamamen sona erdiği anlamına gelmeyebilir. Kaynak viral RNA'nın testis, göz, santral sinir sistemi, plasenta ve anne sütü gibi bağışıklık gözetiminin farklı olduğu bölgelerde aylar veya yıllar boyunca saptanabildiğini anlatır. Erkek sağ kalanların semeninde viral RNA'nın 6–12 ay boyunca ve bazı kişilerde daha uzun süre saptanabildiği; cinsel yolla bulaşmanın belgelenmiş olduğu belirtilir.
Derleme ayrıca 2021 Guinea salgınının genomik epidemiyolojiyle 2013–2016 epidemisinden sağ kalan bir kişide uzun süreli viral kalıcılık ve yeniden aktivasyonla ilişkilendirilmesini önemli bir örnek olarak kullanır. Kaynağın yorumunda bu olay, virüsün tek bir konakta en az yaklaşık beş yıl sessiz kalabildiğini düşündüren güçlü kanıttır.
Post-Ebola sendromu hangi sorunları içerebilir?
Derlemede sağ kalanlarda üveit, eklem ve kas-iskelet ağrıları, nörolojik ve bilişsel sorunlar ile işitme kaybı gibi uzun dönem sekeller bildirilir. Kaynak özellikle bazı üveit vakalarında göz sıvısında virüs saptanabildiğini hatırlatır. Bu nedenle sağ kalanların uzun dönem takibi yalnız rehabilitasyon konusu değil, bazı koşullarda enfeksiyon kontrolü ve viral kalıcılığın anlaşılması açısından da önemlidir.
Derlemenin doğrudan desteklediği ana bilimsel çerçeve
- EBOV'un yaklaşık 18,9 kb'lık negatif anlamlı RNA genomu yedi ana gen içerir.
- GP/NPC1 ekseni endozomal hücre girişinde merkezî öneme sahiptir.
- VP40 virion montajı ve tomurcuklanmanın ana yapısal düzenleyicilerindendir.
- VP35 ve VP24 tip-I interferon sisteminin farklı basamaklarını baskılar.
- GP1,2 ve sGP antikor kaçışı ve konak kısıtlama mekanizmalarıyla etkileşir.
- Fatal EVD yalnız yetersiz bağışıklık değil, aynı zamanda aşırı ve düzensiz inflamasyonla karakterizedir.
- Sağkalım erken humoral yanıt, kontrollü inflamasyon ve işlevsel T-hücresi yanıtıyla ilişkilidir.
- GP hedefli aşılama ve monoklonal antikor tedavileri moleküler immünoloji bilgisinin doğrudan klinik uygulamalarındandır.
- PALM çalışması mAb114 ve REGN-EB3 için ZMapp'a kıyasla daha düşük 28 günlük mortalite göstermiştir.
- Viral kalıcılık ve post-Ebola sekelleri akut hastalık sona erdikten sonra da klinik önem taşır.
Derlemenin tek başına kanıtlamadığı şeyler
- Derleme, VP35 veya VP24 mekanizmalarını kendi laboratuvarında yeniden deneysel olarak ölçmemiştir.
- Derleme yeni bir aşı veya ilaç geliştirmemiştir.
- Derleme kendi hasta kohortunda mortalite analizi yapmamıştır.
- PALM mortalite değerleri bu derlemenin değil, kaynak gösterilen randomize klinik çalışmanın sonuçlarıdır.
- Şematik bağışıklık eğrileri ham hasta zaman serisi olarak yorumlanamaz.
- Kaynakta belirtilen 2025–2026 salgın ve ürün erişimi bilgileri sonsuza kadar güncel kabul edilemez.
- EBOV için etkili olan lisanslı ürünlerin diğer ebolavirus türlerinde otomatik olarak aynı klinik etkinliğe sahip olduğu sonucuna varılamaz.
Derlemenin yöntemsel sınırlılıkları
- Makale sistematik derleme protokolü raporlamamaktadır.
- Veri tabanı arama stratejisi ve tarih aralığı verilmemiştir.
- Dahil etme ve dışlama kriterleri belirtilmemiştir.
- Kaynak çalışmalar için formal risk-of-bias veya kalite puanlaması raporlanmamıştır.
- Meta-analiz yapılmamıştır.
- Moleküler, hayvan, gözlemsel insan ve randomize klinik veriler aynı anlatıda kullanıldığı için her sonucun kanıt düzeyi ayrıca ayırt edilmelidir.
- Şekil 5 gibi bazı grafikler şematiktir; sayısal hasta zaman serisi olarak yeniden hesaplanamaz.
- PALM bölümünde ana metindeki 681 randomize hasta ile Şekil 6'daki N=673 etiketi arasındaki fark bu derleme içinde açıklanmamıştır.
Kaynak ve Yöntem Notu
Özgün başlık: Molecular Evasion and Immune Responses to Ebola Virus- an Approach to Ebola Evasion Mechanism and Immunotherapeutic
Yazarlar: Muhammad Haidar Zaman; Nawab Ali; Bilal Ahmed; Chengyuan Li; Liang Fenghuitong; Hamza.
Sorumlu yazar: Muhammad Haidar Zaman.
Kurumlar: Department of Health and Biological Sciences, Abasyn University, Peshawar, Pakistan; IBD-NSFZ, Nanjing Normal University, Nanjing, PR China; Department of Physiotherapy, Faculty of Rehabilitation and Allied Health Sciences, Riphah International University, Malakand, Pakistan; School of Medicine, Qilu Institute of Technology, Jinan, PR China; Faculty of Medicine, School of Biomedical Engineering, The University of Hong Kong, PR China; Institute of Biotechnology and Genetic Engineering, The University of Agriculture, Peshawar, Pakistan.
Dergi: Journal of Carcinogenesis.
ISSN: 1477-3163.
Cilt / sayı: Volume 25, Issue 1.
Sayfalar: 630–640.
Yayın tarihi: 26 Haziran 2026.
DOI: 10.66838/J.Carcinog.25.1.630-640
Yayıncı bilgisi: Kaynak PDF footer'ında içerik Carcinogenesis Press için Wolters Kluwer-Medknow tarafından yayımlanmış olarak gösterilmektedir.
Kaynak türü: Moleküler viroloji, immünoloji, aşılar ve immünoterapötik karşı önlemleri sentezleyen anlatısal derleme. Resmî site makaleyi “Articles” bölümünde listelemektedir; kaynak metin kendisini “review” olarak tanımlar.
Hakemlik: Journal of Carcinogenesis kendisini hakemli bir dergi olarak tanımlar ve gönderilen makalelerin iki dış uzman tarafından değerlendirildiğini belirtir. Kullanılan belge preprint değildir.
Lisans: Derginin güncel açık erişim politikası Creative Commons Attribution-NonCommercial-ShareAlike 4.0 (CC BY-NC-SA 4.0) lisansını belirtir. Verianla'nın ticari/non-commercial statüsü bu makale kapsamında varsayılmadığı için kaynak şekiller doğrudan yeniden kullanılmamış; bilimsel ilişkiler bağımsız SVG ve HTML yapılarıyla yeniden ifade edilmiştir.
Finansman: Yüklenen 11 sayfalık kaynakta ayrı ve açık bir Funding beyanı görülmemektedir. Finansman bulunmadığı sonucu buradan çıkarılmamıştır.
Çıkar çatışması: Yüklenen kaynakta ayrı ve açık bir Conflict of Interest beyanı görülmemektedir. Çıkar çatışması olmadığı varsayılmamıştır.
Veri erişilebilirliği: Bu çalışma yeni bir veri seti üretmeyen bir derlemedir ve yüklenen belgede ayrı bir Data Availability beyanı bulunmamaktadır.
Yazar katkıları: Kaynakta CRediT veya ayrıntılı bireysel yazar katkısı bölümü bulunmamaktadır; bu nedenle katkı rolleri tahmin edilmemiştir.
Referans sayısı: Kaynak 46 bibliyografik referans listeler.
Kaynak Şekil 1: Yaklaşık 18,9 kb EBOV genomunun yedi genli düzenini ve GP RNA editing alanını gösterir. Verianla'da aynı bilimsel ilişkiler farklı kompozisyonda, ölçeksiz SVG olarak yeniden kurulmuştur.
Kaynak Şekil 2: GP1,2 yüzey çıkıntıları, lipid zarf, VP40/VP24 matriks tabakası ve RNP kompleksinden oluşan filamentöz virion mimarisini gösterir. Verianla'da özgün açıklayıcı şema kullanılmıştır.
Kaynak Şekil 3: Tutunmadan makropinositoz, NPC1 bağımlı füzyon, transkripsiyon, replikasyon, VP40 montajı ve tomurcuklanmaya kadar dokuz basamaklı yaşam döngüsünü gösterir. Bilimsel sıra Verianla'da numaralı işlem akışıyla aktarılmıştır.
Kaynak Şekil 4: VP35'in interferon indüksiyonuna, VP24'ün interferon sinyaline ve GP/sGP'nin antikor/tetherin eksenine müdahalesini gösterir. Verianla'da bu ilişkiler kaynak kompozisyonu kopyalanmadan yeniden çizilmiştir.
Kaynak Şekil 5: Sağ kalan ve fatal EVD'de viremi, sitokin, lenfosit ve antikor yanıtlarının şematik zaman ilişkisini gösterir. Ham hasta zaman serisi bulunmadığından Verianla kesin eğri koordinatları üretmemiş; bilimsel mesajı karşılaştırmalı tabloyla aktarmıştır.
Kaynak Şekil 6: PALM tedavi kollarındaki 28 günlük mortaliteyi ve 2019–2026 arasındaki karşı önlem kilometre taşlarını gösterir. Mortalitenin açıkça etiketlenmiş yüzdeleri bağımsız Verianla grafiğinde yeniden çizilmiştir.
Önemli kaynak-içi sayı notu: PALM bölümü ana metinde 681 hastanın randomize edildiğini bildirirken kaynak Şekil 6 başlığında N=673 görünmektedir. Bu derleme farkın nedenini açıklamaz. Verianla bu iki sayıyı sessizce uzlaştırmamıştır.
Temel yöntemsel sınır: Çalışma sistematik derleme protokolü, formal literatür arama yöntemi, risk-of-bias analizi veya meta-analiz raporlamaz. Moleküler mekanizmalar, klinik gözlemler ve randomize deney sonuçları farklı kanıt seviyelerinde değerlendirilmelidir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir