


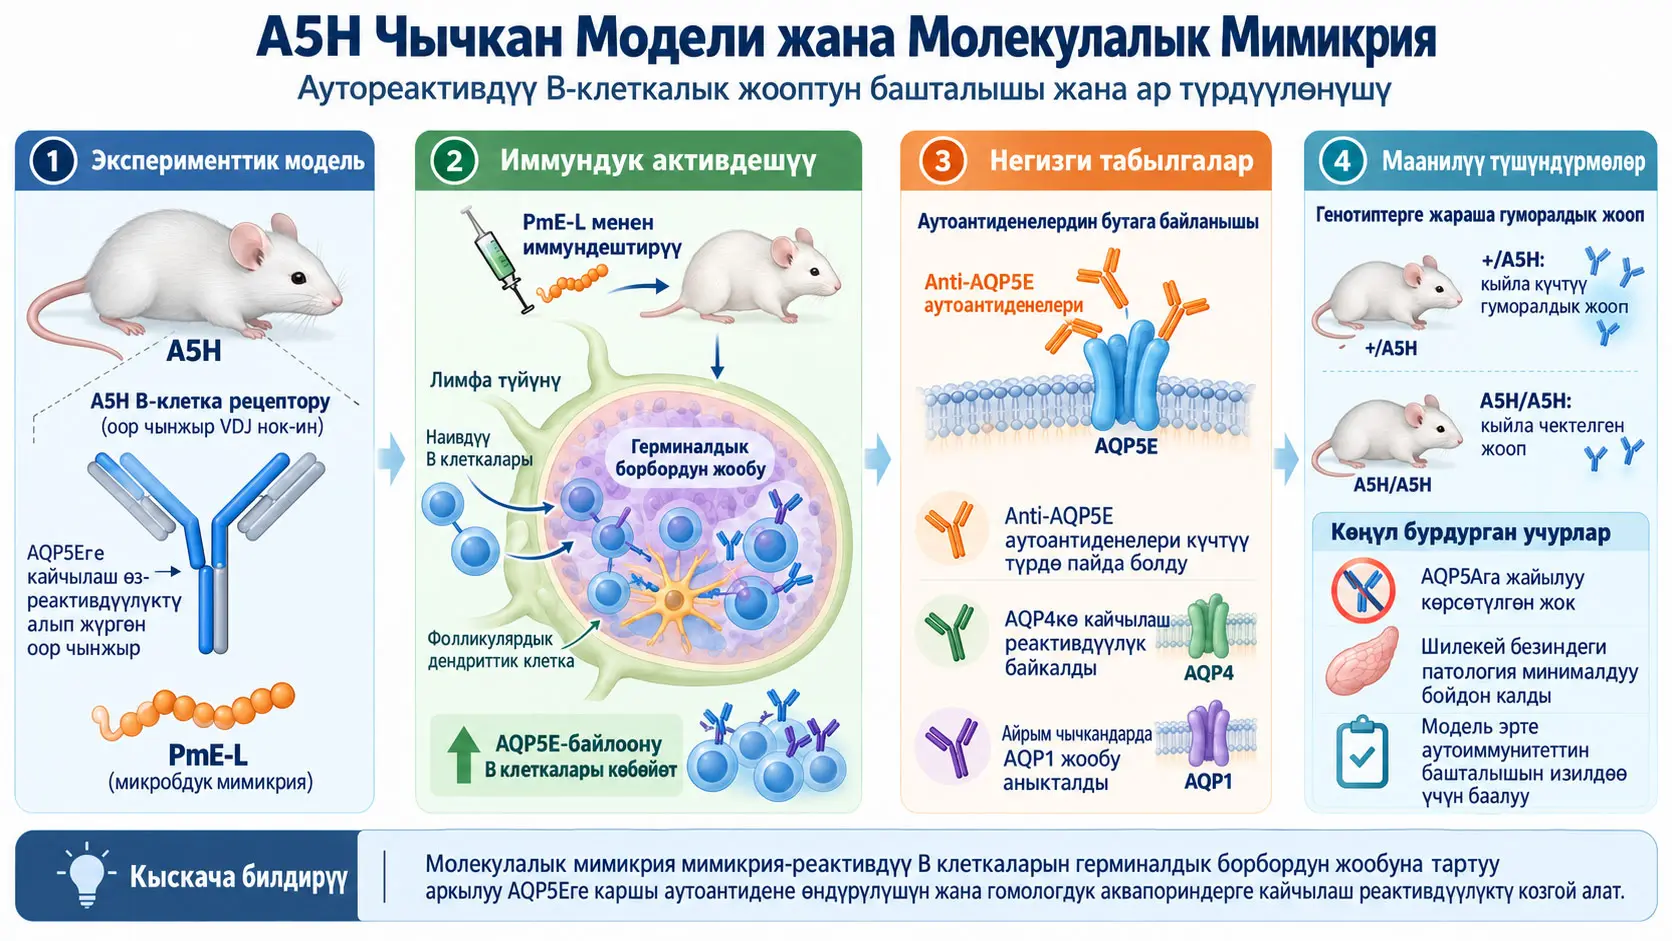
A5H чычкан модели, aquaporin-5тин (AQP5) “E” эпитобуна байланыша алган антителодон алынган оор чынжыр VDJ ырааттуулугу чычкандын иммуноглобулин оор чынжыр локусуна киргизилген B-клетка рецепторунун (B-cell receptor, BCR) knock-in модели болуп саналат. Модель B клеткалары микробдук окшоштуруучу пептид болгон PmE-Lди артыкчылыктуу тааныганы менен AQP5ке карата жашыруун кайчылаш өз-реактивдүүлүктү алып жүрө алган эрте аутоиммундук процессти изилдөө үчүн иштелип чыккан. Изилдөөнүн негизги табылгасы — PmE-L менен иммунизациядан кийин бул окшоштуруу-реактивдүү B клеткалары герминалдык борбордун жообуна катышып, күчтүү anti-AQP5E аутоантителолорун түзүшү жана антитело жообу гомологиялуу aquaporinдер AQP4кө жана айрым чычкандарда AQP1ге чейин кеңейиши мүмкүн экени. Бирок AQP5тин башка эпитобу болгон AQP5Aга интрамолекулалык эпитоп жайылышы байкалган эмес; аутоантителолордун шилекей безинин тканына топтолушу жана Sjögren сымал без патологиясы минималдуу бойдон калган.
Молекулалык окшоштуруу (molecular mimicry) — микробдук антиген менен организмдин өз антигенинин түзүлүштүк же ырааттуулук окшоштугунан улам бир эле иммундук жооп экөөнү тең тааный ала турган көрүнүш. Бул изилдөөдө бактериялык келип чыгышы бар PmE-L/PmE аймагы менен AQP5Eнин ортосундагы окшоштук кайчылаш реактивдүү B клеткалары кантип пайда болуп, активдеше аларын изилдөө үчүн колдонулган. PmE менен AQP5E болгону бир аминокислота менен айырмаланат; изилдөөдө колдонулган Clone 44төн алынган оор чынжыр PmEге AQP5Eге караганда бир аз күчтүүрөөк реактивдүүлүк көрсөтөт.
A5H чычкандарында жалпы B-клетка өнүгүүсү негизинен сакталган. Сөөк чучугу, лимфа түйүнү жана көк боордогу жалпы, жетиле элек жана жетилген B-клеткалардын санында чоң борбордук делеция же өнүгүүнүн токтошу аныкталган эмес. Бирок өткөөл B-клетка компартментинде T1 клеткаларынын көбөйүшү, T3 клеткаларынын азайышы жана көк боор менен лимфа түйүнүндө IgD+IgMlo фенотиптүү анергияга байланышкан жетилген B клеткаларынын азайышы A5H оор чынжырын алып жүргөн окшоштуруу-реактивдүү клеткалар периферияда чоңураак пул катары сакталып кала аларын көрсөткөн.
Тынч абалда A5H чычкандарында микробдук PmE-Lге каршы антителолор мурда эле аныкталган, бирок ELISA менен anti-AQP5E аутоантителолору аныкталган эмес. PmE-L менен бир жолку иммунизациядан кийин +/A5H чычкандарынын баары 13-күнгө чейин anti-AQP5E аутоантителолорун түзүп, жооп 21-күнү дагы күчөгөн. Ошол эле тажрыйбада жапайы типтеги чычкандардын бирөөсүндө гана anti-AQP5E жообу байкалган. Лимфа түйүнүндөгү жалпы B-клетка саны олуттуу өзгөрбөгөнү менен, герминалдык борбор B клеткалары жана герминалдык борбордун ичиндеги AQP5E-байлоочу B клеткалары +/A5H чычкандарында көбөйгөн.
Изилдөөнүн маанилүү жыйынтыктарынын бири — гетерозиготалуу +/A5H чычкандар гомозиготалуу A5H/A5H чычкандарга караганда күчтүүрөөк аутоантитело жообун өнүктүргөнү. +/A5H чычкандарында anti-AQP5E, anti-AQP4 жана streptavidinге каршы антитело жооптору күчтүүрөөк. Авторлор муну A5H оор чынжыр аллели менен эндогендик оор чынжыр аллели бир эле B-клетка популяциясында бирге экспрессиялана ала турган allelic inclusion мүмкүнчүлүгү менен байланыштуу болушу мүмкүн деп талкуулашат. Бирок изилдөө allelic inclusion механизмин репертуарды секвенирлөө аркылуу түз көрсөтө алган эмес; ошондуктан бул түшүндүрмө күчтүү биологиялык интерпретация, бирок түз далилденген себептик механизм эмес.
AQP5Eге каршы өнүккөн жооп AQP5 менен гана чектелген эмес. Серум IgG гомологиялуу AQP4кө кайчылаш байланышкан жана +/A5H чычкандарында AQP4 жообу A5H/A5H чычкандарына караганда күчтүүрөөк болгон. AQP1ге төмөн деңгээлдеги байланыш айрым жаныбарларда байкалган; PmE-L иммунизациясынан кийин эки ургаачы чычканда жогорку anti-AQP1 деңгээли аныкталган. Тескерисинче, ошол эле AQP5 белогунун өзүнчө “A” эпитобуна каршы anti-AQP5A антителосу бир да чычканда көрсөтүлгөн эмес. Бул айырма гомологиялуу белоктордун ортосунда кайчылаш реактивдүүлүк өнүгүшү мүмкүн болсо да, ошол эле белоктун башка эпитопторуна карай интрамолекулалык жайылуу бул тажрыйбада болбогонун көрсөтөт.
Жогорку anti-AQP5E антитело деңгээлдерине карабастан, гистологиялык жыйынтыктар чектелүү. Шилекей бездеринде лимфоцит инфильтрациясы минималдуу бойдон калган; бир гана чычканда focus score ≥1 байкалган жана IgG ткандын топтолушу бир нече чычканда гана аныкталган. Ошондуктан изилдөө “AQP5 аутоантителолору жалгыз өзү Sjögren оорусун пайда кылат” деген жыйынтыкты колдобойт. Модель негизинен молекулалык окшоштуруу аутореактивдүү B-клетка жообун кантип баштап, түрлөнтө аларын изилдеген эрте аутоиммундук модель болуп саналат.
Изилдөөнүн негизги көйгөйү эмнеде?
Иммундук система өнүгүү учурунда өз-антигендерди тааный алган B клеткаларын түзө алат. Кадимки шартта клондук делеция, рецепторду редакциялоо, анергия жана ингибирлөөчү рецептор сигналдашуусу сыяктуу толеранттуулук механизмдери бул клеткалардын зыяндуу аутоантителолорду өндүрүшүнө жол бербейт. Бирок микробдук антиген организмдин өз белокторунун кайсы бир бөлүгүнө жетиштүү окшош болсо, бөтөн антигенге каршы башталган жооп өз-антигенди да тааный алат. Бул көрүнүш молекулалык окшоштуруу деп аталат.
Илимий боштук “молекулалык окшоштуруу аутоиммунитетке алып келиши мүмкүнбү?” деген суроо менен гана чектелбейт. Негизги суроо — башында микробдук окшоштурууга жооп берген B-клетка пулу кантип активдешип, өз-антигендерге каршы жооп өнүктүрөрү жана бул жооп кийин башка өз-антигендерге кантип кеңейиши мүмкүн экени. A5H модели бул эрте окуяларды B-клетка деңгээлинде байкоо үчүн иштелип чыккан.
Молекулалык Окшоштуруу B Клеткасын Кантип Аутореактивдүү Кыла Алат?
Молекулалык окшоштуруу B-клетка рецепторуна микробдук антигенди күчтүү таанып, ага окшош өз-эпитопту төмөнүрөөк, бирок маанилүү кайчылаш реактивдүүлүк менен таанууга мүмкүндүк бере алат; A5H моделинде PmE-L/PmEни артыкчылыктуу тааныган B клеткалары иммунизациядан кийин герминалдык борбор жообуна катышканда AQP5Eге каршы айкын аутоантитело жообу пайда болгон.
AQP5 деген эмне?
Aquaporin-5 (AQP5) aquaporin белок үй-бүлөсүнүн мүчөсү. Изилдөө өзгөчө AQP5тин мурда карталанган эки экстрацеллюлярдык эпитобунун “E” эпитобун, башкача айтканда AQP5Eни негизги объект катары алат. AQP5A болсо ошол эле белоктун башка экстрацеллюлярдык эпитобу болуп, изилдөөдө интрамолекулалык эпитоп жайылышын текшерүү үчүн өзүнчө бута катары өлчөнгөн.
PmE жана PmE-L деген эмне?
PmE — Prevotella melaninogenica aquaporinинен алынган жана AQP5Eни окшоштурган микробдук B-клетка эпитобу. PmE менен AQP5Eнин ортосунда бир гана аминокислота айырмасы бар. PmE-L болсо эксперименттик иммунизацияда колдонулган, B-клетка жана T-клетка эпитопторун камтыган узунураак пептид түзүлүшү. Булак PmE жана AQP5Eде B-клетка эпитобу гана бар экенин, ал эми PmE-L B- жана T-клетка эпитопторун тең камтый турганын атайын белгилейт.
BCR деген эмне?
B-cell receptor (BCR) — B клеткасынын бетиндеги антиген таануу рецептору. Аны иммуноглобулиндин мембранага байланышкан формасы катары кароого болот. BCRдин антигенге байланышуучу бөлүгүнүн ар түрдүүлүгү иммуноглобулиндин оор жана жеңил чынжыр гендеринин кайра түзүлүшү аркылуу пайда болот.
VDJ эмнени билдирет?
Иммуноглобулин оор чынжырынын антиген таануучу өзгөрмө бөлүгү V (variable), D (diversity) жана J (joining) ген сегменттеринин кайра түзүлүшү аркылуу түзүлөт. “VDJ knock-in” деген түшүнүк бул изилдөөдө белгилүү бир антитело оор чынжырына тиешелүү даярдалган VDJ ырааттуулугун чычкандын табигый Igh локусуна багытталган түрдө киргизүүнү билдирет.
Clone 44 эмне үчүн тандалган?
Clone 44 мурда PmE колдонулуп phage-display антитело китепканасынан бөлүнүп алынган AQP5E-реактивдүү антитело клону. Оор чынжырдын өзгөрмө бөлүгүндө IGHV5-6, IGHD2-3 жана IGHJ2ден келип чыккан жалпы жети аминокислота мутациясы; жеңил чынжырдын өзгөрмө бөлүгүндө IGKV14–111 жана IGKJ4төн келип чыккан төрт аминокислота мутациясы бар.
Clone 44төн алынган рекомбинанттык IgG PmEге да, AQP5Eге да байланышат, бирок PmEге бир аз күчтүүрөөк реактивдүүлүк көрсөтөт. Байланышы жок AQP5A эпитобуна байланышпайт. Бул өзгөчөлүк моделди түздөн-түз өз-антигенди жогорку аффинитет менен тааныган классикалык BCR моделинен айырмалайт: A5H рецептору микробдук окшоштурууну артык көргөнү менен өз-AQP5Eге кайчылаш реактивдүүлүктү алып жүрөт.
A5H knock-in чычканы кантип түзүлгөн?
AQP5E-байлоочу BCRден алынган оор чынжыр VDJ ырааттуулугу эки гомологиялык колу бар багыттоочу векторго киргизилип, C57BL/6J чычкандарынын Igh локусуна багытталган. Пайда болгон линия A5H деп аталган. Туура генетикалык интеграция жана окуу рамкасынын сакталышы бута локустун Sanger секвенирлөөсү менен ырасталган.
A5H аллели PCR генотиптөөдө 361 база жуптук продукт, жапайы тип аллели болсо 234 база жуптук продукт берет. Изилдөөдө 6–21 жумалык эркек жана ургаачы чычкандар колдонулган.
VH бөлүгүндө мүмкүн болгон оор чынжыр генин алмаштырууну азайтуу максатында ички гептамер аймагында TGT → TGC үнсүз мутациясы түзүлгөн. Коддолгон аминокислотаны өзгөртпөгөн бул нуклеотид өзгөрүүсү VH replacement механизмине байланыштуу ырааттуулук сигналын өзгөртүү үчүн колдонулган.
A5H чычкандарында оор жана жеңил чынжыр кандай жүрөт?
A5H линиясындагы B клеткалары Clone 44төн алынган оор чынжырды экспрессиялап жатканда, жеңил чынжырлар эндогендик түрдө кайра түзүлө берет. Бул детал абдан маанилүү; анткени бекитилген оор чынжырдын ар башка табигый жеңил чынжырлар менен жупташуусу, бирдей оор чынжырга карабастан ар башка B клеткаларында антигенге байланышуу касиеттеринин айырмаланышына алып келиши мүмкүн.
Knock-in ырааттуулугунун табигый Igh локусуна багытталышы ошондой эле герминалдык борбор учурунда жүрө алган соматикалык гипермутация, аффинитеттин жетилиши жана изотип алмашуусу сыяктуу процесстердин моделде иштешине шарт түзөт.
Соматикалык гипермутация деген эмне?
Соматикалык гипермутация — активдешкен B клеткалары иммуноглобулиндин өзгөрмө бөлүгүнүн гендеринде жогорку жыштыкта чекиттик мутацияларды түзгөн герминалдык борбор процесси. Пайда болгон BCR варианттарынын ичинен антигенге жакшыраак байланыша алган клеткалар тандалышы мүмкүн.
Аффинитеттин жетилиши деген эмне?
Аффинитеттин жетилиши — герминалдык борбор реакциясы учурунда соматикалык гипермутация жана тандалуу натыйжасында антигенге жогорку аффинитет менен байланыша алган B-клетка клондорунун көбөйүшү. Бул изилдөө ар бир антитело клонунун мутация тарыхын түз секвенирлеген эмес; бирок A5H системасынын табигый Igh локусунда курулушу бул биологиялык процесстерге мүмкүнчүлүк берет.
Изотип алмашуусу деген эмне?
Class-switch recombination же изотип алмашуусу B клеткасы антигенди таануу өзгөчөлүгүн негизинен сактап туруп, антителонун туруктуу оор чынжыр бөлүгүн өзгөртүшү. Мисалы, IgM түрүндөгү жооп ар башка эффектордук функциялары бар IgG класстарына өтүшү мүмкүн.
Анергия Деген Эмне жана A5H Чычкандарында Эмне Үчүн Маанилүү?
B-клетка анергиясы — өз-антигенди тааный алган B клеткасын толугу менен физикалык жок кылуунун ордуна функционалдык жактан жооп бере албаган же алсызыраак жооп берген абалда кармап туруучу перифериялык толеранттуулук механизми; A5H чычкандарында анергияга байланышкан IgD+IgMlo жетилген B-клетка компартментинин азайышы микробдук окшоштурууга реактивдүү жана жашыруун өз-реактивдүүлүктү алып жүргөн чоңураак B-клетка пулунун иммунизацияга жооп бере алышы менен байланыштуу.
Борбордук делеция болдубу?
A5H чычкандарында жалпы B-клетка саны жана жетиле элек/жетилген B-клетка катыштары сөөк чучугунда, көк боордо жана лимфа түйүнүндө негизинен сакталган. Бул жыйынтык айкын борбордук клондук делеция же жалпы B-клетка өнүгүү бөгөтү жок экенин колдойт.
Өткөөл T1, T2 жана T3 B клеткалары деген эмне?
Изилдөөдө жетиле элек өткөөл B клеткалары IgM жана CD23 экспрессиясына жараша классификацияланган: T1 клеткалары IgMhiCD23−, T2 клеткалары IgMhiCD23+, T3 клеткалары болсо IgMloCD23+ деп аныкталган. A5H чычкандарында T1 клеткаларынын үлүшү көбөйүп, T3 клеткаларынын үлүшү азайган.
Фолликулярдык жана маргиналдык зона B клеткалары деген эмне?
Көк боордогу жетилген B клеткаларынын арасында фолликулярдык B клеткалары жана маргиналдык зона B клеткалары (MZB) ар башка иммунологиялык компартменттерди билдирет. Изилдөөдө MZB клеткалары IgMhiCD23−, фолликулярдык клеткалар IgMint/loCD23+ фенотиби менен аныкталган. A5H чычкандарында көк боордун MZB компартменти кеңейип, көк боордогу фолликулярдык B клеткалары азайган; лимфа түйүнүнүн фолликулярдык клеткалары болсо олуттуу өзгөргөн эмес.
Антигенге байланышуу кантип текшерилди?
Жалгыз клеткалуу суспензиялар сөөк чучугунан, көк боордон жана лимфа түйүндөрүнөн даярдалып, 40 μm клетка фильтринен өткөрүлгөн. B клеткалары FITC менен белгиленген PmE-L жана Cy5 менен белгиленген AQP5E менен инкубацияланып, агымдык цитометрия аркылуу анализделген.
100 nM сыяктуу селективдүүлүгү төмөнүрөөк проб шартында PmE-Lге байланышкан клеткалар +/A5H жана A5H/A5H чычкандарынын көп B-клетка компартменттеринде көбөйгөн. AQP5E-байлоочу клеткалардын көбөйүшү болсо өзгөчө +/A5H көк боорунун жалпы жана жетилген B-клетка компартментинде айкын болгон.
Жогорку селективдүүлүктү камсыз кылган 10 nM проб шартында PmE-Lге байланышуу генотиптер арасында көбүрөөк окшош болуп калганына карабастан, AQP5E-байлоочу B клеткалары +/A5H көк боорунун өзгөчө маргиналдык зона жана фолликулярдык бөлүктөрүндө бай бойдон калган.
Атаандаштык тажрыйбасы эмне үчүн жүргүзүлгөн?
Флуоресценттик белгиленген антигенге байкалган байланыш чындап эле PmE/AQP5Eге тиешелүү өзгөчөлүктөн келип чыгабы же жокпу текшерүү үчүн клеткалар белгиленген пробдордон мурда он эсе көп белгиленбеген PmE же AQP5E менен инкубацияланган. Артык PmE AQP5E пробу менен аныкталган клеткалардын жыштыгын азайткан, ал эми белгиленбеген AQP5E ошол эле даражада таасирдүү болгон эмес. Авторлор бул жыйынтыкты аныкталган AQP5E байланышы A5H оор чынжырынан келип чыккан жана PmEге жогорку аффинитет көрсөткөн кайчылаш реактивдүү өзгөчөлүктү чагылдырат деп чечмелешет.
Герминалдык Борбордун Жообу Аутоантителонун Түрлөнүшүндө Кантип Роль Ойноду?
PmE-L менен стимулданган +/A5H чычкандарында окшоштуруу-реактивдүү B клеткалары герминалдык борбор компартментине күчтүүрөөк катышып, AQP5E-байлоочу герминалдык борбор B клеткалары жана AQP5E-байлоочу плазмабласттар көбөйүп, муну менен бирге күчтүү anti-AQP5E аутоантитело жообу өнүккөн.
Герминалдык борбор деген эмне?
Герминалдык борбор (GC) — активдешкен B клеткалары лимфоиддук ткандагы фолликулдардын ичинде көбөйүп, иммуноглобулин гендеринде соматикалык гипермутациядан өтүп жана антигенге байланышуу касиеттерине жараша тандалган өзгөчө микроанатомиялык реакция аймагы. Изилдөөдө GC B клеткалары TCRβ−B220+CD138− клеткаларынын ичинде GL7+CD38− катары аныкталган.
Плазмабласт деген эмне?
Плазмабласт — активдешкен B клеткасынан антитело бөлүп чыгаруучу плазма клеткасына карай дифференцияланып жаткан эрте антитело өндүрүүчү клетка. Изилдөөдө плазмабласттар жалпы B-клетка популяциясынын ичинде CD138+ катары аныкталган.
PmE-L иммунизация тажрыйбасынын топтору
| Топ | n | Жашы | Колдонуу |
|---|---|---|---|
| Sham +/A5H | 5 | 6–14 жума | Контролдук колдонуу |
| PmE-L менен иммунизацияланган жапайы тип | 5 | 6–14 жума | PmE-L + IFA |
| PmE-L менен иммунизацияланган +/A5H | 7 | 6–14 жума | PmE-L + IFA |
Бул тажрыйба үч көз карандысыз тажрыйбанын бириктирилген маалыматтарын камтыйт. Серум антителолору 13- жана 21-күндөрдө бааланган.
Иммунизация кантип жүргүзүлгөн?
PmE-L пептидинен 100 μg incomplete Freund's adjuvant (IFA) менен 1:1 катышта эмульсияланган. Чычкандарга куйруктун түбүнүн эки тарабына тери астына 50 μl/тарап берилген.
IFA деген эмне?
Incomplete Freund's adjuvant — берилген антигенди иммундук система күчтүүрөөк жана узак мөөнөт кабыл алышына жардам берген май негизиндеги адъювант. Изилдөөдө PmE-Lди иммунизация шартында берүү үчүн колдонулган. IFA өзү чыныгы адам инфекциясы эмес; ошондуктан тажрыйба табигый микробдук таасирдин так көчүрмөсү катары бааланбашы керек.
13- жана 21-күндөрдө эмне табылган?
Sham +/A5H чычкандарында anti-PmE-L антителолору болгонуна карабастан, anti-AQP5E ELISA жообу аныкталган эмес. PmE-L иммунизациясынан кийин +/A5H тобунда anti-PmE-L да, anti-AQP5E да 13- жана 21-күндөрдө көбөйгөн. +/A5H чычкандарынын баарында 13-күнгө чейин anti-AQP5E жообу өнүгүп, 21-күнү деңгээлдер дагы жогорулаган.
Жапайы типтеги чычкандарда ошол эле тажрыйбада anti-AQP5E жообу бир гана чычканда аныкталган. Булак мурунку модель тажрыйбаларында жапайы типтеги чычкандарда айкын anti-AQP5E жообу үчүн жок дегенде эки иммунизация керек болгонун белгилейт.
Лимфа түйүнүндө эмне өзгөрдү?
Draining лимфа түйүнүндө жалпы B-клетка саны жана жалпы B клеткаларынын арасындагы AQP5E-байлоочу клеткалардын жыштыгы топтор арасында окшош болгон. Бирок GC B-клетка жыштыгы жана GC B клеткаларынын ичиндеги AQP5E-байлоочу клеткалардын жыштыгы PmE-L менен иммунизацияланган +/A5H чычкандарында көбөйгөн.
Жалпы плазмабласт жыштыгы +/A5H чычкандарында жапайы типке караганда төмөн болсо да, AQP5E-байлоочу плазмабласттар көбөйгөн. Бул жыйынтык жалпы плазмабласт саны менен бута антигенге өзгөчө плазмабласттардын үлүшү бир эле нерсе эмес экенин көрсөтөт.
ELISA эмнени өлчөйт?
Enzyme-linked immunosorbent assay (ELISA) — серумдагы белгилүү антигенге байланышкан антителонун көлөмүн өлчөөдө колдонулган иммунологиялык ыкма. PmE-L, AQP5E жана AQP5A өлчөөлөрүндө avidin менен капталган пластинкаларга ар бир кудукка 0.2 μg биотинделген пептид байланыштырылган; anti-streptavidin IgG үчүн пластинкалар ар бир кудукка 0.2 μg streptavidin менен капталган.
Стандарттык ийри сызыктар 40–0.625 ng/ml чычкан IgG1 колдонулуп даярдалган. Серум суюлтуулары anti-PmE-L жана anti-AQP5E үчүн 1:3.000–1:10.000, anti-AQP5A үчүн 1:300, anti-streptavidin үчүн 1:10.000 аралыкта болгон.
Эмне Үчүн Гетерозиготалуу +/A5H Чычкандары Гомозиготалуу A5H/A5H Чычкандарынан Күчтүүрөөк Жооп Берди?
Изилдөөдө +/A5H чычкандары anti-AQP5E, anti-AQP4 жана anti-streptavidin жоопторунда A5H/A5H чычкандарына караганда күчтүүрөөк гуморалдык жооп көрсөткөн; авторлор муну эндогендик оор чынжыр менен A5H оор чынжырынын бирге экспрессияланышына мүмкүндүк берген allelic inclusion жана ага байланышкан кеңири BCR репертуары менен байланыштуу болушу мүмкүн деп сунушташат, бирок бул механизм репертуарды секвенирлөө аркылуу түз тастыкталган эмес.
Allelic exclusion деген эмне?
Кадимки B-клетка биологиясында иммуноглобулин оор чынжыр аллелдеринин адатта бирөөсү гана продуктивдүү экспрессияланышы бир клетканын бир кыйла бирдиктүү антиген өзгөчөлүгүнө ээ болушуна жардам берет. Бул тартип allelic exclusion деп аталат.
Allelic inclusion деген эмне?
Allelic inclusion — бир эле B клеткасында бир нече иммуноглобулин аллели функционалдык салым кошо алган абал. Мындай учурда клетка бир нече рецептор өзгөчөлүгүн көрсөтүшү мүмкүн. Авторлор +/A5H чычкандарында A5H аллели менен эндогендик оор чынжыр аллелинин чогуу болушу кеңири антиген репертуарына жол берип, аутореактивдүү клеткалардын делециядан же анергиядан качышына салым кошушу мүмкүн экенин талкуулашат.
Бирок “+/A5H күчтүүрөөк жооп берди, демек мунун себеби сөзсүз allelic inclusion” деп айтууга болбойт. Булак себептик байланыштар али түзүлө электигин жана өзгөчө гомозиготалуу A5H/A5Hдеги оор репертуар чектелүүсүнүн таасири репертуарды секвенирлөө менен ырасталышы керек экенин ачык белгилейт.
Генотип жана жыныс тажрыйбасы кантип түзүлгөн?
| Топ | n | Жыныс бөлүштүрүлүшү | Жашы |
|---|---|---|---|
| +/A5H + DPBS | 13 | 7 эркек + 6 ургаачы | 7–14 жума |
| +/A5H + PmE-L | 13 | 7 эркек + 6 ургаачы | 7–14 жума |
| A5H/A5H + DPBS | 11 | 5 эркек + 6 ургаачы | 8–21 жума |
| A5H/A5H + PmE-L | 14 | 7 эркек + 7 ургаачы | 8–21 жума |
Sham шартында anti-PmE-L антителолору эки A5H генотипинде тең аныкталып, A5H/A5H чычкандарында +/A5H чычкандарына караганда жогору болгон; бирок anti-AQP5E антителолору эки генотипте тең ELISA менен аныкталган эмес.
PmE-L иммунизациясынан кийин anti-PmE-L да, anti-AQP5E да эки A5H генотипинде жогорулап, бирок жалпы алганда A5H/A5H тобунда төмөнүрөөк тенденция көрсөткөн. Иммунизацияланган гомозиготалуу чычкандардын экөөсү anti-AQP5E жообун түзгөн эмес. Антитело жооптору эркек жана ургаачылар арасында негизинен окшош болгон.
Эпитоп Жайылышы менен Кайчылаш Реактивдүүлүктүн Айырмасы Эмнеде?
Бул изилдөөдө гомологиялуу AQP5, AQP4 жана жарым-жартылай AQP1 белокторунун окшош эпитоп аймактарына кайчылаш реактивдүүлүк өнүккөн, бирок ошол эле AQP5 молекуласынын башка AQP5A эпитобуна жаңы антитело жообу пайда болгон эмес; ошондуктан булак гомологиялуу белоктордун арасындагы жооптун кеңейишин молекулалык окшоштуруу менен багытталган интермолекулалык түрлөнүү катары баалап, AQP5 ичинде интрамолекулалык эпитоп жайылышы көрсөтүлбөгөнүн өзүнчө белгилейт.
Интрамолекулалык эпитоп жайылышы деген эмне?
Интрамолекулалык эпитоп жайылышы — иммундук жооптун бир белоктогу баштапкы эпитоптон башка эпитопторго кеңейиши. Бул тажрыйбада баштапкы өз-эпитоп AQP5E болгон учурда, ошол эле AQP5 белогунун AQP5A эпитобуна каршы антитело изилденген. Anti-AQP5A бир да чычканда аныкталган эмес.
Интермолекулалык түрлөнүү деген эмне?
Жооптун бир белоктон түзүлүшү окшош башка белокторго кеңейишин интермолекулалык түрлөнүү катары кароого болот. Изилдөөдө AQP5E аймагына гомологиялуу ырааттуулуктары бар AQP4 жана AQP1 ушул жагынан изилденген.
AQP4кө кайчылаш реактивдүүлүк кантип ырасталган?
Шилекей безинин кесиндилеринде кош иммундук флуоресценция менен серум IgGнин AQP4 менен колокализациясы бааланган. Андан кийин адам AQP4-M23-EGFP экспрессиялаган L929 клеткалары колдонулуп, клетка-негизиндеги агымдык цитометрия тести жүргүзүлгөн. Parental L929 клеткалары терс контроль катары колдонулган.
Sham да, иммунизация шартында да +/A5H серумунда AQP4кө байланышуу A5H/A5H чычкандарына караганда жогору болгон. Иммундук флуоресценция жана клетка-негизиндеги тест ошол эле жалпы генотип айырмасын колдогон.
AQP1 кантип текшерилген?
Адам AQP1 экспрессиялаган туруктуу HEK293 клеткалары түзүлүп, чычкан серумдарынын бул клеткаларга байланышы агымдык цитометрия менен өлчөнгөн. AQP1 тести үчүн серум 1:20 катышта, AQP4 тести үчүн 1:200 катышта суюлтулган.
AQP1ге төмөн деңгээлдеги реактивдүүлүк айрым чычкандарда иммунизациядан, генотиптен же жыныстан көз карандысыз байкалган. PmE-L иммунизациясынан кийин бири +/A5H, бири A5H/A5H болгон эки ургаачы чычканда жогорку anti-AQP1 жообу пайда болгон. Бул эки байкоодон “ургаачы чычкандар AQP1 аутоантителосуна көбүрөөк жакын” деген жыйынтык чыгарууга болбойт; изилдөөнүн генотип-жыныс анализинде жалпы антитело жооптору жыныстар арасында негизинен окшош болгон.
AQP5 менен AQP4 жоопторунун ортосундагы байланыш
AQP5 жана AQP4 байлоочу аутоантителолордун бар болушу жана көлөмү ортосунда маанилүү байланыш табылган: Kendall's Tau-b тести p<0.001. Бул статистикалык байланыш эки антитело жообу бирге өзгөргөнүн колдойт; өзү эле бир антитело экинчисин түзгөнүн далилдебейт.
Эмне үчүн AQP4 жана AQP1 бирдей деңгээлде жооп берген жок?
Булак AQP4 AQP5Eге гомологиялуу аймакта AQP5тен бир гана аминокислота, AQP1 болсо эки аминокислота менен айырмаланарын белгилейт. Ошого карабастан жогорку anti-AQP1 деңгээли айрым чычкандарда гана байкалган. Авторлор муну жеке жеңил чынжыр репертуарындагы кокустук айырмачылыктар жана B-клетка өнүгүүсү учурунда антигендин жеткиликтүүлүгү менен байланыштуу болушу мүмкүн деп талкуулашат.
Бул түшүндүрмө тажрыйбада түз далилденген жалгыз механизм эмес. Өзгөчө AQP1дин кызыл кан клеткаларында жана кан тамыр эндотелийинде кеңири болушу AQP1-реактивдүү B клеткаларынын өнүгүү учурунда делецияланышына салым кошушу мүмкүн деген интерпретация катары берилет.
Иммундук флуоресценция эмне үчүн ELISAдан башкача жыйынтык бере алат?
Sham A5H чычкандарынын 24үнүн 13үндө (%54) шилекей безинин иммундук флуоресценциясында серум IgG менен AQP5 колокализациясы байкалганы менен, anti-AQP5E ELISA терс болгон. Эки ыкма бир эле биологиялык өзгөчөлүктү так эле өлчөбөйт: ELISA белгилүү AQP5E пептидине байланышууну өлчөсө, ткандык иммундук флуоресценция табигый ткандык чөйрөдө AQP5 менен бирге локализацияланган серум IgG сигналын баалайт. Ошондуктан булак бул байкоону AQP5E ELISA жыйынтыгына барабар деп эсептеген эмес.
Streptavidin Сыяктуу Иммунодоминанттык Антиген A5H Жообун Тосо Алдыбы?
Жапайы типтеги чычкандар streptavidin-комплекстүү PmE-L тажрыйбасында күчтүү anti-streptavidin жообуна карабастан anti-AQP5E түзгөн эмес, ал эми +/A5H жана A5H/A5H чычкандары anti-AQP5E түзө алышкан; бул жыйынтык A5Hден келип чыккан окшоштуруу-реактивдүү B клеткалары иммунодоминанттык ташуучу антигендин атаандаштыгы шартында да герминалдык борбор жообуна катыша аларын көрсөтөт.
Бул экинчи иммунизация схемасы кантип жүргүзүлгөн?
Чычкандар алгач P. melaninogenica лизаты менен prime кылынган, андан кийин streptavidin-комплекстүү PmE-L тетрамери менен эки жолу boost кылынган. Антитело жооптору 24- жана 34-күндөрдө бааланган.
| Топ | n | Жашы | Негизги байкоо |
|---|---|---|---|
| Sham A5H генотиптери | Ар бир генотип n=2; жалпы n=4 | 6–15 жума | Контроль |
| Иммунизацияланган +/+ | 5 | 6–15 жума | Anti-SA күчтүү; anti-AQP5E түзүлгөн жок |
| Иммунизацияланган +/A5H | 5 | 6–15 жума | Anti-AQP5E жана anti-SA түзүлдү |
| Иммунизацияланган A5H/A5H | 5 | 6–15 жума | Anti-AQP5E түзүлдү; anti-SA аныкталган жок |
Жапайы типтеги чычкандардын күчтүү anti-SA жообун түзүп, anti-AQP5E түзө албашы иммунодоминанттык ташуучуга жооп PmE-Lге байланышкан аутоантитело жолун басаңдата алат деген мурунку байкоолорго шайкеш. Тескерисинче, A5H чычкандарында мурда эле кеңейген окшоштуруу-реактивдүү B-клетка пулу бул атаандаштык шартында anti-AQP5E түзгөн.
A5H/A5H чычкандарында anti-SA антителосунун түзүлбөшү авторлор тарабынан BCR репертуарынын өтө катуу чектелишинин мүмкүн болгон функционалдык натыйжасы катары талкууланат. Бирок муну ырастоо үчүн BCR репертуарын секвенирлөө керек.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Эксперименттик моделдин негизги компоненттери
| Компонент | Булакта колдонулган ыкма |
|---|---|
| Жаныбар модели | C57BL/6J фонунда Igh-VDJ knock-in A5H чычкандары |
| Чычкандардын жашы | Тажрыйбага жараша 6–21 жума аралыгы |
| Жынысы | Эркек жана ургаачы |
| Кармоо | Specific pathogen-free шарттар |
| Knock-in ырастоо | PCR генотиптөө + бута локусунда Sanger секвенирлөө |
| A5H PCR продукту | 361 bp |
| Жапайы тип PCR продукту | 234 bp |
| Негизги иммунизация антигени | PmE-L |
| PmE-L дозасы | 100 μg |
| Адъювант | Incomplete Freund's adjuvant; 1:1 эмульсия |
| Инъекция | Куйруктун түбүнүн эки тарабына тери астына 50 μl/тарап |
| Агымдык цитометрия | LSR Fortessa X-20 жана айрым клетка тесттеринде BD FACS Symphony A5 SE / Fortessa X-20 |
| Агымдык цитометрия анализи | FlowJo v10.10.0; клетка-негизиндеги тесттерде FlowJo |
| Конфокалдык микроскоп | Carl Zeiss LSM980, 400× |
| Статистикалык программа | GraphPad Prism 9.0 |
Үлгүнүн көлөмү кантип пландалган?
Үлгүнүн көлөмү пилоттук тажрыйба же алгачкы тажрыйба топтомдорунан алынган маалыматтарга ылайык эсептелген. Эсептөөдө маанилүүлүк деңгээли α=0.05 жана статистикалык күч %80 деп алынган. Пландоо үчүн +/+ жана +/A5H чычкандарындагы AQP5E+ клетка жыштыктарынын орточо мааниси жана стандарттык четтөөсү, ошондой эле иммунизациядан кийинки +/A5H anti-AQP5E аутоантитело деңгээлдери колдонулган.
α=0.05 эмнени билдирет?
α=0.05 — изилдөөнүн статистикалык чечим эрежесинде нөлдүк гипотеза туура болгондо жалган оң жыйынтык чыгаруу ыктымалдыгы үчүн алдын ала белгиленген %5 чек. Бул маани алынган ар бир p-мааниси “%95 ыктымалдык менен туура” дегенди билдирбейт.
%80 статистикалык күч эмнени билдирет?
%80 күч — үлгү пландоодо болжолдонгон эффект жана өзгөрмөлүүлүк чындап бар болсо, статистикалык тест бул эффектти белгиленген α деңгээлинде аныктоо ыктымалдыгын болжол менен %80 кылып максаттоо. Булак үлгү эсептөөдө колдонулган так эффект өлчөмүнүн формуласын билдирбейт; ошондуктан Verianla булакта жок сандык күч теңдемесин чыгарбайт.
Агымдык цитометриядагы gating логикасы
Алгач FSC-A жана SSC-A менен тирүү клетка аймагы тандалып, FSC-A/FSC-H менен кош клеткалар чыгарылып жана Ghost Dye оң өлүк клеткалар алынып салынган.
| Популяция | Аныктоочу marker түзүлүшү |
|---|---|
| Сөөк чучугу жалпы B клеткасы | CD19+IgM+ |
| Сөөк чучугу жетиле элек B | CD93+IgD− |
| Сөөк чучугу жетилген/recirculating B | CD93−IgD+ |
| Көк боор/LN жалпы B | CD19+ |
| Көк боор/LN жетиле элек B | CD93+ |
| Көк боор/LN жетилген B | CD93− |
| T1 | IgMhiCD23− |
| T2 | IgMhiCD23+ |
| T3 | IgMloCD23+ |
| Анергияга байланышкан жетилген B | IgD+IgMlo |
| Маргиналдык зона B | IgMhiCD23− |
| Фолликулярдык B | IgMint/loCD23+ |
| Плазмабласт | CD138+ |
| GC B клеткасы | TCRβ−B220+CD138− ичинде GL7+CD38− |
Figure 1 жана Figure 2нин негизги билдирүүсү
Figure 1де ар бир генотип үчүн n=6 чычкан — төрт эркек жана эки ургаачы — эки көз карандысыз тажрыйбада бааланган. Жалпы B-клетка өнүгүүсү сакталган кезде T1/T3 бөлүштүрүлүшү, анергияга байланышкан компартмент жана көк боордун MZB/фолликулярдык B-клетка тең салмагы өзгөргөн.
Figure 2 AQP5E жана PmE-L байлоочу B клеткаларынын бөлүштүрүлүшүн көрсөтөт. PmE-Lге реактивдүү клетка пулу A5H аллели менен кеңейгенде, өз-AQP5Eни айкын тааныган клеткалардын өзгөчө гетерозиготалуу +/A5H көк боорунун жетилген компартменттеринде көбөйүшү моделдин маанилүү өзгөчөлүктөрүнүн бири. AQP5E-байлоочу жетилген B клеткаларынын арасында анергияга байланышкан фенотип да A5H чычкандарында азайган.
Ткань гистологиясы кантип бааланган?
Субмандибулярдык шилекей бездери %4 параформальдегидде 4 °Cде 24 саат фиксацияланып, парафинге салынган жана 4 μm кесиндилер H&E менен боёлуп, лимфоцит инфильтрациясы изилденген.
Иммундук флуоресценция үчүн ткандар Zinc Fixative ичинде 4 °Cде түнү бою фиксацияланып, %10–30 сахароза менен криопротекцияланып жана OCTге салынган. 10 μm тоңдурулган кесиндилер муздак ацетондо 10 мүнөт фиксацияланган.
AQP5 же AQP4 үчүн кесиндилер тиешелүү коён биринчилик антителолору жана 1:10 суюлтулган чычкан серуму менен 4 °Cде түнү бою инкубацияланып; андан кийин флуоресценттик экинчилик антителолор менен белгиленген. Сүрөттөр Carl Zeiss LSM980 конфокалдык микроскопунда 400× чоңойтууда алынган.
Иммундук флуоресценцияны баллдоо системасы
IgG байланышы сокур түрдө 0–5 аралыгындагы алты баскычтуу шкала менен бааланган. Балл флуоресценция сигналы сүрөттүн жарыктык чеги өзгөртүлгөндө кайсы деңгээлге чейин аныктала бергенине негизделет. Ошентип, баалоо байкоочунун гана “жаркын/алсыз” таасирине эмес, алдын ала аныкталган чек баскычтарына жараша жарым-сандык түрдө жүргүзүлгөн.
AQP4 клетка-негизиндеги тести
Адам AQP4-M23-EGFPни туруктуу экспрессиялаган L929 чычкан фибробласт клеткалары lentiviral вектор менен түзүлүп, puromycin тандоосу астында кармалган. Parental L929 клеткалары терс контроль болгон. Клеткалар 1:200 суюлтулган серум менен бир саат инкубацияланган.
AQP1 клетка-негизиндеги тести
Адам AQP1 экспрессиялаган HEK293 клеткалары pEGFP-N1-AQP1 вектору менен трансфекцияланып, G418 менен тандалган. 1 × 10⁶ клетка 1:20 суюлтулган серум менен бир саат инкубацияланып, андан кийин флуоресценттик экинчилик антитело менен боёлгон.
Статистикалык чечим агымы
Маалымат бөлүштүрүлүшүнүн нормалдуулугу Shapiro–Wilk тести менен бааланган. Эки топту салыштырууда жупталбаган эки тараптуу t-тест колдонулуп; F тести дисперсиялар тең эмес экенин p<0.05 менен көрсөткөндө Welch түзөтүүсү колдонулган.
Экиден көп топту салыштырууда one-way ANOVA жана Tukey көп салыштыруу тести колдонулган. Brown–Forsythe тести p<0.05 менен тең эмес дисперсияны көрсөткөндө классикалык ANOVAнын ордуна Brown–Forsythe жана Welch ANOVA колдонулуп; post hoc салыштырууларда Dunnett T3 тести колдонулган.
Статистикалык маанилүүлүк чеги p<0.05 жана маалыматтар орточо ± стандарттык четтөө катары берилген.
Shapiro–Wilk тести эмнени текшерет?
Shapiro–Wilk тести үлгү маалыматынын нормалдуу бөлүштүрүүгө шайкештигин баалоо үчүн колдонулат. Тесттин ролу биологиялык эффект бар экенин көрсөтүү эмес, параметрдик салыштыруу ыкмаларынын бөлүштүрүү божомолун баалоого жардам берүү.
Welch түзөтүүсү эмне үчүн колдонулат?
Классикалык t-тест эки топтун дисперсиялары тең деген божомолго таянышы мүмкүн. Дисперсиялар айырмаланганда Welch ыкмасы эркиндик даражасын ошого ылайык жөндөп, ылайыктуураак салыштырууну камсыз кылат.
ANOVA эмнени текшерет?
One-way ANOVA үч же андан көп топтун орточо маанилеринин баары бирдей деген негизги гипотезаны текшерет. ANOVA маанилүү болгондо кайсы топтор айырмаланарын аныктоо үчүн Tukey сыяктуу post hoc тесттер колдонулат. Дисперсиялардын теңдиги бузулганда изилдөөдө Brown–Forsythe/Welch ANOVA жана Dunnett T3 тандалган.
Изилдөө колдогон жыйынтыктар
- A5H оор чынжыры микробдук PmE/PmE-Lди артыкчылыктуу тааныган жана AQP5Eге кайчылаш реактивдүүлүктү алып жүргөн B-клетка пулун түзө алат.
- A5H чычкандарында жалпы B-клетка саны жана негизги жетилүү сакталганы менен, анергияга байланышкан перифериялык B-клетка компартменти азаят.
- PmE-L иммунизациясы +/A5H чычкандарында күчтүү anti-AQP5E аутоантитело жообун козгойт.
- Окшоштуруу-реактивдүү B клеткалары герминалдык борбор жоопторуна катышып, AQP5E-байлоочу GC B клеткалары жана плазмабласттар көбөйөт.
- +/A5H чычкандары A5H/A5H чычкандарына караганда күчтүүрөөк anti-AQP5E жана anti-AQP4 жообун көрсөтөт.
- AQP5Eге байланышкан жооп гомологиялуу AQP4кө жана айрым чычкандарда AQP1ге кайчылаш реактивдүүлүк көрсөтө алат.
- AQP5Aга каршы антитело түзүлбөгөндүктөн, ошол эле AQP5 белогунун ичинде интрамолекулалык эпитоп жайылышы көрсөтүлгөн эмес.
- A5H чычкандары streptavidin сыяктуу иммунодоминанттык ташуучу антиген болгондо да anti-AQP5E жообун түзө алат.
- Кандагы аутоантителолор жогору болгонуна карабастан, шилекей безинде ткань топтолушу жана лимфоциттик патология минималдуу.
Изилдөө колдобогон жыйынтыктар
- A5H чычкандары толук Sjögren оорусунун модели экени көрсөтүлгөн эмес.
- Anti-AQP5E аутоантителосу жалгыз өзү шилекей безинин жабыркашына жетиштүү экени көрсөтүлгөн эмес.
- Allelic inclusion гетерозиготалуу чычкандардагы күчтүү жооптун так себеби экени түз далилденген эмес.
- A5H/A5H чычкандарында anti-SA жоктугунун так себеби репертуар чектелүүсү экени али репертуар секвенирлөө менен ырасталган эмес.
- AQP5E-байлоочу клеткалардагы төмөн анергия фенотиби кайсы өз-антиген же репертуар механизминин натыйжасы экени түз текшерилген эмес.
- AQP5A жообу түзүлбөгөндүктөн, AQP5 молекуласынын башка эпитопторуна жалпы интрамолекулалык жайылуу көрсөтүлгөн эмес.
- AQP1ге жогорку жооп эки гана ургаачы чычканда байкалганы жыныска байланышкан жалпы механизм бар экенин далилдебейт.
- Чычкан моделиндеги табылгалар адамдарда молекулалык окшоштуруу дал ушундай тартипте жана масштабда аутоиммундук оору пайда кыларын далилдебейт.
- Бул изилдөө инфекция өткөргөн адамдарда оору коркунучун же клиникалык дарылоо таасирин өлчөбөйт.
Изилдөөнүн күчтүү жактары
Биринчи күчтүү жагы — түздөн-түз жогорку аффинитеттүү өз-антигенди тааныган классикалык аутореактивдүү BCR моделдеринен айырмаланып, микробдук окшоштурууну артыкчылыктуу тааныган, бирок жашыруун өз-реактивдүүлүктү алып жүргөн B клеткаларын изилдеген өзгөчө knock-in системасы.
Экинчи күчтүү жагы — B-клетка өнүгүүсүнөн герминалдык борбор реакциясына, серум аутоантителосуна, ткань байланышуусуна жана гомологиялуу aquaporin кайчылаш реактивдүүлүгүнө чейин аутоиммунитеттин башталышынын бир нече этабы бир эле моделде изилденгени.
Үчүнчү күчтүү жагы — +/A5H жана A5H/A5H генотиптерин салыштыруу аркылуу BCR ар түрдүүлүгү жана allelic inclusion/репертуар чектелүүсү гипотезаларын изилдөөгө мүмкүнчүлүк бергени.
Төртүнчү күчтүү жагы — AQP4 кайчылаш реактивдүүлүгү ткандык иммундук флуоресценция менен гана эмес, AQP4 экспрессиялаган клетка-негизиндеги assay менен да бааланганы.
Изилдөөнүн негизги чектөөлөрү
Клиникалык маанилүү ткань патологиясынын жоктугу: Булак муну моделдин негизги чектөөсү катары ачык көрсөтөт. Жогорку аутоантитело жообуна карабастан, шилекей безинде айкын Sjögren сымал патология пайда болгон эмес.
Себептик allelic inclusion механизминин ырасталбаганы: +/A5H чычкандарындагы күчтүүрөөк жооп allelic inclusion менен шайкеш, бирок механизм BCR репертуарын түз секвенирлөө менен көрсөтүлгөн эмес.
Анергия механизминин булагы белгисиз: AQP5E-байлоочу жетилген B клеткаларындагы анергия фенотиби альтернативдүү өз-антигендерденби же туруктуу оор чынжыр репертуар ар түрдүүлүгүн чектегенденби келип чыкканы түз текшерилген эмес.
Интрамолекулалык эпитоп жайылышы байкалган жок: PmE-L иммунизациясы AQP5A антителосун түзгөн эмес. Модель бул тажрыйба шартында толук өз-антиген AQP5ке карай кең эпитоп жайылышын кайра түзбөйт.
Жаныбар-модель чеги: Тажрыйба көзөмөлдөнгөн чычкан моделинде жана адъювант колдогон иммунизация шартында жүргүзүлгөн. Адамдын аутоиммундук оорусунун табигый башталышын же клиникалык өнүгүшүн түз өлчөбөйт.
Модель эмне үчүн классикалык аутореактивдүү BCR моделдеринен айырмаланат?
| Өзгөчөлүк | Классикалык аутореактивдүү BCR Tg/KI моделдери | A5H модели |
|---|---|---|
| Башында таанылган антиген | Түз өз-антиген; мисалы HEL, DNA же insulin | Артыкчылыктуу түрдө микробдук окшоштуруу PmE-L |
| Клондук делеция | Рецепторду редакциялоо/делеция ишке ашпаганда B-клетка саны азайышы мүмкүн | Жалпы B-клетка саны негизинен сакталат |
| Анергия | Айкын анергия кеңири таралган | Анергияга байланышкан B-клетка компартменти азайган |
| Аутоиммундук жоопту козгоочу | Өз-антиген же TLR лиганддары менен байланышкан стимулдар | Адъювант менен берилген микробдук окшоштуруу антигени |
| Аутоантитело түрлөнүшү | Адатта аныкталган өз-антигендер менен чектелет | Молекулалык окшоштуруу гомологиялуу белокторго кайчылаш реактивдүүлүктү кеңейте алат |
| Моделдин негизги багыты | Толеранттуулук же түз аутореактивдүүлүк | B-клетка борборлуу молекулалык окшоштуруу жана аутоиммунитеттин башталышы |
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска аталышы: Aquaporin-5–specific heavy chain VDJ knock-in (A5H) mice reveal molecular mimicry–driven initiation and diversification of autoreactive B-cell responses.
Авторлор жана ирети: Hyunjin Kim, Nayoon Lee, Sabin Acharya, Sungmin Kim, Youngnim Choi.
Тең салым: Булакта тең салым же тең биринчи автор тууралуу билдирүү жок.
Жооптуу автор: Youngnim Choi.
Мекеме 1: Department of Immunology and Molecular Microbiology in Dental Sciences, Seoul National University and Dental Research Institute, Seoul, Republic of Korea.
Мекеме 2: Department of Translational Medicine, College of Medicine, Seoul National University, Seoul, Republic of Korea.
Мекеме 3: Department of Neurology, Seoul National University Hospital, Seoul, Republic of Korea.
Мекеме 4: Department of Neurology, College of Medicine, Seoul National University, Seoul, Republic of Korea.
Журнал: Frontiers in Immunology.
Бөлүм: Autoimmune Disorders.
Басмакана/платформа: Frontiers / Frontiers Media SA.
Том / макала номери: 17:1866158.
DOI: 10.3389/fimmu.2026.1866158.
Received: 27 Апрель 2026.
Revised: 30 Май 2026.
Accepted: 18 Июнь 2026.
Published: 2 Июль 2026.
Булак түрү: Original Research; эксперименттик жаныбар иммунологиясы жана генетикалык knock-in модель изилдөөсү.
Рецензия абалы: Жарыяланган, рецензияланган изилдөө макаласы. Булак барагында редактор Gunnar Houen; рецензенттер Chandrani Thakur жана Jin Hu деп көрсөтүлгөн.
Preprint абалы: Берилген булак жарыяланган Frontiers макаласы. Берилген документте өзүнчө preprint идентификатору көрсөтүлгөн эмес.
Лицензия: Creative Commons Attribution 4.0 International (CC BY 4.0).
Негизги модель: C57BL/6J фонунда aquaporin-5 E эпитобу менен кайчылаш реактивдүү оор чынжыр VDJ knock-in A5H чычкан линиясы.
Модель генотиптери: Жапайы тип +/+, гетерозиготалуу +/A5H жана гомозиготалуу A5H/A5H.
Моделди ырастоо: PCR генотиптөө жана бута Igh локусунда Sanger секвенирлөө.
Эксперименттик жаныбарлардын жаш аралыгы: 6–21 жума; айрым тажрыйбаларда тарыраак жаш аралыгы колдонулган.
Антиген: Prevotella melaninogenica aquaporinинен алынган PmE-L; PmE-L B- жана T-клетка эпитопторун камтыйт, PmE жана AQP5E болсо B-клетка эпитобун гана камтыйт.
Стандарттык PmE-L иммунизациясы: 100 μg PmE-L, incomplete Freund's adjuvant менен 1:1; куйруктун түбүнүн эки тарабына тери астына 50 μl/тарап.
Streptavidin тетрамери: Streptavidin жана биотинделген PmE-L 1:4 молярдык катышта аралаштырылган; бөлмө температурасында 30 мүнөт жана андан кийин 4 °Cде түнү бою инкубацияланган; 50-kDa Amicon фильтри менен иштетилген.
ELISA каптоо: PmE-L/AQP5E/AQP5A үчүн 0.2 μg/кудук биотинделген пептид; anti-SA өлчөөсүндө 0.2 μg/кудук streptavidin.
ELISA стандарттык ийри сызыгы: 40–0.625 ng/ml чычкан IgG1.
Серум суюлтуулары: anti-PmE-L 1:3.000–1:10.000; anti-AQP5E 1:3.000–1:10.000; anti-AQP5A 1:300; anti-SA 1:10.000.
Антиген пробу: Flow cytometry үчүн FITC-PmE-L жана Cy5-AQP5E; 100 nM жана тандалган жогорку-stringency анализдеринде 10 nM.
Атаандаштык: Белгиленген пробдон мурда PmE же AQP5Eнин он эсе ашыгы менен 4 °Cде 30 мүнөт алдын ала инкубация.
Агымдык цитометр: BD LSR Fortessa X-20; AQP4/AQP1 клетка-негизиндеги анализдеринде BD FACS Symphony A5 SE же Fortessa X-20.
Анализ программасы: FlowJo v10.10.0; клетка-негизиндеги тесттерде FlowJo.
Ткань гистологиясы: Субмандибулярдык шилекей бези; %4 параформальдегид, 4 °C, 24 саат; парафин; 4 μm H&E кесиндиси.
Иммундук флуоресценция: Zinc Fixative, 4 °C түнү бою; %10–30 сахароза; OCT; 10 μm тоңдурулган кесинди; ацетондо 10 мүнөт; 5% BSA + 10% horse serum блоктоо.
AQP5 биринчилик антителосу: 1:200.
AQP4 биринчилик антителосу: 1:100.
Иммундук флуоресценция серуму: 1:10.
Конфокалдык микроскоп: Carl Zeiss LSM980, 400×.
AQP4 клетка-негизиндеги тест: Адам AQP4-M23-EGFP экспрессиялаган L929 клеткалары; parental L929 терс контроль; серум 1:200.
AQP1 клетка-негизиндеги тест: Адам AQP1 экспрессиялаган HEK293 клеткалары; серум 1:20.
Клетка саны: AQP4/AQP1 тесттеринде 1 × 10⁶ клетка.
Статистикалык программа: GraphPad Prism 9.0.
Нормалдуулук: Shapiro–Wilk.
Эки топ: Жупталбаган эки тараптуу t-тест; тең эмес дисперсияда Welch түзөтүүсү.
Экиден көп топ: One-way ANOVA + Tukey; Brown–Forsythe менен дисперсия теңсиздиги аныкталса Brown–Forsythe/Welch ANOVA + Dunnett T3.
Маанилүүлүк чеги: p<0.05.
Отчеттоо: Орточо ± стандарттык четтөө.
Кошумча байланыш анализи: AQP5 жана AQP4 байлоочу аутоантителолордун арасында Kendall's Tau-b; p<0.001.
Үлгү планы: α=0.05 жана %80 күч; пилоттук/алгачкы тажрыйба маалыматтарындагы AQP5E+ клетка жыштыктары жана anti-AQP5E аутоантитело деңгээлдери негиз болгон.
Математикалык формула абалы: Булакта илимий жыйынтык чыгаруу үчүн колдонулган ачык математикалык теңдеме жок. Verianla булакта жок формула кошкон эмес.
Этикалык уруксат: Seoul National University Animal Care and Use Committee; No. SNU-21104-2-6.
Маалымат жеткиликтүүлүгү: Изилдөөнүн оригиналдуу салымдары макалада жана Supplementary Material ичинде экени; кошумча суроолор жооптуу авторго багытталышы мүмкүн экени көрсөтүлгөн.
Каржылоо: National Research Foundation of Korea Basic Science Research Program Grant, #RS-2024-00342340; Republic of Korea Ministry of Science & ICT тарабынан каржыланган.
Кызыкчылыктардын кагылышы: Авторлор коммерциялык же финансылык кызыкчылыктардын кагылышын жарата турган байланыш жок экенин билдиришкен. Youngnim Choi тапшыруу учурунда Frontiers editorial board мүчөсү экенин билдирген; булакка ылайык, бул peer-review процессине же акыркы чечимге таасир эткен эмес.
Авторлордун салымы: Hyunjin Kim — data curation, formal analysis, investigation, writing-original draft; Nayoon Lee — investigation, writing-review & editing; Sabin Acharya — investigation, writing-review & editing; Sungmin Kim — supervision, writing-review & editing; Youngnim Choi — conceptualization, formal analysis, funding acquisition, supervision, writing-review & editing.
Generative AI билдирүүсү: Авторлор generative AIди маалымат өндүрүү же тажрыйба жүргүзүү үчүн эмес; маалыматты чечмелөөнү колдой турган тиешелүү булактарды табуу жана англис тилин оңдоо/polish кылуу максатында колдонушканын билдиришкен. Frontiers ошондой эле сүрөттөрдүн alt text'тери жасалма интеллекттин жардамы менен түзүлүшү мүмкүн экенин жана мүмкүн болушунча авторлор тарабынан каралып чыгарын белгилейт.
Негизги интерпретациялык чек: A5H чычкандарында молекулалык окшоштуруу күчтүү аутоантитело жообун жана гомологиялуу aquaporinдерге кайчылаш реактивдүүлүктү түзгөн; бирок кандагы аутоантитело жалгыз өзү айкын Sjögren сымал шилекей безинин патологиясын жараткан эмес.
Экинчи критикалык чек: +/A5H чычкандарындагы күчтүүрөөк жооп allelic inclusion менен шайкеш, бирок түз себептик далил эмес; репертуарды секвенирлөө талап кылынат.
Үчүнчү критикалык чек: Anti-AQP5A жообу табылбагандыктан native AQP5 үстүндө интрамолекулалык эпитоп жайылышы бул тажрыйбада көрсөтүлгөн эмес.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген