


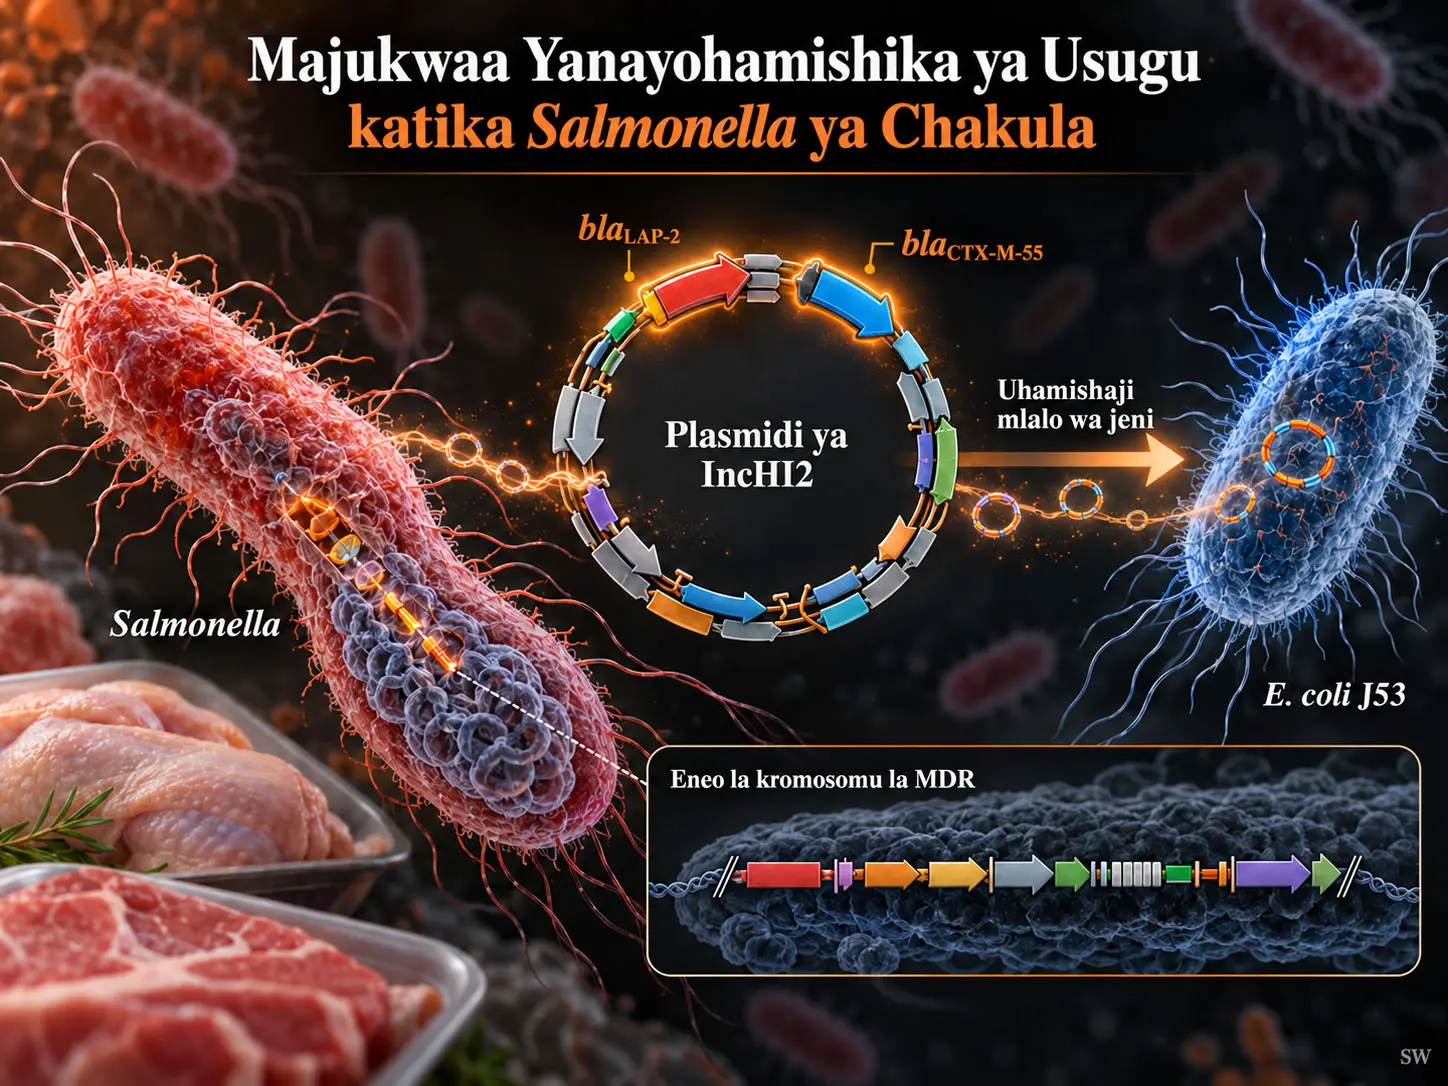
Utafiti huu unachunguza, katika izolati za Salmonella enterica zinazotokana na chakula, muundo wa kijenetiki na uwezo wa kuhamishika wa majukwaa ya usugu wa dawa nyingi yanayohusishwa na IncHI2 ambayo hubeba kwa pamoja jeni za β-lactamase blaLAP-2 na blaCTX-M-55. Plasmidi ya IncHI2 ni elementi kubwa ya kijeni inayohama ambayo, pamoja na uti wa mgongo uliohifadhiwa wa urudufishaji na konjugesheni, inaweza kubeba jeni nyingi za usugu pamoja na moduli nyingine za kijeni za kuzoea mazingira. Watafiti walifanya vipimo vya unyeti kwa viua vijidudu, upangaji wa jenomu nzima, konjugesheni, jaribio la uhifadhi wa plasmidi, jenomiki linganishi na uchanganuzi wa kifilojenetiki unaotegemea SNP katika Salmonella Agona ST13 Sal22C150 iliyotengwa mwaka 2022 kutoka nyama ya kuku ya rejareja huko Shanghai na Salmonella Havana ST1527 Sal22P208 iliyotengwa kutoka nyama ya nguruwe ya rejareja.
Izolati zote mbili zilionekana kuwa sugu kwa dawa nyingi. blaLAP-2 na blaCTX-M-55, pamoja na replicon ya IncHI2, zilihamishwa kwenda kwa mpokeaji Escherichia coli J53 mwenye usugu kwa rifampicin. Mzunguko wa uhamishaji ulipimwa kuwa (4,95 ± 0,41) × 10−5 transkonjuganti/seli donor kwa Sal22C150 na (4,46 ± 0,42) × 10−6 kwa Sal22P208. Mzunguko wa uhamishaji wa elementi inayotokana na Sal22C150 ulikuwa juu zaidi kwa kiasi chenye umuhimu. Replicon ya IncHI2 na jeni hizo mbili za β-lactamase ziliendelea kugunduliwa kwa passages 20 bila kutumia uteuzi wa viua vijidudu.
Uunganishaji kamili wa jenomu ya Sal22P208 uliotengenezwa kwa data za Illumina na PacBio ulifichua plasmidi ya IncHI2 yenye urefu wa 275.096 bp iliyoitwa pSal22P208. blaLAP-2, blaTEM-1B na blaCTX-M-55 zilipatikana kwenye plasmidi hii; katika maeneo ya nyongeza ya pSal22P208, jumla ya viainishi 15 vya usugu wa viua vijidudu pamoja na loci za usugu kwa zebaki na tellurium zilitambuliwa. Kinyume chake, kwa sababu Sal22C150 ilipangwa kwa usomaji mfupi pekee, uhusiano wa blaLAP-2 na blaCTX-M-55 na IncHI2 ulihitimishwa kutokana na muktadha wa kijeni na ushahidi wa konjugesheni badala ya mlolongo uliofungwa wa plasmidi.
Katika kromosomu ya Sal22P208 pia kulitambuliwa eneo tofauti la MDR lililowekwa kati ya rpmJ na rpmE na linalobeba viainishi vingi vya usugu kwa antibiotiki na arseniki. Ufanano mkubwa wa kimuundo kati ya eneo hili na usanifu wa usugu katika Citrobacter braakii LBA3 unaonyesha kwamba moduli changamano za usugu zinazohama zinaweza kupatikana katika wanachama tofauti wa Enterobacterales; hata hivyo, ufanano wa mlolongo hauthibitishi mwelekeo au muda wa uhamishaji wa moja kwa moja kati ya spishi hizo mbili.
Kizuizi kikuu cha tafsiri ya utafiti ni ukubwa wa sampuli. Kwa sababu izolati mbili pekee ndizo zilizochunguzwa, matokeo hayaamui prevalensi ya majukwaa haya ya IncHI2 wala usambazaji wake katika kiwango cha idadi ya viumbe ndani ya mnyororo wa chakula. Zaidi ya hayo, jaribio la uhifadhi la passages 20 linaonyesha udumishaji wa muda mfupi katika maabara; halipimi uthabiti wa plasmidi wa muda mrefu katika ikolojia asilia au mnyororo wa uzalishaji wa chakula.
Tatizo kuu la utafiti
Usugu wa viua vijidudu hauhusu tu kujitokeza kwa jeni moja moja za usugu. Plasmidi, transposon, integron au muundo wa kromosomu ambamo jeni za usugu zimo; ikiwa zinaweza kuhamishwa kwenda kwa bakteria tofauti; na ikiwa zinaweza kubaki baada ya uhamishaji bila shinikizo teule la antibiotiki ni mambo msingi yanayoamua umuhimu wa kiepidemiolojia wa kuenea kwa usugu.
Salmonella inayotokana na chakula ni pathojeni muhimu ya enteriki inayoweza kusambaa kati ya wanyama, chakula, binadamu na mazingira. Hasa, usugu kwa fluoroquinolones na cephalosporins za wigo mpana ni muhimu kwa sababu unaweza kuathiri chaguo kuu za viua vijidudu zinazotumika katika matibabu ya salmonellosis kali au vamizi.
Familia ya CTX-M ni kundi lililoenea sana miongoni mwa β-lactamase za wigo mpana. blaCTX-M-55 ni kiainishi cha usugu kinachoripotiwa kwa kuongezeka hasa katika wanyama wa chakula na idadi za Enterobacterales zinazotokana na chakula barani Asia. Familia ya LAP, kwa upande mwingine, imeelezewa kwa kina kidogo zaidi. Pengo la utafiti katika kazi hii ni kwamba uwezo wa kuhamishika, uhifadhi wa muda mfupi na mpangilio wa kina wa kimoduli wa majukwaa ya MDR yanayohusishwa na IncHI2 yanayobeba pamoja blaLAP-2 na blaCTX-M-55 haujaelezwa vya kutosha.
Kwa Nini Plasmidi za IncHI2 Ni Muhimu Katika Kuenea kwa Usugu wa Viua Vijidudu?
Plasmidi za IncHI2 ni molekuli kubwa za DNA zinazoweza kujirudia bila kutegemea kromosomu ya bakteria na kuhamishwa kwa bakteria wengine kupitia konjugesheni; pamoja na uti wa mgongo uliohifadhiwa wa urudufishaji, udumishaji na uhamishaji, zinaweza kubeba maeneo ya nyongeza yanayobadilika yenye usugu kwa antibiotiki, usugu kwa metali nzito, integrons, transposons na elementi za insertion sequence. Usanifu huu unaweza kuruhusu jeni za usugu kuhamishwa si moja moja bali kama kifurushi cha kijeni kilichounganishwa kwenda kwenye mazingira tofauti ya kijeni ya bakteria.
Izolati mbili za chakula zilizochunguzwa
| Sifa | Sal22C150 | Sal22P208 |
|---|---|---|
| Mwaka wa kutengwa | 2022 | 2022 |
| Chanzo | Nyama ya kuku ya rejareja | Nyama ya nguruwe ya rejareja |
| Mahali | Shanghai, China | Shanghai, China |
| Serovar | Salmonella Agona | Salmonella Havana |
| Sequence type | ST13 | ST1527 |
| Jeni zinazohusishwa na IncHI2 | blaLAP-2, blaCTX-M-55; uhusiano ulihitimishwa kwa ushahidi wa usomaji mfupi + replicon + konjugesheni | blaLAP-2, blaTEM-1B, blaCTX-M-55; ulithibitishwa moja kwa moja kwenye pSal22P208 |
Wasifu wa usugu wa viua vijidudu
Izolati zote mbili donor zilipatikana kuwa sugu kwa sulfisoxazole, nalidixic acid, ofloxacin, ciprofloxacin, ampicillin, cefotaxime, cefepime, chloramphenicol, streptomycin, gentamicin, amikacin, kanamycin, rifampicin, azithromycin, fosfomycin na tetracycline. Unyeti wa izolati zote mbili kwa tigecycline uliainishwa kama “intermediate”, huku unyeti kwa meropenem na colistin ukiainishwa kama “susceptible”.
Sambamba na usugu wa kifeno, izolati zote mbili hubeba resistome pana inayohusishwa na usugu kwa β-lactam, aminoglycoside, quinolone, phenicol, tetracycline, sulfonamide, trimethoprim, fosfomycin, macrolide, lincosamide na rifamycin.
Miongoni mwa viainishi vya usugu vinavyoshirikiwa na izolati hizo mbili ni aac(3)-IId, aac(6′)-Iaa, aadA22, aph(3′)-Ia, aph(6)-Id, blaCTX-M-55, blaLAP-2, blaTEM-1B, dfrA14, floR, fosA7, lnu(F), mph(A), qnrS1, sul3, arr-2 na tet(A).
Sal22C150 pia hubeba aph(3′′)-Ib, wakati katika Sal22P208 pia zilitambuliwa arr-3, aac(6′)-Ib-cr, aadA16, dfrA27, qnrB6 na sul1.
Je, upangaji wa jenomu nzima ulikuwa katika kiwango sawa kwa izolati zote mbili?
Hapana. Sal22C150 ilipangwa kwa Illumina HiSeq X10 kwa kina cha takriban 200× cha usomaji mfupi, na jenomu ya rasimu yenye scaffold 48 ikapatikana. N50 ilikuwa 366.523 bp, na scaffold kubwa zaidi ilikuwa 711.773 bp.
Sal22P208, kwa upande mwingine, ilipangwa kwa Illumina HiSeq X10 na PacBio RS II, na kutokana na uunganishaji mseto wa Unicycler ikapatikana jenomu kamili yenye kromosomu moja na plasmidi moja iliyofungwa. Tofauti hii ilifanya iwezekane kutatua kimwili nafasi za jeni kwenye plasmidi kwa Sal22P208, huku kwa Sal22C150 ujanibishaji wa plasmidi ukibaki wa kimahitimisho.
Kwa nini jaribio la konjugesheni ni muhimu?
Kuwepo kwa jeni ya usugu katika jenomu pekee hakuthibitishi kwamba jeni hiyo inaweza kuhamishwa kwenda kwa bakteria mwingine. Kwa hiyo watafiti walifanya jaribio la konjugesheni la broth-mating wakitumia Sal22C150 na Sal22P208 kama donor na E. coli J53 mwenye usugu kwa rifampicin kama mpokeaji.
Tamaduni za donor na mpokeaji zilichanganywa kwa uwiano wa 3:1 na kuinkubishwa katika mazingira ya LB yasiyo na viua vijidudu kwa 37 °C kwa saa 18. Transkonjuganti zilichaguliwa kwenye LB agar yenye 100 µg/mL rifampicin na 2 µg/mL cefotaxime.
Katika makoloni yaliyochaguliwa, replicon ya IncHI2, blaLAP-2 na blaCTX-M-55 zilithibitishwa kwa PCR. Hivyo, ilionyeshwa kiutendaji kwamba jeni za usugu hazikuwepo tu katika jenomu ya donor, bali pia ziliweza kupita kwa pamoja kwenda kwa mwenyeji mpya wa bakteria kupitia elementi inayohama inayohusishwa na IncHI2.
Uhamishaji wa Pamoja wa blaLAP-2 na blaCTX-M-55 Unaonyesha Nini?
Kugunduliwa kwa jeni mbili za β-lactamase pamoja na replicon ya IncHI2 katika transkonjuganti zilezile kunaonyesha kwamba viainishi hivi vya usugu vinaweza kuhamishwa pamoja kwenda kwenye mazingira mapya ya kijeni ya bakteria kama sehemu ya jukwaa la usugu linalohama lililounganishwa; hata hivyo, kwa sababu plasmidi haikufungwa kikamilifu kwa Sal22C150, nafasi sahihi ya jeni hizo mbili kwenye molekuli moja ya plasmidi iliyofungwa kimwili imethibitishwa moja kwa moja katika Sal22P208 pekee.
Mizunguko ya uhamishaji
| Donor | Mzunguko wa uhamishaji | Kitengo | Tafsiri |
|---|---|---|---|
| Sal22C150 | (4,95 ± 0,41) × 10−5 | Transkonjuganti / seli donor | Juu zaidi kati ya donor mbili zilizochunguzwa |
| Sal22P208 | (4,46 ± 0,42) × 10−6 | Transkonjuganti / seli donor | Chini kwa kiasi chenye umuhimu kuliko elementi inayotokana na Sal22C150 |
Majaribio ya konjugesheni yalifanywa kama marudio matatu huru ya kibaolojia, na mizunguko ikaonyeshwa kama wastani ± mkengeuko wa kawaida. Baada ya ugeuzaji wa log10, thamani za mzunguko zililinganishwa kwa t-test ya Welch yenye mikia miwili, na kizingiti cha umuhimu cha p < 0,05 kikatumika.
Uhamishaji ulibadilishaje thamani za MIC?
Upatikanaji wa elementi zinazohusishwa na IncHI2 uliinua thamani za MIC za E. coli J53 kwa viua vijidudu vingi. Hata hivyo, si kila jeni au elementi iliyohamishwa ilitoa athari ya kifeno ya ukubwa sawa katika mwenyeji mpya.
| Kiuavijidudu | J53 MIC (mg/L) | TC-Sal22C150 MIC (mg/L) | TC-Sal22P208 MIC (mg/L) |
|---|---|---|---|
| Sulfisoxazole | 16 | 64 | 64 |
| Nalidixic acid | 0,25 | 2 | 2 |
| Ofloxacin | 0,031 | 0,5 | 0,5 |
| Ciprofloxacin | 0,016 | 0,5 | 0,5 |
| Ampicillin | 4 | 32 | 32 |
| Cefotaxime | 0,25 | 4 | 4 |
| Cefepime | 0,125 | 8 | 8 |
| Chloramphenicol | 8 | 32 | 32 |
| Streptomycin | 4 | 64 | 32 |
| Gentamicin | 0,5 | 8 | 8 |
| Amikacin | 2 | 2 | 2 |
| Kanamycin | 2 | 32 | 16 |
| Azithromycin | 4 | 32 | 32 |
| Fosfomycin | 2 | 2 | 2 |
| Tetracycline | 2 | 16 | 16 |
| Tigecycline | 0,125 | 0,25 | 0,25 |
| Meropenem | 0,031 | 0,031 | 0,031 |
| Colistin | 0,25 | 0,25 | 0,25 |
Kutobadilika kwa thamani za MIC za amikacin, fosfomycin, meropenem na colistin katika transkonjuganti kunaonyesha kwamba kupata jukwaa linalohama hakusababishi athari sawa ya kifeno kwa madarasa yote ya viua vijidudu. Chanzo pia kinaeleza kwamba thamani kubwa za MIC za quinolone katika izolati donor haziwezi kuelezwa kwa plasmidi pekee.
Jaribio la uhifadhi la passages 20 lina maana gani?
Transkonjuganti moja iliyothibitishwa kwa PCR kutoka kila donor ilipitishwa mfululizo katika LB isiyo na viua vijidudu kwa passages 20. Katika passages zilizobainishwa, replicon ya IncHI2, blaLAP-2 na blaCTX-M-55 zilichunguzwa, na hakuna upotevu wa marker uliotambuliwa.
Matokeo haya yanaonyesha kwamba jukwaa la usugu lililohamishwa linaweza kuhifadhiwa katika muda wa passages za maabara uliochunguzwa bila uteuzi endelevu wa antibiotiki. Hitimisho kwamba “lilihifadhiwa kwa passages 20” si sawa na uthabiti wa plasmidi wa muda mrefu katika mazingira au katika kiwango cha kiepidemiolojia.
Muundo msingi wa pSal22P208
Jenomu kamili ya Sal22P208 ina kromosomu ya 4.853.117 bp na plasmidi moja ya IncHI2 ya 275.096 bp. Plasmidi ina eneo la origin-of-transfer linalohitajika kwa konjugesheni, relaxase, tip IV coupling protein na jeni nyingi za uhamishaji ikiwemo traG, traH, traF, traI na traD.
Viainishi vya usugu vimekusanyika katika maeneo ya nyongeza nje ya uti wa mgongo uliohifadhiwa wa plasmidi.
| Eneo la usugu | Jeni |
|---|---|
| β-lactamase | blaLAP-2, blaTEM-1B, blaCTX-M-55 |
| Aminoglycosides | aph(6)-Id, jeni ya familia ya aadA/ant(3′′)-Ia, aac(3)-IId, aph(3′)-Ia |
| Viainishi vingine vya usugu | floR, tet(A), sul3, lnu(F), qnrS1, mph(A), arr-2, dfrA14 |
Eneo la nyongeza la usugu lenye muundo wa mosaiki
Moduli ya blaLAP-2–ftsI–blaTEM-1B pamoja na blaCTX-M-55 ziko katika eneo lenye elementi nyingi zinazohama, likiwa na IS26 na elementi za insertion sequence za familia za IS4, IS2 na IS3 pamoja na jeni zinazohusishwa na Tn3 na Tn21.
Viainishi vingine vya usugu vimesambazwa katika moduli jirani. Kwa hiyo eneo la usugu la pSal22P208 si kaseti moja endelevu ya usugu, bali ni eneo la nyongeza la mosaiki ambamo moduli nyingi za kimuundo zimeunganishwa.
Loci za usugu kwa metali
Mbali na jeni za usugu kwa antibiotiki, pSal22P208 hubeba merR, merP, merT, merC, merA, merD na merE kwa usugu wa zebaki; na terW, terZ, terA, terB, terC, terD na terE kwa usugu wa tellurium.
Kuwepo kimwili kwa viainishi vya usugu kwa antibiotiki na metali kwenye plasmidi moja kunaweza kutoa fursa ya uteuzi mwenza chini ya mazingira yanayofaa. Hata hivyo, utafiti huu haukujaribu kwa majaribio ikiwa mfiduo wa metali kwa kweli huchagua plasmidi ya usugu kwa antibiotiki.
Kielelezo 1 na Kielelezo 2 vinaonyesha nini?
Kielelezo 1 ni ulinganisho wa mviringo wa BRIG unaotumia pSal22P208 kama rejea ya katikati. Pete zinazozunguka zinaonyesha ufanano wa nukleotidi kati ya plasmidi nyingine za IncHI2 na pSal22P208. Pete ya nje ina jeni za usugu wa viua vijidudu, loci za usugu kwa metali na jeni za urudufishaji, udumishaji na konjugesheni za plasmidi.
Kielelezo 2A kinalinganisha kwa mstari eneo la MDR la pSal22P208 na plasmidi tano zilizo karibu na kinaonyesha kwamba katika maeneo ya nyongeza ya usugu, maudhui ya jeni, mwelekeo na mpangilio wa elementi za kijeni zinazohama unaweza kutofautiana. Kielelezo 2B kinalinganisha eneo la usugu wa zebaki la pSal22P208 na plasmidi ya Phytobacter ursingii pCAV1151-296; kinaonyesha kwamba ingawa locus ya zebaki imehifadhiwa kwa kiasi kikubwa, muktadha wa insertion sequence unaoizunguka unatofautiana.
Filojenia ya plasmidi
pSal22P208 na plasmidi 54 za rejea za IncHI2 zinazobeba pamoja blaLAP-2 na blaCTX-M-55 zililinganishwa kwa msingi wa SNP kwa kutumia kSNP v4.1.
Plasmidi sita za rejea zinatofautiana na pSal22P208 kwa chini ya 30 SNP. Miongoni mwa plasmidi zilizo karibu ni zile za Salmonella Muenster na Salmonella Schwarzengrund zinazohusishwa na kuku, E. coli inayohusishwa na ng’ombe, E. coli ya binadamu kutoka Kanada, E. coli ya Marekani kutoka nyama ya ndama, na Salmonella Kentucky ya Vietnam inayohusishwa na kuku.
Usambazaji huu unaonyesha kwamba plasmidi za IncHI2 zilizo karibu zinaweza kupatikana katika spishi tofauti za bakteria, wenyeji, vyanzo vya chakula/kliniki na maeneo tofauti ya kijiografia. Ukaribu wa kifilojenetiki peke yake hauthibitishi tukio la uhamishaji wa moja kwa moja kati ya izolati mbili maalum.
Filojenia ya kromosomu ya izolati
Sal22P208 ilipochanganuliwa miongoni mwa jenomu 41 za S. Havana, ilikuwa karibu zaidi na jenomu ya kliniki GCA_007343335.1 kutoka Uingereza, na chini ya 30 SNP za kromosomu zilitambuliwa kati yao.
Sal22C150, katika ulinganisho wa jenomu 60 za S. Agona, ilikuwa chini ya 50 SNP kutoka GCA_012169275.1 ya Australia na iliwekwa katika kundi moja dogo pamoja na izolati kadhaa za karibu kutoka Taiwan.
Ufanano huu unaonyesha mahusiano ya karibu ya kijeni kati ya jenomu kutoka maeneo tofauti ya kijiografia; utafiti chanzo haukuthibitisha haya kama mnyororo wa moja kwa moja wa maambukizi ya kiepidemiolojia.
Kwa Nini Eneo la MDR la Kromosomu Linaunda Njia Tofauti na Usugu wa Plasmidi?
Wakati viainishi vya usugu vilivyo kwenye plasmidi vinaweza kuhamishwa kwa mlalo kwenda kwa bakteria wengine kupitia konjugesheni, eneo la MDR lililojumuishwa kwenye kromosomu linaweza kupitishwa kwa wima wakati wa mgawanyiko wa seli bila kutegemea uhifadhi wa plasmidi fulani; uwepo wa wakati mmoja katika Sal22P208 wa plasmidi ya IncHI2 inayoweza kukonjugesheni na uingizaji tofauti wa MDR wa kromosomu unaonyesha kwamba njia mbili za kijeni zinazokamilishana za mkusanyiko wa usugu zinaweza kuungana katika bakteria mmoja.
Eneo la MDR la kromosomu la Sal22P208
Eneo kubwa la MDR limewekwa kwenye kromosomu kati ya rpmJ na rpmE na halipo katika eneo linalolingana la S. Agona SL483 lililotumika kwa ulinganisho. Mipaka inahusishwa na elementi za familia ya Tn3.
Eneo hili lina viainishi vifuatavyo vya usugu:
- tet(A),
- floR,
- aac(6′)-Ib-cr,
- arr-3,
- dfrA27,
- aadA16,
- qnrB6,
- qacEΔ1,
- sul1.
Hizi zinaambatana na kundi la jeni za usugu kwa arseniki pamoja na elementi za kijeni zinazohama kama ISVsa3, IS26, ISCR1 na IS6100. Segmenti mbili za qacEΔ1–sul1 na vipengele vinavyohusishwa na integron ya darasa la 1 pia viliripotiwa.
Ufanano na Citrobacter braakii LBA3
Eneo la MDR la kromosomu la Sal22P208 linaonyesha ufanano mkubwa na eneo la usugu la Citrobacter braakii LBA3 si tu katika kiwango cha jeni moja moja, bali pia kwa mipaka inayohusishwa na Tn3, locus ya usugu kwa arseniki, moduli ya tet(A)–floR na mpangilio wa jeni unaohusishwa na integron ya darasa la 1–ISCR1.
Inadhaniwa kwamba miundo hii inaweza kuwa imetokana na usanifu mmoja wa pamoja wa usugu unaohama. Hata hivyo, ufanano wa mlolongo na mpangilio wa jeni hauonyeshi uhamishaji ulitokea kwa mwelekeo gani, ulitokea lini, au kwamba kulikuwa na transfer ya moja kwa moja kati ya Salmonella na Citrobacter. Hifadhi ya pamoja au elementi ya kijeni inayohama ya babu wa pamoja pia ni miongoni mwa maelezo yanayowezekana.
Mbinu na Matokeo ya Utafiti
Utengaji na utambuzi wa Salmonella
Izolati zilipatikana kutoka sampuli za nyama ya kuku na nguruwe za rejareja katika mfumo wa ufuatiliaji wa kawaida wa pathojeni zinazotokana na chakula huko Shanghai. Utengaji ulifanywa kwa msingi wa ISO 6579-1:2017 kwa marekebisho madogo.
Sampuli za chakula zilifanyiwa uboreshaji wa awali katika buffered peptone water, kisha uboreshaji teule katika tetrathionate broth; tamaduni zilipandikizwa kwenye xylose lysine tergitol 4 agar. Makoloni ya Salmonella yaliyotiliwa shaka yalithibitishwa kwa triple sugar iron agar, vipimo vya urease na lysine decarboxylase.
Serovar zilithibitishwa kwa slide agglutination kwa kutumia antisera za kibiashara za O na H na kutoka data ya jenomu kwa SeqSero2 v1.3.2. Uteuzi wa Sequence type ulifanywa kulingana na mpangilio wa Salmonella MLST wa loci saba.
Jaribio la unyeti kwa viua vijidudu
MIC kwa sulfisoxazole, nalidixic acid, ofloxacin, ciprofloxacin, ampicillin, cefotaxime, cefepime, chloramphenicol, streptomycin, gentamicin, amikacin, kanamycin, rifampicin, azithromycin, fosfomycin, tetracycline na meropenem iliamuliwa kwa njia ya agar dilution.
Kwa tigecycline na colistin, broth microdilution ilitumika. Matokeo yalifasiriwa kulingana na vizingiti vya CLSI M100 toleo la 34 (2024), na E. coli ATCC 25922 ikatumika kama aina ya udhibiti wa ubora.
Izolati zisizo nyeti kwa wakala mmoja au zaidi katika angalau makundi matatu ya viua vijidudu ziliainishwa kama MDR.
Upangaji wa jenomu nzima na bioinformatiki
DNA ya jenomu ya Sal22C150 na Sal22P208 ilitolewa kwa kutumia TIANamp Bacteria DNA Kit. Sal22C150 ilipangwa kwa Illumina HiSeq X10 pekee kama usomaji mfupi. Kwa Sal22P208, pamoja na Illumina HiSeq X10, data ya usomaji mrefu wa PacBio RS II ilitengenezwa.
Usomaji wa Illumina ulichujwa kwa fastp v1.3.6, na uunganishaji mseto wa Illumina + PacBio kwa Sal22P208 ulifanywa kwa Unicycler v0.5.1. Ubora wa uunganishaji ulitathminiwa kwa QUAST v5.3.0.
Jeni za usugu zilitambuliwa kwa ResFinder v4.7.2 na replicon za plasmidi kwa PlasmidFinder v3.0.3. Elementi za kijeni zinazohama zilichanganuliwa kwa ISfinder, na maeneo yanayohusishwa na konjugesheni kwa oriTfinder2 v2.0.
Konjugesheni na uthibitisho wa PCR
| Kigezo | Thamani ya chanzo |
|---|---|
| Donor | Sal22C150 na Sal22P208 |
| Mpokeaji | E. coli J53 mwenye usugu kwa rifampicin |
| Uwiano wa donor:mpokeaji | 3:1 |
| Mazingira | LB broth isiyo na viua vijidudu |
| Inkubeshini | 37 °C, saa 18 |
| Mazingira ya uteuzi | LB agar yenye 100 µg/mL rifampicin + 2 µg/mL cefotaxime |
| Malengo ya PCR | Replicon ya IncHI2, blaLAP-2, blaCTX-M-55 |
| Ujazo wa PCR | 50 µL |
| Joto la Annealing | 55 °C |
| Amplicon zinazotarajiwa | Takriban 748 bp, 478 bp na 971 bp |
Jaribio la uhifadhi wa plasmidi
Transkonjuganti moja iliyothibitishwa kwa PCR kutoka kila donor ilipitishwa mfululizo katika LB isiyo na viua vijidudu kwa passages 20. Katika passages zilizobainishwa, makoloni yalichunguzwa kwa replicon ya IncHI2, blaLAP-2 na blaCTX-M-55.
Katika passages 20 zilizochunguzwa, hakuna upotevu wa marker yoyote kati ya hizo tatu uliotambuliwa.
Uchanganuzi wa kifilojenetiki
Plasmidi za IncHI2 zinazobeba pamoja blaLAP-2 na blaCTX-M-55 zilikusanywa kutoka NCBI na, baada ya uchujaji, pSal22P208 pamoja na plasmidi 54 za rejea ziliingizwa katika uchanganuzi wa kifilojenetiki unaotegemea SNP na uchanganuzi wa umbali wa SNP wa jozi kwa kutumia kSNP v4.1.
Zaidi ya hayo, uchanganuzi tofauti wa kromosomu ulifanywa kwa serovar hizo mbili; jenomu 41 za S. Havana na jenomu 60 za S. Agona zilitumika. Miti ilionyeshwa na kuwekewa maelezo kwa iTOL v7.6.
Jenomiki linganishi
Ulinganisho wa plasmidi kamili ulifanywa kwa BRIG v0.95, na ulinganisho wa mstari wa maeneo mahususi ya usugu kwa Easyfig v2.1.
Maeneo ya MDR na usugu kwa zebaki ya pSal22P208 yalilinganishwa na plasmidi husika. Eneo la kromosomu la rpmJ–rpmE lililinganishwa na S. Agona SL483 lisilobeba uingizaji wa usugu na C. braakii LBA3 yenye eneo la usugu linalofanana kimuundo.
Uchanganuzi wa takwimu
Majaribio ya konjugesheni yalifanywa kwa marudio matatu huru ya kibaolojia. Mizunguko ya konjugesheni iliwasilishwa kama wastani ± mkengeuko wa kawaida, ugeuzaji wa log10 ukatumika, na t-test ya Welch yenye mikia miwili ikatumika. Kizingiti cha umuhimu kilikuwa p < 0,05.
Viwango vya plasmid retention vilifupishwa kama asilimia, na MIC pamoja na sifa za jenomu zikaelezwa kwa muhtasari wa kimaelezo.
Jukumu la kisayansi la Vielelezo 1–5 vya chanzo
Kielelezo 1: Kinaonyesha ulinganisho wa jenomu wa mviringo wa pSal22P208 na plasmidi zinazohusiana za IncHI2. Kinabainisha uti wa mgongo uliohifadhiwa wa plasmidi dhidi ya maeneo ya nyongeza yanayobadilika.
Kielelezo 2: Kinalinganisha kwa mstari maeneo ya MDR na usugu kwa zebaki ya pSal22P208 na plasmidi zinazofanana. Kinaonyesha kwamba jeni za usugu zimepangwa kama moduli za mosaiki zilizozungukwa na elementi zinazohama badala ya kaseti moja tuli.
Kielelezo 3: Kinaonyesha uhusiano wa kifilojenetiki unaotegemea SNP wa pSal22P208 na plasmidi 54 zinazohusiana za IncHI2. Kinaonyesha kwamba ukoo mmoja wa karibu wa plasmidi unaweza kupatikana katika bakteria, wenyeji, vyanzo na maeneo tofauti ya kijiografia.
Kielelezo 4: Kinalinganisha Sal22P208 na Sal22C150 na jenomu za kimataifa za serovar zao. Kinaonyesha kwamba izolati zinaweza kuwa na mahusiano ya karibu ya kijeni hata na vyanzo vilivyo mbali kijiografia.
Kielelezo 5: Kinalinganisha uingizaji wa rpmJ–rpmE MDR katika kromosomu ya Sal22P208 na eneo la rejea la Salmonella lisilobeba uingizaji wa usugu pamoja na C. braakii LBA3 yenye muundo unaofanana.
Hitimisho linaloungwa mkono na utafiti
- Izolati za Sal22C150 na Sal22P208 zilizochunguzwa zina usugu wa dawa nyingi.
- Viainishi vya blaLAP-2 na blaCTX-M-55 vinavyohusishwa na IncHI2 katika izolati zote mbili viliweza kuhamishwa pamoja kwenda kwa E. coli J53.
- Mzunguko uliopimwa wa konjugesheni wa elementi inayotokana na Sal22C150 ni juu kuliko ule wa elementi inayotokana na Sal22P208.
- Replicon ya IncHI2 iliyohamishwa, blaLAP-2 na blaCTX-M-55 ziligunduliwa kwa passages 20 bila antibiotiki ya uteuzi.
- pSal22P208 ni plasmidi ya IncHI2 inayoweza kukonjugesheni yenye 275.096 bp na hubeba viainishi 15 vya usugu wa viua vijidudu pamoja na loci za usugu kwa zebaki/tellurium.
- Eneo la nyongeza la usugu la pSal22P208 lina mpangilio wa mosaiki unaohusishwa na elementi zinazohama.
- Plasmidi za IncHI2 zilizo karibu sana na pSal22P208 hupatikana katika serovar tofauti za Salmonella na katika E. coli; katika vyanzo vya wanyama, chakula na binadamu.
- Sal22P208 pia hubeba uingizaji mkubwa wa MDR wa kromosomu usiotegemea plasmidi.
- Eneo la MDR la kromosomu linaonyesha ufanano mkubwa wa kimuundo na muundo katika Citrobacter braakii LBA3.
Hitimisho lisiloungwa mkono na utafiti
- Izolati hizi mbili haziamui prevalensi ya majukwaa ya IncHI2–blaLAP-2–blaCTX-M-55 katika Salmonella nchini China au duniani.
- Katika Sal22C150 haijaonyeshwa moja kwa moja kwamba jeni mbili za β-lactamase ziko kwenye plasmidi moja iliyofungwa inayofanana na pSal22P208.
- Uhifadhi wa passages 20 hauthibitishi udumishaji wa plasmidi wa muda mrefu katika ikolojia asilia.
- Umbali mdogo wa SNP kati ya plasmidi zilizo karibu hauthibitishi mnyororo maalum wa moja kwa moja wa maambukizi au mwelekeo wa transfer.
- Ufanano wa eneo la MDR la kromosomu kati ya Sal22P208 na Citrobacter braakii LBA3 hauthibitishi kwamba kulikuwa na transfer ya moja kwa moja kati ya spishi hizo mbili.
- Kuwepo kwa jeni za usugu kwa antibiotiki na metali nzito kwenye plasmidi moja hakuthibitishi moja kwa moja kwamba mfiduo halisi wa metali katika mazingira huchagua usugu kwa antibiotiki.
- Kuwepo kwa jeni ya usugu hakumaanishi kwamba lazima isababishe ongezeko la MIC la kifeno la ukubwa sawa katika mwenyeji mpya.
Vikwazo vikuu vya kimbinu
Kizuizi kilicho wazi zaidi cha utafiti ni kwamba ni izolati mbili tu zinazotokana na chakula zilizochunguzwa. Sampuli hii haitoshi kukadiria prevalensi ya kiepidemiolojia au usambazaji katika kiwango cha idadi ya viumbe.
Kizuizi cha pili muhimu ni tofauti ya azimio la upangaji kati ya izolati hizo mbili. Sal22P208 ilitatuliwa hadi kiwango cha plasmidi iliyofungwa, ilhali Sal22C150 ilibaki kama uunganishaji wa rasimu wa usomaji mfupi. Kwa hiyo, usawa kamili wa kimuundo wa maeneo ya IncHI2 ya izolati hizo mbili haujabainishwa.
Jaribio la uhifadhi wa plasmidi linahusisha passages 20 pekee chini ya mazingira ya maabara. Aina tofauti za wenyeji, halijoto, mazingira ya mnyororo wa chakula au hali za uteuzi wa muda mrefu hazikujaribiwa.
Konjugesheni ilifanywa kwa mpokeaji E. coli J53 katika maabara. Mizunguko ya transfer katika matriksi halisi ya chakula, ikolojia ya utumbo au microbiota ya mazingira haikupimwa katika utafiti huu.
Ingawa ulinganisho wa kifilojenetiki na kimuundo hutoa ushahidi thabiti wa uhusiano wa kijeni, hauwezi peke yake kutatua historia au mwelekeo wa matukio ya transfer.
Maelezo ya Chanzo na Mbinu
Utafiti asili: Transferable IncHI2-Associated blaLAP-2 and blaCTX-M-55 Resistance Platforms in Foodborne Salmonella.
Waandishi: Zeqiang Zhan; Shaoping Zhang; Bingguo Wei; Yurui Zheng; Xingrui Li; Qiqi Lin; Jiang Chang; Shoukui He; Hongwu Wang.
Waandishi wanaowajibika: Shoukui He na Hongwu Wang.
Taasisi: School of Food and Pharmaceutical Engineering, Zhaoqing University; Laboratory of Quality and Safety Risk Assessment for Agro-Products (Zhaoqing), Ministry of Agriculture and Rural Affairs; Guangdong Engineering Technology Research Center of Food and Agricultural Product Safety Analysis and Testing; Key Laboratory of Systems Health Science of Zhejiang Province, Hangzhou Institute for Advanced Study, University of Chinese Academy of Sciences; MOST-USDA Joint Research Center for Food Safety, Shanghai Jiao Tong University.
Jarida na utambulisho wa uchapishaji: Foods, 2026, Juzuu 15, Toleo 17, Makala 3130. Mchapishaji: MDPI. DOI: 10.3390/foods15173130.
Mchakato wa uchapishaji: Ilipokelewa 8 Agosti 2026; marekebisho 27 Agosti 2026; ikakubaliwa 30 Agosti 2026; ikachapishwa 3 Septemba 2026.
Aina ya chanzo: Ni makala asili ya utafiti iliyopitiwa na wataalamu na yenye ufikiaji wazi. Inaunganisha konjugesheni ya maabara, unyeti kwa viua vijidudu, upangaji wa jenomu nzima na jenomiki linganishi.
Leseni: Creative Commons Attribution (CC BY).
Sampuli msingi: S. Agona ST13 Sal22C150 iliyopatikana mwaka 2022 huko Shanghai kutoka nyama ya kuku ya rejareja na S. Havana ST1527 Sal22P208 iliyopatikana kutoka nyama ya nguruwe ya rejareja.
Mbinu msingi: Utengaji wa Salmonella unaotegemea ISO 6579-1:2017; serotyping ya serolojia na SeqSero2; MLST; kipimo cha MIC kinachotegemea CLSI; Illumina HiSeq X10; PacBio RS II; fastp; Unicycler; QUAST; ResFinder; PlasmidFinder; ISfinder; oriTfinder2; konjugesheni ya broth-mating; PCR; uchanganuzi wa uhifadhi wa marker za plasmidi kwa passages 20; kSNP; iTOL; BRIG na Easyfig.
Takwimu: Marudio matatu huru ya kibaolojia katika majaribio ya konjugesheni; wastani ± mkengeuko wa kawaida; ugeuzaji wa log10; t-test ya Welch yenye mikia miwili; p < 0,05.
Upatikanaji wa data za jenomu: Jenomu ya rasimu ya Sal22C150 NCBI BioProject PRJNA1518757; jenomu kamili ya Sal22P208 NCBI BioProject PRJNA1518769.
Ufadhili: National Natural Science Foundation of China No. 32402222; Natural Science Foundation of Guangdong Province No. 2023A1515110754; Department of Education of Guangdong Province Science Project No. 2024KSYS007; Zhaoqing University Science Projects No. GCC202603 na SD202401; Young Innovative Talents Project of the Department of Education of Guangdong Province No. 2024KQNCX022.
Kamati ya maadili: Haitumiki.
Ridhaa yenye taarifa: Haitumiki.
Mgongano wa maslahi: Waandishi hawakuripoti mgongano wa maslahi.
Taarifa ya matumizi ya akili bandia: Waandishi walieleza kwamba walitumia DeepSeek-R1 wakati wa kuandaa makala ili kukagua makosa ya sarufi; walipitia na kuhariri matokeo wenyewe na wakachukua wajibu wa maandishi ya mwisho.
Michango ya waandishi: Zeqiang Zhan: uundaji wa dhana, mbinu, utafiti, usimamizi wa data, uchanganuzi rasmi, uoneshaji na rasimu ya kwanza; Shaoping Zhang: mbinu, utafiti na usimamizi wa data; Bingguo Wei: utafiti, uchanganuzi rasmi na uthibitishaji; Yurui Zheng: utafiti na usimamizi wa data; Xingrui Li: mbinu, utafiti na uoneshaji; Qiqi Lin na Jiang Chang: uchanganuzi rasmi, uthibitishaji na mapitio/uhariri; Shoukui He: uundaji wa dhana, usimamizi, uthibitishaji na mapitio/uhariri; Hongwu Wang: uundaji wa dhana, usimamizi wa mradi, usimamizi, ufadhili na mapitio/uhariri.
Mpaka wa tafsiri ya kisayansi
Nguvu ya utafiti huu ni kwamba badala ya kuripoti jeni za usugu kwa namna ya kuwepo/kutokuwepo pekee, unaunganisha katika utafiti mmoja uhamishaji wa konjugesheni, uhifadhi wa muda mfupi baada ya uhamishaji, uunganishaji wa plasmidi iliyofungwa, usanifu wa eneo la nyongeza, filojenia ya plasmidi na uingizaji wa MDR wa kromosomu. Hata hivyo, kwa kuwa izolati mbili pekee ndizo zilizochunguzwa, matokeo hayapaswi kutafsiriwa kama utafiti wa prevalensi; hasa kwa Sal22C150, usanifu wa kimwili wa plasmidi unapaswa kuthibitishwa kando kwa uunganishaji kamili wa usomaji mrefu.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *