


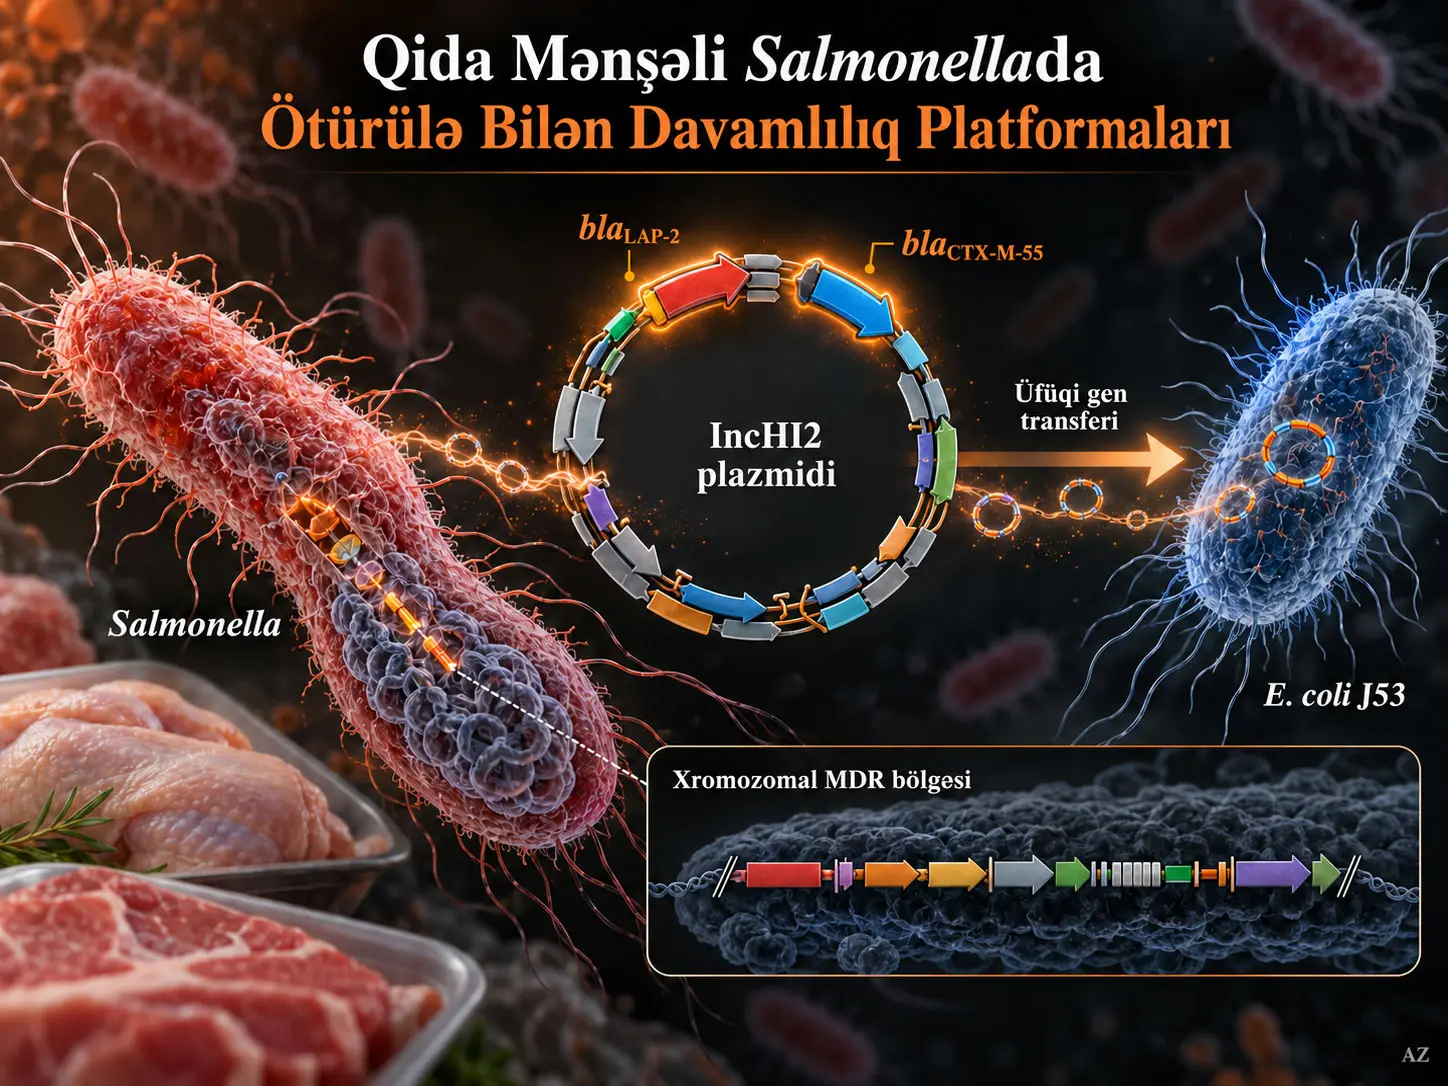
Bu tədqiqat qida mənşəli Salmonella enterica izolatlarında blaLAP-2 və blaCTX-M-55 β-laktamaza genlərini birlikdə daşıyan IncHI2 ilə əlaqəli çoxsaylı dərmanlara davamlılıq platformalarının genetik quruluşunu və ötürülə bilməsini araşdırır. IncHI2 plazmidi konservativ replikasiya və konyuqasiya skeletinə əlavə olaraq çoxsaylı davamlılıq genlərini və digər adaptiv genetik modulları daşıya bilən böyük mobil genetik elementdir. Tədqiqatçılar 2022-ci ildə Şanxayda pərakəndə toyuq ətindən təcrid edilmiş Salmonella Agona ST13 Sal22C150 və pərakəndə donuz ətindən təcrid edilmiş Salmonella Havana ST1527 Sal22P208 üzərində antimikrob həssaslıq, bütün genomun sekvenslənməsi, konyuqasiya, plazmidin saxlanma sınağı, müqayisəli genomika və SNP əsaslı filogenetik analizlər aparmışlar.
Hər iki izolat çoxsaylı dərmanlara davamlı hesab edilmişdir. blaLAP-2 və blaCTX-M-55, IncHI2 replikonu ilə birlikdə rifampisinə davamlı Escherichia coli J53 resipiyentinə ötürülmüşdür. Ötürülmə tezliyi Sal22C150 üçün (4,95 ± 0,41) × 10−5, Sal22P208 üçün isə (4,46 ± 0,42) × 10−6 transkonyuqant/donor hüceyrə kimi ölçülmüşdür. Sal22C150 mənşəli elementin ötürülmə tezliyi əhəmiyyətli dərəcədə daha yüksək olmuşdur. IncHI2 replikonu və iki β-laktamaza geni antimikrob seleksiya tətbiq edilmədən 20 pasaj boyunca aşkarlanmağa davam etmişdir.
Sal22P208-in Illumina və PacBio məlumatları ilə yaradılmış tamamlanmış genom yığımı 275.096 bp uzunluğunda pSal22P208 adlı IncHI2 plazmidini aşkar etmişdir. blaLAP-2, blaTEM-1B və blaCTX-M-55 bu plazmiddə yerləşmiş; pSal22P208-in aksessuar bölgələrində ümumilikdə 15 antimikrob davamlılıq determinantı ilə yanaşı civə və tellurium davamlılıq lokusları müəyyən edilmişdir. Bunun əksinə, Sal22C150 yalnız qısa oxumalarla sekvensləndiyi üçün blaLAP-2 və blaCTX-M-55-in IncHI2 ilə əlaqəsi qapalı plazmid ardıcıllığı ilə deyil, genomik kontekst və konyuqasiya sübutları əsasında çıxarılmışdır.
Sal22P208-in xromosomunda həmçinin rpmJ ilə rpmE arasında yerləşmiş və çoxsaylı antibiotik və arsen davamlılığı determinantları daşıyan ayrıca MDR bölgəsi müəyyən edilmişdir. Bu bölgənin Citrobacter braakii LBA3-dəki davamlılıq arxitekturası ilə yüksək struktur oxşarlığı mürəkkəb mobil davamlılıq modullarının müxtəlif Enterobacterales üzvlərində mövcud ola biləcəyini göstərir; lakin ardıcıllıq oxşarlığı iki növ arasında birbaşa ötürülmənin istiqamətini və ya zamanını sübut etmir.
Tədqiqatın əsas şərh məhdudiyyəti nümunə ölçüsüdür. Yalnız iki izolat araşdırıldığı üçün nəticələr sözügedən IncHI2 platformalarının prevalensiyasını və ya qida zəncirində populyasiya səviyyəsində paylanmasını müəyyən etmir. Bundan əlavə, 20 pasajlıq saxlanma sınağı qısa müddətli laboratoriya davamlılığını göstərir; təbii ekosistemlərdə və ya qida istehsalı zəncirində uzunmüddətli plazmid stabilliyini ölçmür.
Tədqiqatın əsas problemi
Antimikrob davamlılıq yalnız ayrı-ayrı davamlılıq genlərinin ortaya çıxmasından ibarət deyil. Davamlılıq genlərinin hansı plazmid, transpozon, inteqron və ya xromosomal quruluş daxilində yerləşməsi; müxtəlif bakteriyalara ötürülüb-ötürülə bilməməsi və ötürülmədən sonra selektiv antibiotik təzyiqi olmadan qorunub-qorunmaması davamlılığın yayılmasının epidemioloji əhəmiyyətini müəyyən edən əsas amillərdir.
Qida mənşəli Salmonella heyvan, qida, insan və ətraf mühit arasında hərəkət edə bilən mühüm enterik patogendir. Xüsusilə ftorxinolonlara və geniş spektrli sefalosporinlərə davamlılıq ağır və ya invaziv salmonellyozun müalicəsində istifadə olunan əsas antimikrob seçimlərə təsir göstərə bildiyi üçün mühüm əhəmiyyət daşıyır.
CTX-M ailəsi geniş spektrli β-laktamazalar arasında geniş yayılmış qrupdur. blaCTX-M-55 xüsusilə Asiyada qida heyvanları və qida mənşəli Enterobacterales populyasiyalarında getdikcə daha çox bildirilən davamlılıq determinantıdır. LAP ailəsi isə daha az ətraflı xarakterizə edilmişdir. Bu tədqiqatın araşdırma boşluğu blaLAP-2 ilə blaCTX-M-55-i birlikdə daşıyan IncHI2 ilə əlaqəli MDR platformalarının ötürülə bilməsinin, qısa müddətli saxlanmasının və ətraflı modul təşkilinin kifayət qədər izah edilməməsidir.
IncHI2 Plazmidləri Antimikrob Davamlılığın Yayılmasında Niyə Əhəmiyyətlidir?
IncHI2 plazmidləri bakteriyanın xromosomundan asılı olmayaraq çoxala bilən və konyuqasiya yolu ilə başqa bakteriyalara ötürülə bilən böyük DNT molekullarıdır; konservativ replikasiya, saxlanma və transfer skeletləri ilə yanaşı antibiotik davamlılığı, ağır metal davamlılığı, inteqronlar, transpozonlar və insertion sequence elementləri ehtiva edən dəyişkən aksessuar bölgələr daşıya bilirlər. Bu arxitektura davamlılıq genlərinin ayrı-ayrılıqda deyil, əlaqəli genetik paket şəklində müxtəlif bakterial fonlara daşınmasına imkan verə bilər.
Araşdırılan iki qida izolatı
| Xüsusiyyət | Sal22C150 | Sal22P208 |
|---|---|---|
| İzolyasiya ili | 2022 | 2022 |
| Mənbə | Pərakəndə toyuq əti | Pərakəndə donuz əti |
| Yer | Şanxay, Çin | Şanxay, Çin |
| Serovar | Salmonella Agona | Salmonella Havana |
| Sequence type | ST13 | ST1527 |
| IncHI2 ilə əlaqəli genlər | blaLAP-2, blaCTX-M-55; əlaqə qısa oxuma + replikon + konyuqasiya sübutu ilə çıxarıldı | blaLAP-2, blaTEM-1B, blaCTX-M-55; pSal22P208 üzərində birbaşa təsdiqləndi |
Antimikrob davamlılıq profili
Hər iki donor izolat sulfizoksazol, nalidiks turşusu, ofloksasin, siprofloksasin, ampisillin, sefotaksim, sefepim, xloramfenikol, streptomisin, gentamisin, amikasin, kanamisin, rifampisin, azitromisin, fosfomisin və tetrasiklinə davamlı olmuşdur. Hər iki izolatın tigesiklinə həssaslığı “intermediate”, meropenem və kolistinə həssaslığı isə “susceptible” kimi təsnif edilmişdir.
Fenotipik davamlılıqla uyğun şəkildə hər iki izolat β-laktam, aminoqlikozid, xinolon, fenikol, tetrasiklin, sulfonamid, trimetoprim, fosfomisin, makrolid, linkozamid və rifamisin davamlılığı ilə əlaqəli geniş resistom daşıyır.
İki izolatın ortaq davamlılıq determinantları arasında aac(3)-IId, aac(6′)-Iaa, aadA22, aph(3′)-Ia, aph(6)-Id, blaCTX-M-55, blaLAP-2, blaTEM-1B, dfrA14, floR, fosA7, lnu(F), mph(A), qnrS1, sul3, arr-2 və tet(A) vardır.
Sal22C150 əlavə olaraq aph(3′′)-Ib daşıyır, Sal22P208-də isə arr-3, aac(6′)-Ib-cr, aadA16, dfrA27, qnrB6 və sul1 də müəyyən edilmişdir.
Bütün genomun sekvenslənməsi iki izolat üçün eyni səviyyədə idimi?
Xeyr. Sal22C150 Illumina HiSeq X10 ilə təxminən 200× qısa oxuma dərinliyində sekvenslənmiş və 48 scaffold-dan ibarət qaralama genom əldə edilmişdir. N50 366.523 bp, ən böyük scaffold 711.773 bp-dir.
Sal22P208 isə həm Illumina HiSeq X10, həm də PacBio RS II ilə sekvenslənmiş və Unicycler hibrid yığımı nəticəsində bir xromosom və bir qapalı plazmiddən ibarət tamamlanmış genom əldə edilmişdir. Bu fərq Sal22P208 üçün plazmid üzərindəki gen mövqelərinin fiziki olaraq həll edilməsinə imkan verərkən, Sal22C150 üçün plazmid lokalizasiyasının çıxarımsal qalmasına səbəb olmuşdur.
Konyuqasiya sınağı niyə kritikdir?
Genomda bir davamlılıq geninin olması həmin genin başqa bakteriyaya ötürülə bildiyini təkbaşına göstərmir. Buna görə tədqiqatçılar Sal22C150 və Sal22P208-i donor, rifampisinə davamlı E. coli J53-ü isə resipiyent kimi istifadə edərək broth-mating konyuqasiya sınağı aparmışlar.
Donor və resipiyent kulturları 3:1 nisbətində qarışdırılmış və antimikrob maddə olmayan LB mühitində 37 °C-də 18 saat inkubasiya edilmişdir. Transkonyuqantlar 100 µg/mL rifampisin və 2 µg/mL sefotaksim olan LB aqarda seçilmişdir.
Seçilmiş koloniyalarda IncHI2 replikonu, blaLAP-2 və blaCTX-M-55 PCR ilə təsdiqlənmişdir. Beləliklə, davamlılıq genlərinin yalnız donor genomunda mövcud olmadığı, həm də IncHI2 ilə əlaqəli mobil elementlə yeni bakterial sahibə birlikdə keçə bildiyi funksional olaraq göstərilmişdir.
blaLAP-2 və blaCTX-M-55-in Birlikdə Ötürülməsi Nəyi Göstərir?
İki β-laktamaza geninin IncHI2 replikonu ilə birlikdə eyni transkonyuqantlarda aşkarlanması bu davamlılıq determinantlarının əlaqəli mobil davamlılıq platformasının hissəsi kimi yeni bakterial fona birlikdə daşına bildiyini göstərir; lakin Sal22C150 üçün plazmid tam bağlanmadığından iki genin eyni fiziki qapalı plazmid molekulundakı dəqiq mövqeyi yalnız Sal22P208-də birbaşa təsdiqlənmişdir.
Ötürülmə tezlikləri
| Donor | Ötürülmə tezliyi | Vahid | Şərh |
|---|---|---|---|
| Sal22C150 | (4,95 ± 0,41) × 10−5 | Transkonyuqant / donor hüceyrə | Araşdırılan iki donor arasında daha yüksək |
| Sal22P208 | (4,46 ± 0,42) × 10−6 | Transkonyuqant / donor hüceyrə | Sal22C150 mənşəli elementdən əhəmiyyətli dərəcədə aşağı |
Konyuqasiya sınaqları üç müstəqil bioloji təkrar şəklində aparılmış, tezliklər orta ± standart kənarlaşma formasında ifadə edilmişdir. Tezlik dəyərləri log10 çevrilməsindən sonra iki quyruqlu Welch t-testi ilə müqayisə edilmiş və p < 0,05 əhəmiyyətlilik həddi istifadə olunmuşdur.
Ötürülmə MIC dəyərlərini necə dəyişdirdi?
IncHI2 ilə əlaqəli elementlərin qazanılması E. coli J53-ün çoxsaylı antimikrob maddələr üçün MIC dəyərlərini artırmışdır. Bununla belə, hər gen və ya ötürülmüş element yeni sahibdə eyni miqyasda fenotipik təsir yaratmamışdır.
| Antimikrob maddə | J53 MIC (mg/L) | TC-Sal22C150 MIC (mg/L) | TC-Sal22P208 MIC (mg/L) |
|---|---|---|---|
| Sulfizoksazol | 16 | 64 | 64 |
| Nalidiks turşusu | 0,25 | 2 | 2 |
| Ofloksasin | 0,031 | 0,5 | 0,5 |
| Siprofloksasin | 0,016 | 0,5 | 0,5 |
| Ampisillin | 4 | 32 | 32 |
| Sefotaksim | 0,25 | 4 | 4 |
| Sefepim | 0,125 | 8 | 8 |
| Xloramfenikol | 8 | 32 | 32 |
| Streptomisin | 4 | 64 | 32 |
| Gentamisin | 0,5 | 8 | 8 |
| Amikasin | 2 | 2 | 2 |
| Kanamisin | 2 | 32 | 16 |
| Azitromisin | 4 | 32 | 32 |
| Fosfomisin | 2 | 2 | 2 |
| Tetrasiklin | 2 | 16 | 16 |
| Tigesiklin | 0,125 | 0,25 | 0,25 |
| Meropenem | 0,031 | 0,031 | 0,031 |
| Kolistin | 0,25 | 0,25 | 0,25 |
Amikasin, fosfomisin, meropenem və kolistin MIC dəyərlərinin transkonyuqantlarda dəyişməməsi mobil platformanın qazanılmasının bütün antimikrob sinifləri üçün eyni fenotipik təsir yaratmadığını göstərir. Mənbə həmçinin donor izolatlardakı yüksək xinolon MIC dəyərlərinin yalnız plazmidlə izah edilə bilmədiyini qeyd edir.
20 pasajlıq saxlanma sınağı nə deməkdir?
Hər donordan əldə edilmiş PCR-təsdiqli bir transkonyuqant antimikrob maddə olmayan LB mühitində 20 pasaj boyunca ardıcıl şəkildə köçürülmüşdür. Müəyyən edilmiş pasajlarda IncHI2 replikonu, blaLAP-2 və blaCTX-M-55 araşdırılmış və heç bir marker itkisi müəyyən edilməmişdir.
Bu nəticə ötürülmüş davamlılıq platformasının davamlı antibiotik seleksiyası olmadan araşdırılan laboratoriya pasaj müddəti ərzində qoruna bildiyini göstərir. “20 pasaj boyunca qorundu” nəticəsi uzunmüddətli ekoloji və ya epidemioloji plazmid stabilliyi ilə eynimənalı deyil.
pSal22P208-in əsas quruluşu
Sal22P208-in tamamlanmış genomu 4.853.117 bp-lik bir xromosom və 275.096 bp-lik tək IncHI2 plazmidindən ibarətdir. Plazmid konyuqasiya üçün zəruri origin-of-transfer bölgəsi, relaxase, tip IV coupling protein və traG, traH, traF, traI və traD daxil olmaqla çoxsaylı transfer genləri ehtiva edir.
Davamlılıq determinantları konservativ plazmid skeletinin xaricində, aksessuar bölgələrdə cəmlənmişdir.
| Davamlılıq sahəsi | Genlər |
|---|---|
| β-laktamazalar | blaLAP-2, blaTEM-1B, blaCTX-M-55 |
| Aminoqlikozidlər | aph(6)-Id, aadA/ant(3′′)-Ia ailəsi geni, aac(3)-IId, aph(3′)-Ia |
| Digər davamlılıq determinantları | floR, tet(A), sul3, lnu(F), qnrS1, mph(A), arr-2, dfrA14 |
Mozaik aksessuar davamlılıq bölgəsi
blaLAP-2–ftsI–blaTEM-1B modulu ilə blaCTX-M-55, IS26 və IS4, IS2 və IS3 ailələrinə aid insertion sequence elementlərinin, eləcə də Tn3 və Tn21 ilə əlaqəli genlərin olduğu mobil-elementlərlə zəngin bölgədə yerləşir.
Digər davamlılıq determinantları qonşu modullarda paylanmışdır. Buna görə pSal22P208-in davamlılıq bölgəsi tək bir fasiləsiz davamlılıq kaseti deyil, çoxsaylı struktur modulların birləşdiyi mozaik aksessuar bölgədir.
Metal davamlılığı lokusları
pSal22P208 antibiotik davamlılıq genlərinə əlavə olaraq civə davamlılığı üçün merR, merP, merT, merC, merA, merD və merE; tellurium davamlılığı üçün isə terW, terZ, terA, terB, terC, terD və terE daşıyır.
Antibiotik və metal davamlılığı determinantlarının fiziki olaraq eyni plazmiddə yerləşməsi uyğun ətraf mühit şəraitində ko-seleksiya üçün imkan yarada bilər. Lakin bu tədqiqat metal məruz qalmasının antibiotik davamlılığı plazmidini həqiqətən seçib-seçmədiyini eksperimental olaraq sınaqdan keçirməmişdir.
Şəkil 1 və Şəkil 2 nəyi göstərir?
Şəkil 1 pSal22P208-i mərkəzi istinad kimi istifadə edən dairəvi BRIG müqayisəsidir. Konsentrik halqalar digər IncHI2 plazmidlərinin pSal22P208 ilə nukleotid oxşarlığını göstərir. Xarici halqada antimikrob davamlılıq genləri, metal davamlılığı lokusları və plazmid replikasiya, saxlanma və konyuqasiya genləri yerləşir.
Şəkil 2A pSal22P208-in MDR bölgəsini beş yaxın plazmidlə xətti şəkildə müqayisə edir və aksessuar davamlılıq bölgələrində gen tərkibinin, istiqamətlənmənin və mobil genetik element düzülüşünün dəyişə bildiyini göstərir. Şəkil 2B isə pSal22P208-in civə davamlılığı bölgəsini Phytobacter ursingii pCAV1151-296 plazmidi ilə müqayisə edir; civə lokusunun böyük ölçüdə qorunmasına baxmayaraq onu əhatə edən insertion sequence kontekstinin fərqləndiyini göstərir.
Plazmid filogeniyası
pSal22P208 ilə blaLAP-2 və blaCTX-M-55-i birlikdə daşıyan 54 istinad IncHI2 plazmidi kSNP v4.1 istifadə edilərək SNP əsasında müqayisə edilmişdir.
Altı istinad plazmidi pSal22P208-dən 30 SNP-dən az fərqlənir. Yaxın plazmidlər arasında toyuqla əlaqəli Salmonella Muenster və Salmonella Schwarzengrund, iribuynuzlu mal-qara ilə əlaqəli E. coli, insanla əlaqəli Kanada E. coli, dana əti mənşəli ABŞ E. coli və toyuqla əlaqəli Vyetnam Salmonella Kentucky plazmidləri vardır.
Bu paylanma yaxın IncHI2 plazmidlərinin müxtəlif bakterial növ, sahib, qida/klinik mənbə və coğrafiyalarda tapıla bildiyini göstərir. Filogenetik yaxınlıq konkret iki izolata aid birbaşa ötürülmə hadisəsini öz-özlüyündə sübut etmir.
İzolatların xromosomal filogeniyası
Sal22P208, 41 S. Havana genomu arasında analiz edildikdə Birləşmiş Krallıqdakı klinik GCA_007343335.1 genomuna ən yaxın mövqedə olmuş və ikisi arasında 30-dan az xromosomal SNP müəyyən edilmişdir.
Sal22C150 isə 60 S. Agona genomunun müqayisəsində Avstraliya mənşəli GCA_012169275.1 ilə 50-dən az SNP məsafəsində olmuş və Tayvandan bir neçə yaxın izolatla eyni kompakt qrupda yerləşmişdir.
Bu oxşarlıqlar müxtəlif coğrafiyalardakı genomlar arasında yaxın genetik əlaqələri göstərir; mənbə tədqiqat bunları birbaşa epidemioloji ötürülmə zənciri kimi təsdiqləməmişdir.
Xromosomal MDR Bölgəsi Plazmid Davamlılığından Niyə Fərqli Yol Yaradır?
Plazmid üzərindəki davamlılıq determinantları konyuqasiya yolu ilə üfüqi şəkildə başqa bakteriyalara ötürülə bildiyi halda, xromosoma inteqrasiya olunmuş MDR bölgəsi konkret plazmidin saxlanmasından asılı olmadan hüceyrə bölünməsi zamanı şaquli şəkildə ötürülə bilər; Sal22P208-də eyni vaxtda həm konyuqativ IncHI2 plazmidinin, həm də ayrıca xromosomal MDR əlavəsinin olması davamlılığın toplanması üçün bir-birini tamamlayan iki genetik yolun eyni bakteriyada birləşə bildiyini göstərir.
Sal22P208 xromosomal MDR bölgəsi
Böyük MDR bölgəsi xromosomda rpmJ ilə rpmE arasında yerləşmişdir və müqayisə məqsədilə istifadə olunan S. Agona SL483-ün ekvivalent bölgəsində yoxdur. Sərhədlər Tn3 ailəsi elementləri ilə əlaqəlidir.
Bölgə aşağıdakı davamlılıq determinantlarını ehtiva edir:
- tet(A),
- floR,
- aac(6′)-Ib-cr,
- arr-3,
- dfrA27,
- aadA16,
- qnrB6,
- qacEΔ1,
- sul1.
Bunlara arsen davamlılığı gen klasteri ilə ISVsa3, IS26, ISCR1 və IS6100 kimi mobil genetik elementlər müşayiət edir. İki ədəd qacEΔ1–sul1 seqmenti və sinif 1 inteqronla əlaqəli komponentlər də bildirilmişdir.
Citrobacter braakii LBA3 ilə oxşarlıq
Sal22P208 xromosomal MDR bölgəsi Citrobacter braakii LBA3-dəki davamlılıq bölgəsi ilə yalnız ayrı-ayrı genlər səviyyəsində deyil, həm də Tn3 ilə əlaqəli sərhədlər, arsen davamlılığı lokusu, tet(A)–floR modulu və sinif 1 inteqron–ISCR1 ilə əlaqəli gen düzülüşü baxımından geniş oxşarlıq göstərir.
Bu strukturların ortaq mobil davamlılıq arxitekturasından törəmiş ola biləcəyi düşünülür. Bununla belə, ardıcıllıq və gen sırası oxşarlığı ötürülmənin hansı istiqamətdə baş verdiyini, nə zaman yarandığını və ya Salmonella ilə Citrobacter arasında birbaşa transfer olduğunu göstərmir. Ortaq rezervuar və ya ortaq əcdad mobil elementi də mümkün izahlar arasındadır.
Tədqiqatın Metodu və Nəticələri
Salmonella izolyasiyası və identifikasiyası
İzolatlar Şanxayda rutin qida mənşəli patogen nəzarəti çərçivəsində pərakəndə toyuq və donuz əti nümunələrindən əldə edilmişdir. İzolyasiya ISO 6579-1:2017 əsasında kiçik modifikasiyalarla aparılmışdır.
Qida nümunələri buffered peptone water daxilində ilkin zənginləşdirməyə, daha sonra tetrathionate broth daxilində selektiv zənginləşdirməyə alınmış; kulturlar xylose lysine tergitol 4 aqara əkilmişdir. Şübhəli Salmonella koloniyaları triple sugar iron agar, ureaza və lizin dekarboksilaza testləri ilə təsdiqlənmişdir.
Serovarlar kommersiya O və H antiserumları ilə slide agglutination və genomik məlumatlardan SeqSero2 v1.3.2 vasitəsilə təsdiqlənmişdir. Sequence type təyini yeddi lokuslu Salmonella MLST sxeminə əsasən aparılmışdır.
Antimikrob həssaslıq testi
Sulfizoksazol, nalidiks turşusu, ofloksasin, siprofloksasin, ampisillin, sefotaksim, sefepim, xloramfenikol, streptomisin, gentamisin, amikasin, kanamisin, rifampisin, azitromisin, fosfomisin, tetrasiklin və meropenem üçün MIC agar durulaşdırma üsulu ilə müəyyən edilmişdir.
Tigesiklin və kolistin üçün broth microdilution istifadə edilmişdir. Nəticələr CLSI M100 34-cü nəşr (2024) hədlərinə əsasən şərh edilmiş və keyfiyyətə nəzarət ştammı kimi E. coli ATCC 25922 istifadə olunmuşdur.
Ən azı üç antimikrob kateqoriyada bir və ya daha çox agentə həssas olmayan izolatlar MDR kimi təsnif edilmişdir.
Bütün genomun sekvenslənməsi və bioinformatika
Sal22C150 və Sal22P208 genomik DNT-si TIANamp Bacteria DNA Kit ilə çıxarılmışdır. Sal22C150 yalnız Illumina HiSeq X10 ilə qısa oxuma kimi sekvenslənmişdir. Sal22P208 üçün Illumina HiSeq X10-a əlavə olaraq PacBio RS II uzun oxuma məlumatı yaradılmışdır.
Illumina oxumaları fastp v1.3.6 ilə filtrlənmiş, Sal22P208 üçün Illumina + PacBio hibrid yığımı Unicycler v0.5.1 ilə həyata keçirilmişdir. Yığım keyfiyyəti QUAST v5.3.0 ilə qiymətləndirilmişdir.
Davamlılıq genləri ResFinder v4.7.2, plazmid replikonları PlasmidFinder v3.0.3 ilə müəyyən edilmişdir. Mobil genetik elementlər ISfinder, konyuqasiya ilə əlaqəli bölgələr oriTfinder2 v2.0 ilə analiz edilmişdir.
Konyuqasiya və PCR təsdiqi
| Parametr | Mənbə dəyəri |
|---|---|
| Donorlar | Sal22C150 və Sal22P208 |
| Resipiyent | Rifampisinə davamlı E. coli J53 |
| Donor:resipiyent nisbəti | 3:1 |
| Mühit | Antimikrob maddə olmayan LB broth |
| İnkubasiya | 37 °C, 18 saat |
| Seleksiya mühiti | 100 µg/mL rifampisin + 2 µg/mL sefotaksim olan LB agar |
| PCR hədəfləri | IncHI2 replikonu, blaLAP-2, blaCTX-M-55 |
| PCR həcmi | 50 µL |
| Annealing temperaturu | 55 °C |
| Gözlənilən amplicon-lar | Təxminən 748 bp, 478 bp və 971 bp |
Plazmidin saxlanma sınağı
Hər donordan əldə edilmiş bir PCR-təsdiqli transkonyuqant antimikrob maddə olmayan LB-də 20 pasaj boyunca ardıcıl şəkildə köçürülmüşdür. Müəyyən edilmiş pasajlarda koloniyalar IncHI2 replikonu, blaLAP-2 və blaCTX-M-55 baxımından skrininq edilmişdir.
Araşdırılan 20 pasaj boyunca hər üç markerin də itkisi müəyyən edilməmişdir.
Filogenetik analiz
NCBI-dən blaLAP-2 və blaCTX-M-55-i birlikdə daşıyan IncHI2 plazmidləri toplanmış və filtrləmədən sonra pSal22P208 ilə 54 istinad plazmidi kSNP v4.1 istifadə edilərək SNP əsaslı filogenetik və cütlü SNP məsafəsi analizinə daxil edilmişdir.
Bundan əlavə, iki serovar üçün ayrıca xromosomal analizlər aparılmış; 41 S. Havana və 60 S. Agona genomundan istifadə edilmişdir. Ağaclar iTOL v7.6 ilə vizuallaşdırılmış və annotasiya edilmişdir.
Müqayisəli genomika
Tam plazmid müqayisələri BRIG v0.95 ilə, müəyyən davamlılıq bölgələrinin xətti müqayisələri isə Easyfig v2.1 ilə aparılmışdır.
pSal22P208-in MDR və civə davamlılığı bölgələri müvafiq plazmidlərlə müqayisə edilmişdir. Xromosomal rpmJ–rpmE bölgəsi isə davamlılıq əlavəsini daşımayan S. Agona SL483 və struktur baxımından oxşar davamlılıq bölgəsinə malik C. braakii LBA3 ilə qarşılaşdırılmışdır.
Statistik analiz
Konyuqasiya sınaqları üç müstəqil bioloji təkrarla aparılmışdır. Konyuqasiya tezlikləri orta ± standart kənarlaşma kimi verilmiş, log10 çevrilməsi tətbiq edilmiş və iki quyruqlu Welch t-testi istifadə olunmuşdur. Əhəmiyyətlilik həddi p < 0,05-dir.
Plazmid retention nisbətləri faizlə, MIC və genomik xüsusiyyətlər isə təsviri şəkildə ümumiləşdirilmişdir.
Mənbə Şəkil 1–5-in elmi rolu
Şəkil 1: pSal22P208-in əlaqəli IncHI2 plazmidləri ilə dairəvi genom müqayisəsini göstərir. Konservativ plazmid skeletini dəyişkən aksessuar bölgələrdən ayırır.
Şəkil 2: pSal22P208-in MDR və civə davamlılığı bölgələrini oxşar plazmidlərlə xətti şəkildə müqayisə edir. Davamlılıq genlərinin tək statik kasetdən daha çox mobil elementlərlə əhatə olunmuş mozaik modullar şəklində təşkil edildiyini göstərir.
Şəkil 3: pSal22P208 və 54 əlaqəli IncHI2 plazmidinin SNP əsaslı filogenetik əlaqəsini göstərir. Eyni yaxın plazmid nəslinin müxtəlif bakteriya, sahib, mənbə və coğrafiyalarda tapıla bildiyini ortaya qoyur.
Şəkil 4: Sal22P208 və Sal22C150-ni öz serovarlarına aid qlobal genomlarla müqayisə edir. İzolatların coğrafi cəhətdən uzaq mənbələrlə belə yaxın genomik əlaqələr göstərə bildiyini ortaya qoyur.
Şəkil 5: Sal22P208 xromosomundakı rpmJ–rpmE MDR əlavəsini, davamlılıq əlavəsini daşımayan istinad Salmonella bölgəsi və oxşar quruluşu daşıyan C. braakii LBA3 ilə müqayisə edir.
Tədqiqatın dəstəklədiyi nəticələr
- Araşdırılan Sal22C150 və Sal22P208 izolatları çoxsaylı dərmanlara davamlıdır.
- Hər iki izolatın IncHI2 ilə əlaqəli blaLAP-2 və blaCTX-M-55 determinantları E. coli J53-ə birlikdə ötürülə bilmişdir.
- Sal22C150 mənşəli elementin ölçülmüş konyuqasiya tezliyi Sal22P208 mənşəli elementdən daha yüksəkdir.
- Ötürülmüş IncHI2 replikonu, blaLAP-2 və blaCTX-M-55 selektiv antibiotik olmadan 20 pasaj boyunca aşkarlanmışdır.
- pSal22P208 275.096 bp-lik konyuqativ IncHI2 plazmididir və 15 antimikrob davamlılıq determinantı ilə civə/tellurium davamlılığı lokusları daşıyır.
- pSal22P208-in aksessuar davamlılıq bölgəsi mobil elementlərlə əlaqəli mozaik təşkilə malikdir.
- pSal22P208-ə çox yaxın IncHI2 plazmidləri müxtəlif Salmonella serovarlarında və E. coli-də; heyvan, qida və insan mənbələrində mövcuddur.
- Sal22P208 həmçinin plazmiddən asılı olmayan geniş xromosomal MDR əlavəsi daşıyır.
- Xromosomal MDR bölgəsi Citrobacter braakii LBA3-dəki quruluşla geniş struktur oxşarlığı göstərir.
Tədqiqatın dəstəkləmədiyi nəticələr
- Bu iki izolat IncHI2–blaLAP-2–blaCTX-M-55 platformalarının Çində və ya qlobal Salmonella prevalensiyasını müəyyən etmir.
- Sal22C150-də iki β-laktamaza geninin pSal22P208-lə eyni olan tək qapalı plazmid üzərində yerləşdiyi birbaşa göstərilməmişdir.
- 20 pasajlıq saxlanma uzunmüddətli təbii-ekosistem plazmid davamlılığını sübut etmir.
- Yaxın plazmidlər arasındakı aşağı SNP məsafəsi konkret birbaşa yoluxma zəncirini və ya transfer istiqamətini sübut etmir.
- Sal22P208 və Citrobacter braakii LBA3 arasındakı xromosomal MDR bölgəsi oxşarlığı iki növ arasında birbaşa transfer baş verdiyini sübut etmir.
- Antibiotik və ağır metal davamlılığı genlərinin eyni plazmiddə olması real ətraf mühit metal məruz qalmasının antibiotik davamlılığını seçdiyini birbaşa göstərmir.
- Davamlılıq geninin mövcudluğu yeni sahibdə mütləq eyni miqyasda fenotipik MIC artımı yaratması demək deyil.
Əsas metodoloji məhdudiyyətlər
Tədqiqatın ən aydın məhdudiyyəti yalnız iki qida mənşəli izolatın araşdırılmasıdır. Bu nümunə epidemioloji prevalensiya və ya populyasiya paylanmasını qiymətləndirmək üçün kifayət etmir.
İkinci mühüm məhdudiyyət iki izolat üçün sekvensləmə həllinin fərqli olmasıdır. Sal22P208 qapalı plazmid səviyyəsində həll edildiyi halda Sal22C150 qaralama qısa-oxuma yığımı olaraq qalmışdır. Buna görə iki izolatın IncHI2 bölgələrinin tam struktur ekvivalentliyi müəyyən edilməmişdir.
Plazmidin saxlanma sınağı laboratoriya şəraitində yalnız 20 pasajı əhatə edir. Müxtəlif sahib növləri, temperaturlar, qida zənciri mühitləri və ya uzunmüddətli seleksiya şərtləri sınaqdan keçirilməmişdir.
Konyuqasiya E. coli J53 resipiyenti ilə laboratoriya şəraitində həyata keçirilmişdir. Real qida matrisi, bağırsaq ekosistemi və ya ətraf mühit mikrobiotası daxilində transfer tezlikləri bu tədqiqat tərəfindən ölçülməmişdir.
Filogenetik və struktur müqayisələr güclü genomik əlaqə sübutu təmin etsə də, transfer hadisələrinin tarixini və ya istiqamətini təkbaşına həll edə bilməz.
Mənbə və Metod Qeydi
Orijinal tədqiqat: Transferable IncHI2-Associated blaLAP-2 and blaCTX-M-55 Resistance Platforms in Foodborne Salmonella.
Müəlliflər: Zeqiang Zhan; Shaoping Zhang; Bingguo Wei; Yurui Zheng; Xingrui Li; Qiqi Lin; Jiang Chang; Shoukui He; Hongwu Wang.
Məsul müəlliflər: Shoukui He və Hongwu Wang.
Qurumlar: School of Food and Pharmaceutical Engineering, Zhaoqing University; Laboratory of Quality and Safety Risk Assessment for Agro-Products (Zhaoqing), Ministry of Agriculture and Rural Affairs; Guangdong Engineering Technology Research Center of Food and Agricultural Product Safety Analysis and Testing; Key Laboratory of Systems Health Science of Zhejiang Province, Hangzhou Institute for Advanced Study, University of Chinese Academy of Sciences; MOST-USDA Joint Research Center for Food Safety, Shanghai Jiao Tong University.
Jurnal və nəşr kimliyi: Foods, 2026, Cild 15, Say 17, Məqalə 3130. Nəşriyyat: MDPI. DOI: 10.3390/foods15173130.
Nəşr prosesi: Qəbul üçün təqdim 8 Avqust 2026; reviziya 27 Avqust 2026; qəbul 30 Avqust 2026; nəşr 3 Sentyabr 2026.
Mənbə növü: Resenziyalı, açıq girişli orijinal tədqiqat məqaləsidir. Laboratoriya konyuqasiyası, antimikrob həssaslıq, bütün genomun sekvenslənməsi və müqayisəli genomika üsullarını birləşdirir.
Lisenziya: Creative Commons Attribution (CC BY).
Əsas nümunə: Şanxayda 2022-ci ildə pərakəndə toyuq ətindən əldə edilmiş S. Agona ST13 Sal22C150 və pərakəndə donuz ətindən əldə edilmiş S. Havana ST1527 Sal22P208.
Əsas metodlar: ISO 6579-1:2017 əsaslı Salmonella izolyasiyası; seroloji və SeqSero2 serotipləndirmə; MLST; CLSI əsaslı MIC ölçümü; Illumina HiSeq X10; PacBio RS II; fastp; Unicycler; QUAST; ResFinder; PlasmidFinder; ISfinder; oriTfinder2; broth-mating konyuqasiyası; PCR; 20 pasajlıq plazmid markerlərinin saxlanma analizi; kSNP; iTOL; BRIG və Easyfig.
Statistika: Konyuqasiya sınaqlarında üç müstəqil bioloji təkrar; orta ± standart kənarlaşma; log10 çevrilməsi; iki quyruqlu Welch t-testi; p < 0,05.
Genomik məlumatlara çıxış: Sal22C150 qaralama genomu NCBI BioProject PRJNA1518757; Sal22P208 tamamlanmış genomu NCBI BioProject PRJNA1518769.
Maliyyələşdirmə: National Natural Science Foundation of China No. 32402222; Natural Science Foundation of Guangdong Province No. 2023A1515110754; Department of Education of Guangdong Province Science Project No. 2024KSYS007; Zhaoqing University Science Projects No. GCC202603 və SD202401; Young Innovative Talents Project of the Department of Education of Guangdong Province No. 2024KQNCX022.
Etik komitə: Tətbiq edilmir.
Məlumatlandırılmış razılıq: Tətbiq edilmir.
Maraqların toqquşması: Müəlliflər maraqların toqquşmasını bildirməmişlər.
Süni intellektdən istifadə bəyanatı: Müəlliflər məqalə hazırlanarkən qrammatik səhvləri yoxlamaq məqsədilə DeepSeek-R1-dən istifadə etdiklərini; çıxışı özlərinin nəzərdən keçirib redaktə etdiklərini və yekun mətnə görə məsuliyyəti öz üzərlərinə götürdüklərini bildirmişlər.
Müəllif töhfələri: Zeqiang Zhan: konseptuallaşdırma, metod, tədqiqat, məlumatların işlənməsi, formal analiz, vizuallaşdırma və ilkin qaralama; Shaoping Zhang: metod, tədqiqat və məlumatların işlənməsi; Bingguo Wei: tədqiqat, formal analiz və doğrulama; Yurui Zheng: tədqiqat və məlumatların işlənməsi; Xingrui Li: metod, tədqiqat və vizuallaşdırma; Qiqi Lin və Jiang Chang: formal analiz, doğrulama və nəzərdən keçirmə/redaktə; Shoukui He: konseptuallaşdırma, nəzarət, doğrulama və nəzərdən keçirmə/redaktə; Hongwu Wang: konseptuallaşdırma, layihə idarəçiliyi, nəzarət, maliyyələşdirmə və nəzərdən keçirmə/redaktə.
Elmi şərh sərhədi
Bu tədqiqatın güclü tərəfi davamlılıq genlərini yalnız var/yox şəklində bildirmək əvəzinə konyuqativ ötürülmə, qısa müddətli ötürülmə-sonrası saxlanma, qapalı plazmid yığımı, aksessuar bölgə arxitekturası, plazmid filogeniyası və xromosomal MDR əlavəsini eyni tədqiqatda birləşdirməsidir. Bununla belə, yalnız iki izolat araşdırıldığı üçün tapıntılar prevalensiya tədqiqatı kimi şərh edilməməli; xüsusilə Sal22C150 üçün fiziki plazmid arxitekturası tamamlanmış uzun-oxuma yığımı ilə ayrıca təsdiqlənməlidir.
Şərh yazın
E-poçt ünvanınız yayımlanmayacaq. Məcburi sahələr * ilə işarələnib