


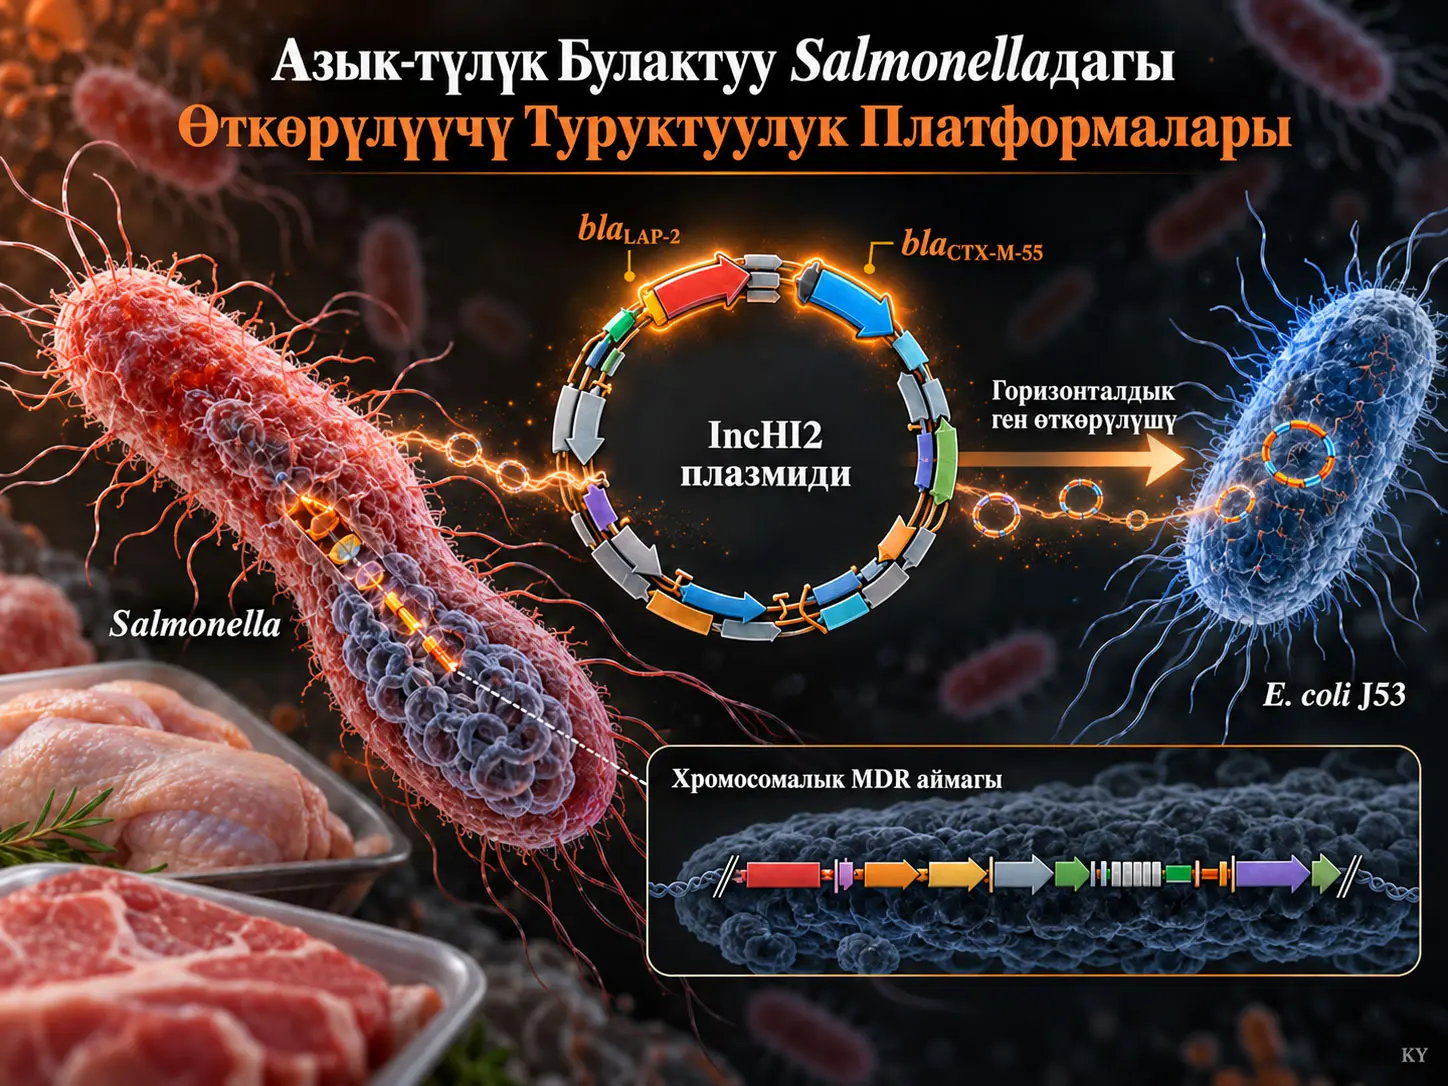
Бул изилдөө азык-түлүктөн алынган Salmonella enterica изоляттарында blaLAP-2 жана blaCTX-M-55 β-лактамаза гендерин бирге алып жүргөн IncHI2 менен байланышкан көп дарыга туруктуулук платформаларынын генетикалык түзүлүшүн жана өткөрүлүп берилүү жөндөмүн изилдейт. IncHI2 плазмиди сакталган репликация жана конъюгация өзөгүнө кошумча көптөгөн туруктуулук гендерин жана башка адаптациялык генетикалык модулдарды алып жүрө алган ири мобилдүү генетикалык элемент болуп саналат. Изилдөөчүлөр 2022-жылы Шанхайда чекене тоок этинен бөлүнүп алынган Salmonella Agona ST13 Sal22C150 жана чекене чочко этинен бөлүнүп алынган Salmonella Havana ST1527 Sal22P208 изоляттарында антимикробдук сезгичтик, толук геномдук секвенирлөө, конъюгация, плазмиддин сакталуу сыноосу, салыштырма геномика жана SNP негизиндеги филогенетикалык анализдерди жүргүзүшкөн.
Эки изолят тең көп дарыга туруктуу деп табылган. blaLAP-2 жана blaCTX-M-55 IncHI2 репликону менен бирге рифампицинге туруктуу Escherichia coli J53 реципиентине өткөрүлгөн. Өткөрүлүү жыштыгы Sal22C150 үчүн (4,95 ± 0,41) × 10−5, Sal22P208 үчүн болсо (4,46 ± 0,42) × 10−6 трансконъюгант/донор клетка катары өлчөнгөн. Sal22C150 булагынан чыккан элементтин өткөрүлүү жыштыгы олуттуу түрдө жогору болгон. IncHI2 репликону жана эки β-лактамаза гени антимикробдук тандоо колдонулбастан 20 пассаж бою аныкталып турган.
Sal22P208 үчүн Illumina жана PacBio маалыматтары менен түзүлгөн толукталган геномдук жыйнак 275.096 bp узундуктагы pSal22P208 аттуу IncHI2 плазмидин аныктаган. blaLAP-2, blaTEM-1B жана blaCTX-M-55 ушул плазмидде жайгашкан; pSal22P208дин аксессуардык аймактарында жалпысынан 15 антимикробдук туруктуулук детерминанты, ошондой эле сымап жана теллурга туруктуулук локустары табылган. Ал эми Sal22C150 кыска окуулар менен гана секвенирленгендиктен, blaLAP-2 жана blaCTX-M-55 гендеринин IncHI2 менен байланышы жабык плазмиддик тизмек аркылуу эмес, геномдук контекст жана конъюгация далилдери аркылуу чыгарылган.
Sal22P208дин хромосомасында мындан тышкары rpmJ менен rpmEнин ортосуна жайгашкан, көптөгөн антибиотик жана мышьякка туруктуулук детерминанттарын алып жүргөн өзүнчө MDR аймагы аныкталган. Бул аймактын Citrobacter braakii LBA3төгү туруктуулук архитектурасы менен жогорку түзүлүштүк окшоштугу татаал мобилдүү туруктуулук модулдары Enterobacterales тобунун ар кандай өкүлдөрүндө кездешиши мүмкүн экенин көрсөтөт; бирок тизмектердин окшоштугу эки түрдүн ортосунда түздөн-түз өткөрүлүүнүн багытын же убактысын далилдебейт.
Изилдөөнү чечмелөөдөгү негизги чектөө — үлгүнүн көлөмү. Болгону эки изолят изилденгендиктен, натыйжалар аталган IncHI2 платформаларынын таралышын же азык-түлүк чынжырындагы популяциялык деңгээлдеги бөлүштүрүлүшүн аныктабайт. Мындан тышкары, 20 пассаждык сакталуу сыноосу лабораториядагы кыска мөөнөттүү сакталышты көрсөтөт; табигый экосистемалардагы же азык-түлүк өндүрүш чынжырындагы узак мөөнөттүү плазмид туруктуулугун өлчөбөйт.
Изилдөөнүн негизги көйгөйү
Антимикробдук туруктуулук айрым туруктуулук гендеринин пайда болушу менен гана чектелбейт. Туруктуулук гендеринин кайсы плазмиддин, транспозондун, интегрондун же хромосомалык түзүлүштүн ичинде жайгашканы; ар башка бактерияларга өткөрүлүп берилеби же жокпу жана өткөрүлгөндөн кийин тандоочу антибиотик басымы жок учурда сакталып калабы же жокпу — туруктуулуктун жайылышынын эпидемиологиялык маанисин аныктаган негизги факторлор.
Азык-түлүктөн келип чыккан Salmonella жаныбар, азык-түлүк, адам жана айлана-чөйрө ортосунда тарай алган маанилүү энтерикалык патоген болуп саналат. Айрыкча фторхинолондорго жана кеңири спектрдеги цефалоспориндерге туруктуулук оор же инвазиялык сальмонеллёзду дарылоодо колдонулган негизги антимикробдук варианттарга таасир этиши мүмкүн болгондуктан маанилүү.
CTX-M үй-бүлөсү кеңири спектрдеги β-лактамазалардын арасында кеңири таралган топ. blaCTX-M-55 өзгөчө Азиядагы азык-түлүк багытындагы жаныбарларда жана азык-түлүктөн келип чыккан Enterobacterales популяцияларында улам көбүрөөк билдирилип жаткан туруктуулук детерминанты. LAP үй-бүлөсү болсо азыраак деталдуу мүнөздөлгөн. Бул изилдөөдөгү илимий боштук blaLAP-2 менен blaCTX-M-55 гендерин бирге алып жүргөн IncHI2 менен байланышкан MDR платформаларынын өткөрүлүп берилүүсү, кыска мөөнөттүү сакталышы жана деталдуу модулдук уюшулушу жетиштүү түшүндүрүлбөгөнүндө.
IncHI2 Плазмиддери Антимикробдук Туруктуулуктун Жайылышында Эмне Үчүн Маанилүү?
IncHI2 плазмиддери бактериянын хромосомасынан көз карандысыз көбөйө алган жана конъюгация аркылуу башка бактерияларга өткөрүлө алган ири ДНК молекулалары; алар сакталган репликация, тейлөө жана өткөрүү өзөктөрүнөн тышкары антибиотикке туруктуулук, оор металлдарга туруктуулук, интегрондор, транспозондор жана insertion sequence элементтерин камтыган өзгөрмө аксессуардык аймактарды алып жүрө алышат. Мындай архитектура туруктуулук гендеринин өз-өзүнчө эмес, байланышкан генетикалык пакет түрүндө ар кандай бактериялык фонго өтүшүнө шарт түзүшү мүмкүн.
Изилденген эки азык-түлүк изоляты
| Өзгөчөлүк | Sal22C150 | Sal22P208 |
|---|---|---|
| Бөлүнүп алынган жыл | 2022 | 2022 |
| Булак | Чекене тоок эти | Чекене чочко эти |
| Жер | Шанхай, Кытай | Шанхай, Кытай |
| Серовар | Salmonella Agona | Salmonella Havana |
| Sequence type | ST13 | ST1527 |
| IncHI2 менен байланышкан гендер | blaLAP-2, blaCTX-M-55; байланыш кыска окуу + репликон + конъюгация далилдеринин негизинде чыгарылган | blaLAP-2, blaTEM-1B, blaCTX-M-55; pSal22P208де түздөн-түз ырасталган |
Антимикробдук туруктуулук профили
Эки донор изолят тең сульфизоксазолго, налидикс кислотасына, офлоксацинге, ципрофлоксацинге, ампициллинге, цефотаксимге, цефепимге, хлорамфениколго, стрептомицинге, гентамицинге, амикацинге, канамицинге, рифампицинге, азитромицинге, фосфомицинге жана тетрациклинге туруктуу деп табылган. Эки изоляттын тең тигециклинге сезгичтиги “intermediate”, меропенемге жана колистинге сезгичтиги “susceptible” деп классификацияланган.
Фенотиптик туруктуулукка шайкеш, эки изолят тең β-лактам, аминогликозид, хинолон, феникол, тетрациклин, сульфонамид, триметоприм, фосфомицин, макролид, линкозамид жана рифамицин туруктуулугуна байланышкан кеңири резистомду алып жүрөт.
Эки изолятка жалпы туруктуулук детерминанттарынын арасында aac(3)-IId, aac(6′)-Iaa, aadA22, aph(3′)-Ia, aph(6)-Id, blaCTX-M-55, blaLAP-2, blaTEM-1B, dfrA14, floR, fosA7, lnu(F), mph(A), qnrS1, sul3, arr-2 жана tet(A) бар.
Sal22C150 мындан тышкары aph(3′′)-Ib алып жүрөт, ал эми Sal22P208де arr-3, aac(6′)-Ib-cr, aadA16, dfrA27, qnrB6 жана sul1 да аныкталган.
Толук геномдук секвенирлөө эки изолят үчүн бирдей деңгээлде жүргүзүлгөнбү?
Жок. Sal22C150 Illumina HiSeq X10 менен болжол менен 200× кыска окуу тереңдигинде секвенирленип, 48 scaffold камтыган каралама геном алынган. N50 366.523 bp, эң чоң scaffold 711.773 bp.
Sal22P208 болсо Illumina HiSeq X10 жана PacBio RS II менен секвенирленип, Unicycler гибриддик жыйнагынын натыйжасында бир хромосома жана бир жабык плазмидден турган толукталган геном алынган. Бул айырма Sal22P208 үчүн плазмиддеги гендердин жайгашуусун физикалык жактан аныктоого мүмкүнчүлүк берген, ал эми Sal22C150 үчүн плазмиддин локализациясы тыянакка негизделген бойдон калган.
Конъюгация сыноосу эмне үчүн критикалык?
Геномдо туруктуулук генинин болушу ал ген башка бактерияга өткөрүлө аларын өзү эле көрсөтпөйт. Ошондуктан изилдөөчүлөр Sal22C150 жана Sal22P208ди донор, рифампицинге туруктуу E. coli J53тү реципиент катары колдонуп broth-mating конъюгация сыноосун жүргүзүшкөн.
Донор жана реципиент культуралары 3:1 катышта аралаштырылып, антимикробдук зат жок LB чөйрөсүндө 37 °Cде 18 саат инкубацияланган. Трансконъюганттар 100 µg/mL рифампицин жана 2 µg/mL цефотаксим камтыган LB агарда тандалган.
Тандалган колонияларда IncHI2 репликону, blaLAP-2 жана blaCTX-M-55 PCR менен ырасталган. Ошентип, туруктуулук гендери донор геномунда гана бар болбостон, IncHI2 менен байланышкан мобилдүү элемент аркылуу жаңы бактериялык кожоюнга бирге өтө алары функционалдык түрдө көрсөтүлгөн.
blaLAP-2 жана blaCTX-M-55 Гендеринин Бирге Өткөрүлүшү Эмнени Көрсөтөт?
Эки β-лактамаза генинин IncHI2 репликону менен бирге бир эле трансконъюганттарда аныкталышы бул туруктуулук детерминанттары байланышкан мобилдүү туруктуулук платформасынын бөлүгү катары жаңы бактериялык фонго бирге өтө аларын көрсөтөт; бирок Sal22C150 үчүн плазмид толук жабылбагандыктан, эки гендин бир эле физикалык жабык плазмид молекуласындагы так орду Sal22P208де гана түздөн-түз ырасталган.
Өткөрүлүү жыштыктары
| Донор | Өткөрүлүү жыштыгы | Бирдик | Түшүндүрмө |
|---|---|---|---|
| Sal22C150 | (4,95 ± 0,41) × 10−5 | Трансконъюгант / донор клетка | Изилденген эки донордун арасында жогору |
| Sal22P208 | (4,46 ± 0,42) × 10−6 | Трансконъюгант / донор клетка | Sal22C150 булагынан чыккан элементке салыштырмалуу олуттуу төмөн |
Конъюгация сыноолору үч көз карандысыз биологиялык кайталоо түрүндө жүргүзүлүп, жыштыктар орточо ± стандарттык четтөө түрүндө берилген. Жыштык маанилери log10 өзгөртүүсүнөн кийин эки куйруктуу Welch t-тести менен салыштырылып, p < 0,05 маанилүүлүк чеги колдонулган.
Өткөрүлүү MIC маанилерин кантип өзгөрткөн?
IncHI2 менен байланышкан элементтердин кабыл алынышы E. coli J53түн көптөгөн антимикробдук заттар үчүн MIC маанилерин жогорулаткан. Ошентсе да ар бир ген же өткөрүлгөн элемент жаңы кожоюнда бирдей көлөмдөгү фенотиптик таасир жараткан эмес.
| Антимикробдук зат | J53 MIC (mg/L) | TC-Sal22C150 MIC (mg/L) | TC-Sal22P208 MIC (mg/L) |
|---|---|---|---|
| Сульфизоксазол | 16 | 64 | 64 |
| Налидикс кислотасы | 0,25 | 2 | 2 |
| Офлоксацин | 0,031 | 0,5 | 0,5 |
| Ципрофлоксацин | 0,016 | 0,5 | 0,5 |
| Ампициллин | 4 | 32 | 32 |
| Цефотаксим | 0,25 | 4 | 4 |
| Цефепим | 0,125 | 8 | 8 |
| Хлорамфеникол | 8 | 32 | 32 |
| Стрептомицин | 4 | 64 | 32 |
| Гентамицин | 0,5 | 8 | 8 |
| Амикацин | 2 | 2 | 2 |
| Канамицин | 2 | 32 | 16 |
| Азитромицин | 4 | 32 | 32 |
| Фосфомицин | 2 | 2 | 2 |
| Тетрациклин | 2 | 16 | 16 |
| Тигециклин | 0,125 | 0,25 | 0,25 |
| Меропенем | 0,031 | 0,031 | 0,031 |
| Колистин | 0,25 | 0,25 | 0,25 |
Амикацин, фосфомицин, меропенем жана колистиндин MIC маанилеринин трансконъюганттарда өзгөрбөгөнү мобилдүү платформаны алуу бардык антимикробдук класстар үчүн бирдей фенотиптик таасир бербегенин көрсөтөт. Булак ошондой эле донор изоляттардагы жогорку хинолон MIC маанилери плазмид менен гана түшүндүрүлбөй турганын белгилейт.
20 пассаждык сакталуу сыноосу эмнени билдирет?
Ар бир донордон алынган PCR менен ырасталган бир трансконъюгант антимикробдук зат жок LB чөйрөсүндө 20 пассаж бою сериялык түрдө өткөрүлгөн. Белгиленген пассаждарда IncHI2 репликону, blaLAP-2 жана blaCTX-M-55 текшерилип, эч бир маркердин жоголушу аныкталган эмес.
Бул жыйынтык өткөрүлгөн туруктуулук платформасы үзгүлтүксүз антибиотик тандоосу жок шартта изилденген лабораториялык пассаж мезгилинде сактала аларын көрсөтөт. “20 пассаж бою сакталды” деген жыйынтык узак мөөнөттүү экологиялык же эпидемиологиялык плазмид туруктуулугу менен бирдей мааниге ээ эмес.
pSal22P208дин негизги түзүлүшү
Sal22P208дин толукталган геному 4.853.117 bp өлчөмүндөгү бир хромосомадан жана 275.096 bp өлчөмүндөгү бир IncHI2 плазмидинен турат. Плазмид конъюгация үчүн зарыл origin-of-transfer аймагын, relaxase, тип IV coupling protein жана traG, traH, traF, traI жана traD кошулган көптөгөн өткөрүү гендерин камтыйт.
Туруктуулук детерминанттары сакталган плазмид өзөгүнүн сыртындагы аксессуардык аймактарда топтолгон.
| Туруктуулук аймагы | Гендер |
|---|---|
| β-лактамазалар | blaLAP-2, blaTEM-1B, blaCTX-M-55 |
| Аминогликозиддер | aph(6)-Id, aadA/ant(3′′)-Ia үй-бүлөсүнүн гени, aac(3)-IId, aph(3′)-Ia |
| Башка туруктуулук детерминанттары | floR, tet(A), sul3, lnu(F), qnrS1, mph(A), arr-2, dfrA14 |
Мозаикалык аксессуардык туруктуулук аймагы
blaLAP-2–ftsI–blaTEM-1B модулу жана blaCTX-M-55 IS26, ошондой эле IS4, IS2 жана IS3 үй-бүлөлөрүнө кирген insertion sequence элементтери жана Tn3 менен Tn21ге байланышкан гендер жайгашкан мобилдүү элементтерге бай аймакта орун алган.
Башка туруктуулук детерминанттары коңшу модулдарда бөлүштүрүлгөн. Ошондуктан pSal22P208дин туруктуулук аймагы бир эле үзгүлтүксүз туруктуулук кассетасы эмес, бир нече түзүлүштүк модул бириккен мозаикалык аксессуардык аймак.
Металлга туруктуулук локустары
pSal22P208 антибиотикке туруктуулук гендеринен тышкары сымапка туруктуулук үчүн merR, merP, merT, merC, merA, merD жана merE; теллурга туруктуулук үчүн болсо terW, terZ, terA, terB, terC, terD жана terE гендерин алып жүрөт.
Антибиотик жана металлга туруктуулук детерминанттарынын физикалык жактан бир эле плазмидде жайгашуусу ылайыктуу айлана-чөйрөлүк шарттарда ко-селекцияга мүмкүнчүлүк түзүшү мүмкүн. Бирок бул изилдөө металл таасири антибиотикке туруктуулук плазмидин чындап тандайбы же жокпу деген суроону эксперименттик түрдө текшерген эмес.
1-сүрөт жана 2-сүрөт эмнени көрсөтөт?
1-сүрөт pSal22P208ди борбордук эталон катары колдонгон тегерек BRIG салыштыруусу. Концентрдик шакектер башка IncHI2 плазмиддеринин pSal22P208 менен нуклеотиддик окшоштугун көрсөтөт. Сырткы шакекте антимикробдук туруктуулук гендери, металлга туруктуулук локустары жана плазмиддин репликация, тейлөө жана конъюгация гендери жайгашкан.
2A-сүрөт pSal22P208дин MDR аймагын беш жакын плазмид менен сызыктуу салыштырып, аксессуардык туруктуулук аймактарында ген курамы, багытталышы жана мобилдүү генетикалык элементтердин жайгашуусу өзгөрө аларын көрсөтөт. 2B-сүрөт болсо pSal22P208дин сымапка туруктуулук аймагын Phytobacter ursingii pCAV1151-296 плазмиди менен салыштырып, сымап локусу негизинен сакталганына карабастан, аны курчаган insertion sequence контексти айырмаланарын көрсөтөт.
Плазмид филогениясы
pSal22P208 жана blaLAP-2 менен blaCTX-M-55 гендерин бирге алып жүргөн 54 эталондук IncHI2 плазмиди kSNP v4.1 колдонулуп SNP негизинде салыштырылган.
Алты эталондук плазмид pSal22P208ден 30 SNPден аз айырмаланат. Жакын плазмиддердин арасында тоок менен байланышкан Salmonella Muenster жана Salmonella Schwarzengrund, уй менен байланышкан E. coli, адам менен байланышкан Канаданын E. coli, музоо этинен алынган АКШнын E. coli жана тоок менен байланышкан Вьетнамдын Salmonella Kentucky плазмиддери бар.
Бул бөлүштүрүлүш жакын IncHI2 плазмиддери ар түрдүү бактериялык түрдө, кожоюнда, азык-түлүк/клиникалык булакта жана географияда кездешиши мүмкүн экенин көрсөтөт. Филогенетикалык жакындык конкреттүү эки изоляттын ортосундагы түздөн-түз өткөрүлүү окуясын өз алдынча далилдебейт.
Изоляттардын хромосомалык филогениясы
Sal22P208 41 S. Havana геномунун арасында анализделгенде Улуу Британиядагы клиникалык GCA_007343335.1 геномуна эң жакын жайгашып, экөөнүн ортосунда 30дан аз хромосомалык SNP аныкталган.
Sal22C150 болсо 60 S. Agona геномун салыштырууда Австралиядан алынган GCA_012169275.1 менен 50дөн аз SNP аралыкта жайгашкан жана Тайвандан алынган бир нече жакын изолят менен бир компакттуу топко кирген.
Бул окшоштуктар ар башка географиялардагы геномдор ортосунда жакын генетикалык байланыштарды көрсөтөт; булак изилдөө буларды түздөн-түз эпидемиологиялык жугуу чынжыры катары ырастаган эмес.
Хромосомалык MDR Аймагы Плазмиддик Туруктуулуктан Эмне Үчүн Башка Жолду Түзөт?
Плазмиддеги туруктуулук детерминанттары конъюгация аркылуу горизонталдык түрдө башка бактерияларга өтө алса, хромосомага интеграцияланган MDR аймагы белгилүү бир плазмиддин сакталышына көз каранды болбостон клетка бөлүнгөндө вертикалдык түрдө берилиши мүмкүн; Sal22P208де бир эле учурда конъюгативдүү IncHI2 плазмидинин да, өзүнчө хромосомалык MDR кошулмасынын да болушу туруктуулуктун топтолушу үчүн бири-бирин толуктаган эки генетикалык жол бир бактерияда биригиши мүмкүн экенин көрсөтөт.
Sal22P208 хромосомалык MDR аймагы
Чоң MDR аймагы хромосомада rpmJ менен rpmEнин ортосуна жайгашкан жана салыштыруу үчүн колдонулган S. Agona SL483түн эквиваленттүү аймагында жок. Чектери Tn3 үй-бүлөсүнүн элементтери менен байланышкан.
Аймак төмөнкү туруктуулук детерминанттарын камтыйт:
- tet(A),
- floR,
- aac(6′)-Ib-cr,
- arr-3,
- dfrA27,
- aadA16,
- qnrB6,
- qacEΔ1,
- sul1.
Буларга мышьякка туруктуулук гендеринин кластери жана ISVsa3, IS26, ISCR1 жана IS6100 сыяктуу мобилдүү генетикалык элементтер коштолот. Эки qacEΔ1–sul1 сегменти жана 1-класстагы интегрон менен байланышкан компоненттер да билдирилген.
Citrobacter braakii LBA3 менен окшоштук
Sal22P208дин хромосомалык MDR аймагы Citrobacter braakii LBA3төгү туруктуулук аймагы менен айрым гендердин деңгээлинде гана эмес, Tn3 менен байланышкан чектер, мышьякка туруктуулук локусу, tet(A)–floR модулу жана 1-класстагы интегрон–ISCR1 менен байланышкан гендердин жайгашуусу жагынан да кеңири окшоштук көрсөтөт.
Бул түзүлүштөр жалпы мобилдүү туруктуулук архитектурасынан келип чыккан болушу мүмкүн деп эсептелет. Бирок тизмек менен ген тартибинин окшоштугу өткөрүлүү кайсы багытта жүргөнүн, качан болгонун же Salmonella менен Citrobacter ортосунда түздөн-түз transfer болгонун көрсөтпөйт. Жалпы резервуар же жалпы ата-тектен калган мобилдүү элемент да мүмкүн болгон түшүндүрмөлөрдүн бири.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Salmonellaны бөлүп алуу жана аныктоо
Изоляттар Шанхайда азык-түлүк аркылуу таралуучу патогендерди күнүмдүк көзөмөлдөө алкагында чекене тоок жана чочко эти үлгүлөрүнөн алынган. Бөлүп алуу ISO 6579-1:2017 негизинде майда модификациялар менен жүргүзүлгөн.
Азык-түлүк үлгүлөрү buffered peptone water ичинде алдын ала байытуудан, андан кийин tetrathionate broth ичинде тандалма байытуудан өткөрүлгөн; культуралар xylose lysine tergitol 4 агарга себилген. Шектүү Salmonella колониялары triple sugar iron agar, уреаза жана лизин декарбоксилаза тесттери менен ырасталган.
Сероварлар коммерциялык O жана H антисерумдары менен slide agglutination жана геномдук маалыматтан SeqSero2 v1.3.2 аркылуу ырасталган. Sequence type белгилөө жети локустуу Salmonella MLST схемасына ылайык жүргүзүлгөн.
Антимикробдук сезгичтик тести
Сульфизоксазол, налидикс кислотасы, офлоксацин, ципрофлоксацин, ампициллин, цефотаксим, цефепим, хлорамфеникол, стрептомицин, гентамицин, амикацин, канамицин, рифампицин, азитромицин, фосфомицин, тетрациклин жана меропенем үчүн MIC агардык суюлтуу ыкмасы менен аныкталган.
Тигециклин жана колистин үчүн broth microdilution колдонулган. Натыйжалар CLSI M100 34-басылышынын (2024) чектерине ылайык чечмеленген жана сапатты көзөмөлдөө штаммы катары E. coli ATCC 25922 колдонулган.
Кеминде үч антимикробдук категорияда бир же андан көп агентке сезгич эмес изоляттар MDR катары классификацияланган.
Толук геномдук секвенирлөө жана биоинформатика
Sal22C150 жана Sal22P208дин геномдук ДНКсы TIANamp Bacteria DNA Kit менен бөлүнүп алынган. Sal22C150 Illumina HiSeq X10 менен гана кыска окуу форматында секвенирленген. Sal22P208 үчүн Illumina HiSeq X10го кошумча PacBio RS II узун окуу маалыматтары алынган.
Illumina окуулары fastp v1.3.6 менен чыпкаланган, Sal22P208 үчүн Illumina + PacBio гибриддик жыйнагы Unicycler v0.5.1 менен жүргүзүлгөн. Жыйнактын сапаты QUAST v5.3.0 менен бааланган.
Туруктуулук гендери ResFinder v4.7.2, плазмид репликондору PlasmidFinder v3.0.3 менен аныкталган. Мобилдүү генетикалык элементтер ISfinder, конъюгацияга байланышкан аймактар oriTfinder2 v2.0 менен талданган.
Конъюгация жана PCR менен ырастоо
| Параметр | Булактагы маани |
|---|---|
| Донорлор | Sal22C150 жана Sal22P208 |
| Реципиент | Рифампицинге туруктуу E. coli J53 |
| Донор:реципиент катышы | 3:1 |
| Чөйрө | Антимикробдук зат жок LB broth |
| Инкубация | 37 °C, 18 саат |
| Тандоо чөйрөсү | 100 µg/mL рифампицин + 2 µg/mL цефотаксим камтыган LB agar |
| PCR максаттары | IncHI2 репликону, blaLAP-2, blaCTX-M-55 |
| PCR көлөмү | 50 µL |
| Annealing температурасы | 55 °C |
| Күтүлгөн ampliconдор | Болжол менен 748 bp, 478 bp жана 971 bp |
Плазмиддин сакталуу сыноосу
Ар бир донордон алынган PCR менен ырасталган бир трансконъюгант антимикробдук зат жок LBде 20 пассаж бою сериялык түрдө өткөрүлгөн. Белгиленген пассаждарда колониялар IncHI2 репликону, blaLAP-2 жана blaCTX-M-55 боюнча текшерилген.
Изилденген 20 пассаж бою үч маркердин тең жоголушу аныкталган эмес.
Филогенетикалык анализ
NCBIден blaLAP-2 жана blaCTX-M-55 гендерин бирге алып жүргөн IncHI2 плазмиддери чогултулуп, чыпкалоодон кийин pSal22P208 менен 54 эталондук плазмид kSNP v4.1 колдонулуп SNP негизиндеги филогенетикалык жана жуптук SNP аралык анализине киргизилген.
Мындан тышкары эки серовар үчүн өзүнчө хромосомалык анализдер жүргүзүлүп, 41 S. Havana жана 60 S. Agona геному колдонулган. Дарактар iTOL v7.6 менен визуалдаштырылып, аннотацияланган.
Салыштырма геномика
Толук плазмиддик салыштыруулар BRIG v0.95 менен, белгилүү туруктуулук аймактарынын сызыктуу салыштыруулары Easyfig v2.1 менен жүргүзүлгөн.
pSal22P208дин MDR жана сымапка туруктуулук аймактары тиешелүү плазмиддер менен салыштырылган. Хромосомалык rpmJ–rpmE аймагы болсо туруктуулук кошулмасын алып жүрбөгөн S. Agona SL483 жана түзүлүшү окшош туруктуулук аймагы бар C. braakii LBA3 менен салыштырылган.
Статистикалык анализ
Конъюгация сыноолору үч көз карандысыз биологиялык кайталоо менен жүргүзүлгөн. Конъюгация жыштыктары орточо ± стандарттык четтөө катары берилген, log10 өзгөртүүсү колдонулган жана эки куйруктуу Welch t-тести пайдаланылган. Маанилүүлүк чеги p < 0,05.
Плазмид retention көрсөткүчтөрү пайыз менен, MIC жана геномдук өзгөчөлүктөр сүрөттөмө түрүндө жыйынтыкталган.
Булактагы 1–5-сүрөттөрдүн илимий ролу
1-сүрөт: pSal22P208дин байланышкан IncHI2 плазмиддери менен тегерек геномдук салыштыруусун көрсөтөт. Сакталган плазмид өзөгүн өзгөрмө аксессуардык аймактардан айырмалайт.
2-сүрөт: pSal22P208дин MDR жана сымапка туруктуулук аймактарын окшош плазмиддер менен сызыктуу салыштырат. Туруктуулук гендери бир статикалык кассетадан көрө мобилдүү элементтер менен курчалган мозаикалык модулдар түрүндө уюшулганын көрсөтөт.
3-сүрөт: pSal22P208 жана 54 байланышкан IncHI2 плазмидинин SNP негизиндеги филогенетикалык байланышын көрсөтөт. Бир эле жакын плазмид линиясы ар кандай бактерия, кожоюн, булак жана географияда кездешиши мүмкүн экенин көрсөтөт.
4-сүрөт: Sal22P208 жана Sal22C150ни өз сероварларына таандык дүйнөлүк геномдор менен салыштырат. Изоляттар географиялык жактан алыс булактар менен да жакын геномдук байланыш көрсөтүшү мүмкүн экенин ачып берет.
5-сүрөт: Sal22P208 хромосомасындагы rpmJ–rpmE MDR кошулмасын туруктуулук кошулмасы жок эталондук Salmonella аймагы жана окшош түзүлүштү алып жүргөн C. braakii LBA3 менен салыштырат.
Изилдөө колдогон жыйынтыктар
- Изилденген Sal22C150 жана Sal22P208 изоляттары көп дарыга туруктуу.
- Эки изоляттын IncHI2 менен байланышкан blaLAP-2 жана blaCTX-M-55 детерминанттары E. coli J53кө бирге өткөрүлө алган.
- Sal22C150 булагынан чыккан элементтин өлчөнгөн конъюгация жыштыгы Sal22P208 булагынан чыккан элементке караганда жогору.
- Өткөрүлгөн IncHI2 репликону, blaLAP-2 жана blaCTX-M-55 тандоочу антибиотик жок шартта 20 пассаж бою аныкталган.
- pSal22P208 275.096 bp өлчөмүндөгү конъюгативдүү IncHI2 плазмиди болуп, 15 антимикробдук туруктуулук детерминантын жана сымап/теллур туруктуулук локустарын алып жүрөт.
- pSal22P208дин аксессуардык туруктуулук аймагы мобилдүү элементтерге байланышкан мозаикалык уюшулушка ээ.
- pSal22P208ге абдан жакын IncHI2 плазмиддери ар түрдүү Salmonella сероварларында жана E. coliде; жаныбар, азык-түлүк жана адам булактарында кездешет.
- Sal22P208 мындан тышкары плазмидден көз карандысыз чоң хромосомалык MDR кошулмасын алып жүрөт.
- Хромосомалык MDR аймагы Citrobacter braakii LBA3төгү түзүлүш менен кеңири структуралык окшоштук көрсөтөт.
Изилдөө колдобогон жыйынтыктар
- Бул эки изолят IncHI2–blaLAP-2–blaCTX-M-55 платформаларынын Кытайдагы же дүйнөлүк Salmonella таралышын аныктабайт.
- Sal22C150дө эки β-лактамаза гени pSal22P208ге окшош бир жабык плазмидде жайгашканы түздөн-түз көрсөтүлгөн эмес.
- 20 пассаждык сакталуу табигый экосистемадагы узак мөөнөттүү плазмид туруктуулугун далилдебейт.
- Жакын плазмиддердин ортосундагы төмөн SNP аралыгы белгилүү бир түздөн-түз жугуу чынжырын же transfer багытын далилдебейт.
- Sal22P208 менен Citrobacter braakii LBA3 ортосундагы хромосомалык MDR аймагынын окшоштугу эки түрдүн ортосунда түз transfer болгонун далилдебейт.
- Антибиотик жана оор металлдарга туруктуулук гендеринин бир плазмидде болушу реалдуу айлана-чөйрөдөгү металл таасири антибиотикке туруктуулукту тандай турганын түздөн-түз көрсөтпөйт.
- Туруктуулук генинин болушу жаңы кожоюнда сөзсүз бирдей өлчөмдөгү фенотиптик MIC жогорулашын жаратат дегенди билдирбейт.
Негизги методологиялык чектөөлөр
Изилдөөнүн эң көрүнүктүү чектөөсү — азык-түлүктөн алынган болгону эки изолят изилденген. Бул үлгү эпидемиологиялык таралышты же популяциялык бөлүштүрүлүштү баалоо үчүн жетишсиз.
Экинчи маанилүү чектөө — эки изолят үчүн секвенирлөө чечилишинин ар башка болушу. Sal22P208 жабык плазмид деңгээлинде чечилсе, Sal22C150 каралама кыска-окуу жыйнагы бойдон калган. Ошондуктан эки изоляттын IncHI2 аймактарынын толук структуралык эквиваленттүүлүгү аныкталган эмес.
Плазмиддин сакталуу сыноосу лаборатория шартында болгону 20 пассажды камтыйт. Ар башка кожоюн түрлөрү, температуралар, азык-түлүк чынжырынын чөйрөлөрү же узак мөөнөттүү тандоо шарттары текшерилген эмес.
Конъюгация E. coli J53 реципиенти менен лаборатория шартында жүргүзүлгөн. Чыныгы азык-түлүк матрицасында, ичеги экосистемасында же айлана-чөйрөлүк микробиотадагы transfer жыштыктары бул изилдөөдө өлчөнгөн эмес.
Филогенетикалык жана структуралык салыштыруулар күчтүү геномдук байланыш далилдерин бергени менен, transfer окуяларынын тарыхын же багытын өз алдынча аныктай албайт.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска изилдөө: Transferable IncHI2-Associated blaLAP-2 and blaCTX-M-55 Resistance Platforms in Foodborne Salmonella.
Авторлор: Zeqiang Zhan; Shaoping Zhang; Bingguo Wei; Yurui Zheng; Xingrui Li; Qiqi Lin; Jiang Chang; Shoukui He; Hongwu Wang.
Жооптуу авторлор: Shoukui He жана Hongwu Wang.
Мекемелер: School of Food and Pharmaceutical Engineering, Zhaoqing University; Laboratory of Quality and Safety Risk Assessment for Agro-Products (Zhaoqing), Ministry of Agriculture and Rural Affairs; Guangdong Engineering Technology Research Center of Food and Agricultural Product Safety Analysis and Testing; Key Laboratory of Systems Health Science of Zhejiang Province, Hangzhou Institute for Advanced Study, University of Chinese Academy of Sciences; MOST-USDA Joint Research Center for Food Safety, Shanghai Jiao Tong University.
Журнал жана басылма идентификациясы: Foods, 2026, Том 15, Сан 17, Макала 3130. Басмачы: MDPI. DOI: 10.3390/foods15173130.
Басылма процесси: Кабыл алынган 8 Август 2026; кайра каралган 27 Август 2026; кабыл алынган 30 Август 2026; жарыяланган 3 Сентябрь 2026.
Булактын түрү: Рецензияланган, ачык жеткиликтүү оригиналдуу изилдөө макаласы. Лабораториялык конъюгацияны, антимикробдук сезгичтикти, толук геномдук секвенирлөөнү жана салыштырма геномиканы бириктирет.
Лицензия: Creative Commons Attribution (CC BY).
Негизги үлгү: Шанхайда 2022-жылы чекене тоок этинен алынган S. Agona ST13 Sal22C150 жана чекене чочко этинен алынган S. Havana ST1527 Sal22P208.
Негизги ыкмалар: ISO 6579-1:2017 негизиндеги Salmonella бөлүп алуу; серологиялык жана SeqSero2 серотиптөө; MLST; CLSI негизиндеги MIC өлчөө; Illumina HiSeq X10; PacBio RS II; fastp; Unicycler; QUAST; ResFinder; PlasmidFinder; ISfinder; oriTfinder2; broth-mating конъюгациясы; PCR; 20 пассаждык плазмид маркерлеринин сакталуу анализи; kSNP; iTOL; BRIG жана Easyfig.
Статистика: Конъюгация сыноолорунда үч көз карандысыз биологиялык кайталоо; орточо ± стандарттык четтөө; log10 өзгөртүүсү; эки куйруктуу Welch t-тести; p < 0,05.
Геномдук маалыматтарга жеткиликтүүлүк: Sal22C150 каралама геному NCBI BioProject PRJNA1518757; Sal22P208 толукталган геному NCBI BioProject PRJNA1518769.
Каржылоо: National Natural Science Foundation of China No. 32402222; Natural Science Foundation of Guangdong Province No. 2023A1515110754; Department of Education of Guangdong Province Science Project No. 2024KSYS007; Zhaoqing University Science Projects No. GCC202603 жана SD202401; Young Innovative Talents Project of the Department of Education of Guangdong Province No. 2024KQNCX022.
Этика комитети: Колдонулбайт.
Маалымдалган макулдук: Колдонулбайт.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Жасалма интеллектти колдонуу жөнүндө билдирүү: Авторлор макала даярдалып жатканда грамматикалык каталарды текшерүү үчүн DeepSeek-R1 колдонушканын; алынган жыйынтыкты өздөрү карап чыгып, түзөтүшкөнүн жана акыркы текст үчүн жоопкерчиликти өз мойнуна алышканын билдиришкен.
Авторлордун салымы: Zeqiang Zhan: концептуалдаштыруу, ыкма, изилдөө, маалыматтарды башкаруу, формалдуу анализ, визуалдаштыруу жана алгачкы долбоор; Shaoping Zhang: ыкма, изилдөө жана маалыматтарды башкаруу; Bingguo Wei: изилдөө, формалдуу анализ жана текшерүү; Yurui Zheng: изилдөө жана маалыматтарды башкаруу; Xingrui Li: ыкма, изилдөө жана визуалдаштыруу; Qiqi Lin жана Jiang Chang: формалдуу анализ, текшерүү жана кароо/түзөтүү; Shoukui He: концептуалдаштыруу, көзөмөл, текшерүү жана кароо/түзөтүү; Hongwu Wang: концептуалдаштыруу, долбоорду башкаруу, көзөмөл, каржылоо жана кароо/түзөтүү.
Илимий чечмелөөнүн чеги
Бул изилдөөнүн күчтүү жагы туруктуулук гендерин болгону бар/жок түрүндө билдирүүнүн ордуна конъюгативдүү өткөрүлүүнү, өткөрүлгөндөн кийинки кыска мөөнөттүү сакталышты, жабык плазмиддик жыйнакты, аксессуардык аймак архитектурасын, плазмид филогениясын жана хромосомалык MDR кошулмасын бир изилдөөдө бириктиргенинде. Ошентсе да, болгону эки изолят изилденгендиктен, жыйынтыктар таралыш боюнча изилдөө катары кабыл алынбашы керек; өзгөчө Sal22C150 үчүн физикалык плазмид архитектурасы толукталган узун-окуу жыйнагы менен өзүнчө ырасталышы зарыл.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген