


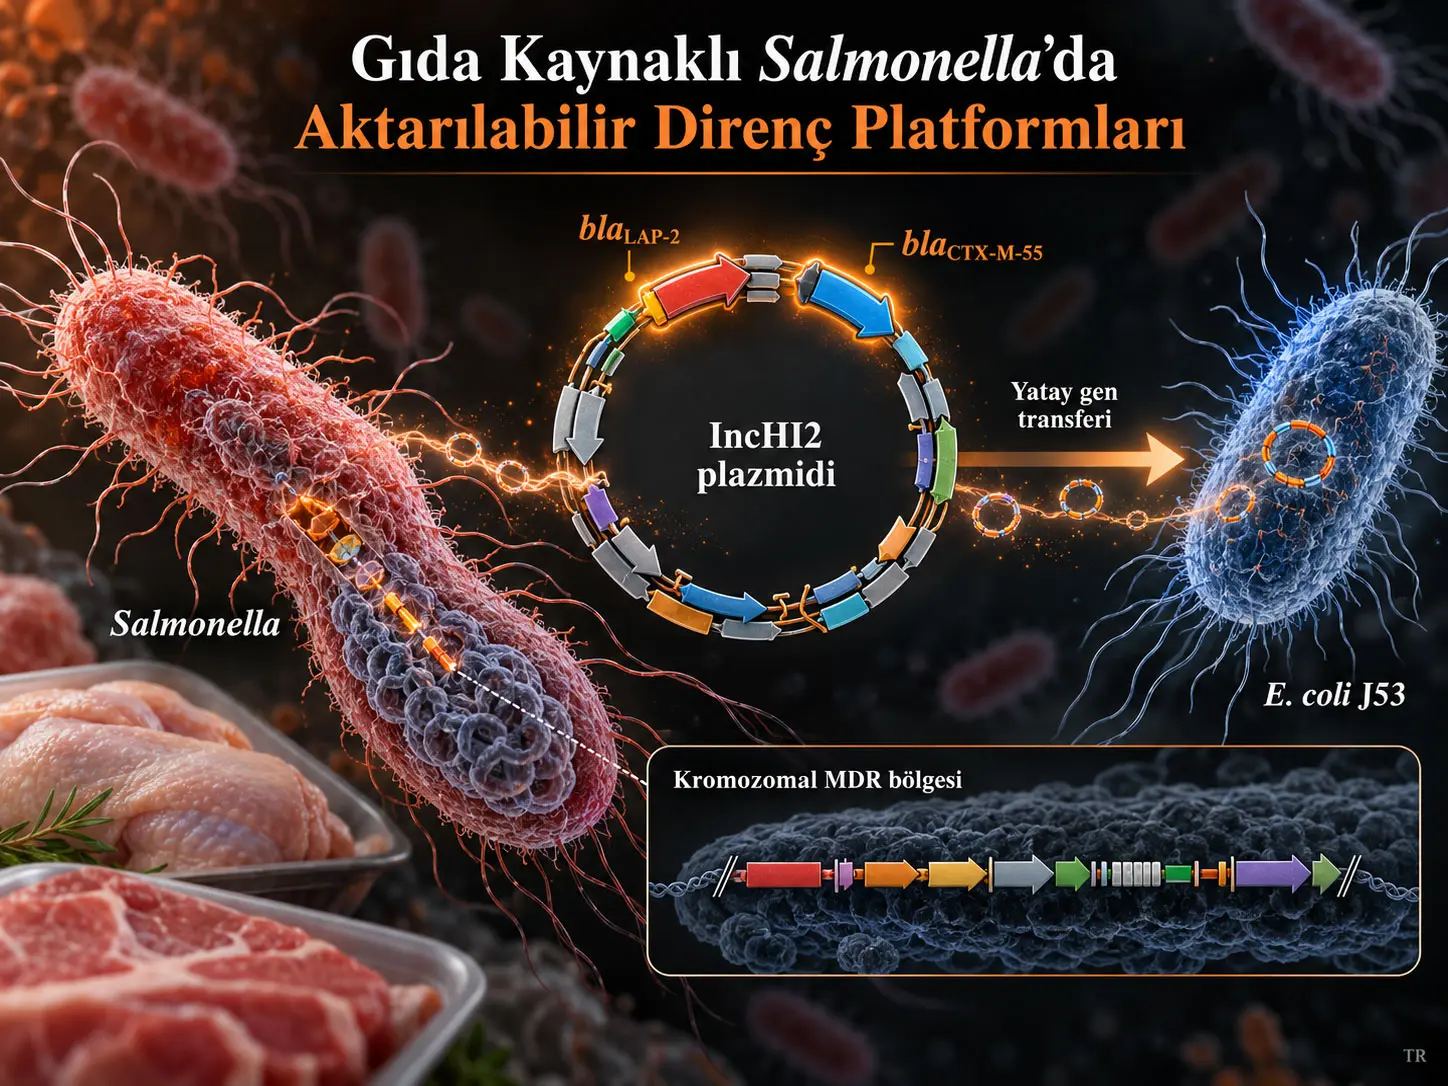
Bu çalışma, gıda kaynaklı Salmonella enterica izolatlarında blaLAP-2 ve blaCTX-M-55 β-laktamaz genlerini birlikte taşıyan IncHI2 ile ilişkili çoklu ilaç direnci platformlarının genetik yapısını ve aktarılabilirliğini incelemektedir. IncHI2 plasmidi, korunmuş replikasyon ve konjugasyon omurgasına ek olarak çok sayıda direnç geni ve başka adaptif genetik modülü taşıyabilen büyük bir mobil genetik elementtir. Araştırmacılar 2022 yılında Şanghay'da perakende tavuk etinden izole edilen Salmonella Agona ST13 Sal22C150 ile perakende domuz etinden izole edilen Salmonella Havana ST1527 Sal22P208 üzerinde antimikrobiyal duyarlılık, tüm genom dizileme, konjugasyon, plasmid korunum deneyi, karşılaştırmalı genomik ve SNP tabanlı filogenetik analizler gerçekleştirmiştir.
Her iki izolat çoklu ilaç dirençli bulunmuştur. blaLAP-2 ve blaCTX-M-55, IncHI2 replikonuyla birlikte rifampisine dirençli Escherichia coli J53 alıcısına aktarılmıştır. Aktarım frekansı Sal22C150 için (4,95 ± 0,41) × 10−5, Sal22P208 için ise (4,46 ± 0,42) × 10−6 transkonjugant/donor hücre olarak ölçülmüştür. Sal22C150 kaynaklı elementin aktarım frekansı anlamlı biçimde daha yüksektir. IncHI2 replikonu ile iki β-laktamaz geni, antimikrobiyal seçilim uygulanmadan 20 pasaj boyunca saptanmaya devam etmiştir.
Sal22P208'in Illumina ve PacBio verileriyle oluşturulan tamamlanmış genom montajı, 275.096 bp uzunluğundaki pSal22P208 adlı IncHI2 plasmidini ortaya koymuştur. blaLAP-2, blaTEM-1B ve blaCTX-M-55 bu plasmid üzerinde bulunmuş; pSal22P208'in aksesuar bölgelerinde toplam 15 antimikrobiyal direnç determinantının yanı sıra cıva ve tellüryum direnci lokusları saptanmıştır. Buna karşılık Sal22C150 yalnız kısa okuma ile dizilendiği için blaLAP-2 ve blaCTX-M-55'in IncHI2 ile ilişkisi kapalı plasmid dizisiyle değil, genomik bağlam ve konjugasyon kanıtlarıyla çıkarılmıştır.
Sal22P208'in kromozomunda ayrıca rpmJ ile rpmE arasına yerleşmiş, çok sayıda antibiyotik ve arsenik direnç determinantı taşıyan ayrı bir MDR bölgesi belirlenmiştir. Bu bölgenin Citrobacter braakii LBA3'teki bir direnç mimarisiyle yüksek yapısal benzerliği, karmaşık mobil direnç modüllerinin farklı Enterobacterales üyelerinde bulunabileceğini göstermektedir; ancak dizi benzerliği iki tür arasında doğrudan aktarımın yönünü veya zamanını kanıtlamaz.
Çalışmanın ana yorum sınırı örneklem büyüklüğüdür. Yalnız iki izolat incelendiği için sonuçlar söz konusu IncHI2 platformlarının prevalansını veya gıda zincirindeki popülasyon düzeyi dağılımını belirlemez. Ayrıca 20 pasajlık korunum deneyi kısa dönem laboratuvar kalıcılığını gösterir; doğal ekosistemlerde veya gıda üretim zincirinde uzun dönem plasmid stabilitesini ölçmez.
Araştırmanın temel problemi
Antimikrobiyal direnç yalnız tek tek direnç genlerinin ortaya çıkmasından ibaret değildir. Direnç genlerinin hangi plasmid, transpozon, integron veya kromozomal yapı içerisinde bulunduğu; farklı bakterilere aktarılıp aktarılamadığı ve aktarım sonrasında seçici antibiyotik baskısı olmadan korunup korunamadığı, direnç yayılımının epidemiyolojik önemini belirleyen temel faktörlerdir.
Gıda kaynaklı Salmonella, hayvan, gıda, insan ve çevre arasında hareket edebilen önemli bir enterik patojendir. Özellikle florokinolonlara ve genişlemiş spektrumlu sefalosporinlere direnç, ağır veya invazif salmonellozun tedavisinde kullanılan başlıca antimikrobiyal seçenekleri etkileyebildiği için önem taşımaktadır.
CTX-M ailesi genişlemiş spektrumlu β-laktamazlar içinde yaygın bir gruptur. blaCTX-M-55 özellikle Asya'daki gıda hayvanları ve gıda kaynaklı Enterobacterales popülasyonlarında giderek daha fazla raporlanan bir direnç determinantıdır. LAP ailesi ise daha az ayrıntılı karakterize edilmiştir. Bu çalışmanın araştırma boşluğu, blaLAP-2 ile blaCTX-M-55'i birlikte taşıyan IncHI2 ilişkili MDR platformlarının aktarılabilirliği, kısa dönem korunumu ve ayrıntılı modüler organizasyonunun yeterince açıklanmamış olmasıdır.
IncHI2 Plasmidleri Antimikrobiyal Direncin Yayılmasında Neden Önemlidir?
IncHI2 plasmidleri, bakterinin kromozomundan bağımsız olarak çoğalabilen ve konjugasyonla başka bakterilere aktarılabilen büyük DNA molekülleridir; korunmuş replikasyon, bakım ve transfer omurgalarının yanında antibiyotik direnci, ağır metal direnci, integronlar, transpozonlar ve insertion sequence elemanları içeren değişken aksesuar bölgeler taşıyabilirler. Bu mimari, direnç genlerinin tek tek değil, bağlantılı bir genetik paket halinde farklı bakteriyel arka planlara taşınmasına olanak sağlayabilir.
İncelenen iki gıda izolatı
| Özellik | Sal22C150 | Sal22P208 |
|---|---|---|
| İzolasyon yılı | 2022 | 2022 |
| Kaynak | Perakende tavuk eti | Perakende domuz eti |
| Yer | Şanghay, Çin | Şanghay, Çin |
| Serovar | Salmonella Agona | Salmonella Havana |
| Sequence type | ST13 | ST1527 |
| IncHI2 ile ilişkili genler | blaLAP-2, blaCTX-M-55; ilişki kısa okuma + replikon + konjugasyon kanıtıyla çıkarıldı | blaLAP-2, blaTEM-1B, blaCTX-M-55; pSal22P208 üzerinde doğrudan doğrulandı |
Antimikrobiyal direnç profili
Her iki donor izolat sulfisoksazol, nalidiksik asit, ofloksasin, siprofloksasin, ampisilin, sefotaksim, sefepim, kloramfenikol, streptomisin, gentamisin, amikasin, kanamisin, rifampisin, azitromisin, fosfomisin ve tetrasikline dirençli bulunmuştur. İki izolatın da tigesikline duyarlılığı “intermediate”, meropenem ve kolistine duyarlılığı ise “susceptible” olarak sınıflandırılmıştır.
Fenotipik dirençle uyumlu olarak her iki izolat β-laktam, aminoglikozid, kinolon, fenikol, tetrasiklin, sulfonamid, trimetoprim, fosfomisin, makrolid, linkozamid ve rifamisin direnciyle ilişkili geniş bir resistom taşımaktadır.
İki izolatın ortak direnç determinantları arasında aac(3)-IId, aac(6′)-Iaa, aadA22, aph(3′)-Ia, aph(6)-Id, blaCTX-M-55, blaLAP-2, blaTEM-1B, dfrA14, floR, fosA7, lnu(F), mph(A), qnrS1, sul3, arr-2 ve tet(A) bulunmaktadır.
Sal22C150 ayrıca aph(3′′)-Ib taşırken Sal22P208'de arr-3, aac(6′)-Ib-cr, aadA16, dfrA27, qnrB6 ve sul1 de belirlenmiştir.
Tüm genom dizileme iki izolat için aynı düzeyde miydi?
Hayır. Sal22C150 Illumina HiSeq X10 ile yaklaşık 200× kısa okuma derinliğinde dizilenmiş ve 48 scaffold içeren taslak genom elde edilmiştir. N50 366.523 bp, en büyük scaffold 711.773 bp'dir.
Sal22P208 ise hem Illumina HiSeq X10 hem PacBio RS II ile dizilenmiş ve Unicycler hibrit montajı sonucunda bir kromozom ile tek kapalı plasmidden oluşan tamamlanmış genom elde edilmiştir. Bu farklılık, Sal22P208 için plasmid üzerindeki gen konumlarının fiziksel olarak çözülebilmesini sağlarken Sal22C150 için plasmid lokalizasyonunun çıkarımsal kalmasına neden olmuştur.
Konjugasyon deneyi neden kritik?
Genomda bir direnç geninin bulunması, o genin başka bakteriye aktarılabildiğini tek başına göstermez. Araştırmacılar bu nedenle Sal22C150 ve Sal22P208'i donor; rifampisine dirençli E. coli J53'ü alıcı olarak kullanarak broth-mating konjugasyon deneyi gerçekleştirmiştir.
Donor ve alıcı kültürler 3:1 oranında karıştırılmış ve antimikrobiyal içermeyen LB ortamında 37 °C'de 18 saat inkübe edilmiştir. Transkonjugantlar 100 µg/mL rifampisin ve 2 µg/mL sefotaksim içeren LB agarda seçilmiştir.
Seçilen kolonilerde IncHI2 replikonu, blaLAP-2 ve blaCTX-M-55 PCR ile doğrulanmıştır. Böylece direnç genlerinin yalnız donor genomunda bulunduğu değil, IncHI2 ile ilişkili bir mobil elementle yeni bir bakteriyel konakçıya birlikte geçebildiği işlevsel olarak gösterilmiştir.
blaLAP-2 ve blaCTX-M-55'in Birlikte Aktarılması Neyi Gösteriyor?
İki β-laktamaz geninin IncHI2 replikonuyla birlikte aynı transkonjugantlarda saptanması, bu direnç determinantlarının bağlantılı bir mobil direnç platformunun parçası olarak yeni bir bakteriyel arka plana birlikte taşınabildiğini gösterir; ancak Sal22C150 için plasmid tamamen kapatılmadığından iki genin aynı fiziksel kapalı plasmid molekülündeki kesin konumu yalnız Sal22P208'de doğrudan doğrulanmıştır.
Aktarım frekansları
| Donor | Aktarım frekansı | Birim | Yorum |
|---|---|---|---|
| Sal22C150 | (4,95 ± 0,41) × 10−5 | Transkonjugant / donor hücre | İncelenen iki donor arasında daha yüksek |
| Sal22P208 | (4,46 ± 0,42) × 10−6 | Transkonjugant / donor hücre | Sal22C150 kaynaklı elementten anlamlı olarak düşük |
Konjugasyon deneyleri üç bağımsız biyolojik tekrar olarak yürütülmüş, frekanslar ortalama ± standart sapma biçiminde ifade edilmiştir. Frekans değerleri log10 dönüşümünden sonra iki kuyruklu Welch t-testiyle karşılaştırılmış ve p < 0,05 anlamlılık sınırı kullanılmıştır.
Aktarım MIC değerlerini nasıl değiştirdi?
IncHI2 ile ilişkili elementlerin kazanılması E. coli J53'ün çok sayıda antimikrobiyal için MIC değerini yükseltmiştir. Bununla birlikte her gen veya aktarılmış element yeni konakta aynı büyüklükte fenotipik etki oluşturmamıştır.
| Antimikrobiyal | J53 MIC (mg/L) | TC-Sal22C150 MIC (mg/L) | TC-Sal22P208 MIC (mg/L) |
|---|---|---|---|
| Sulfisoksazol | 16 | 64 | 64 |
| Nalidiksik asit | 0,25 | 2 | 2 |
| Ofloksasin | 0,031 | 0,5 | 0,5 |
| Siprofloksasin | 0,016 | 0,5 | 0,5 |
| Ampisilin | 4 | 32 | 32 |
| Sefotaksim | 0,25 | 4 | 4 |
| Sefepim | 0,125 | 8 | 8 |
| Kloramfenikol | 8 | 32 | 32 |
| Streptomisin | 4 | 64 | 32 |
| Gentamisin | 0,5 | 8 | 8 |
| Amikasin | 2 | 2 | 2 |
| Kanamisin | 2 | 32 | 16 |
| Azitromisin | 4 | 32 | 32 |
| Fosfomisin | 2 | 2 | 2 |
| Tetrasiklin | 2 | 16 | 16 |
| Tigesiklin | 0,125 | 0,25 | 0,25 |
| Meropenem | 0,031 | 0,031 | 0,031 |
| Kolistin | 0,25 | 0,25 | 0,25 |
Amikasin, fosfomisin, meropenem ve kolistin MIC değerlerinin transkonjugantlarda değişmemesi, bir mobil platformun kazanılmasının bütün antimikrobiyal sınıflar için eşit fenotipik etki oluşturmadığını göstermektedir. Kaynak ayrıca donor izolatlardaki yüksek kinolon MIC değerlerinin yalnız plasmid tarafından açıklanamadığını belirtmektedir.
20 pasajlık korunum deneyi ne anlama geliyor?
Her donordan elde edilen PCR-doğrulanmış bir transkonjugant antimikrobiyal içermeyen LB ortamında 20 pasaj boyunca seri olarak aktarılmıştır. Belirlenen pasajlarda IncHI2 replikonu, blaLAP-2 ve blaCTX-M-55 araştırılmış ve hiçbir marker kaybı tespit edilmemiştir.
Bu sonuç, aktarılan direnç platformunun sürekli antibiyotik seçilimi olmadan incelenen laboratuvar pasaj süresince korunabildiğini göstermektedir. “20 pasaj boyunca korundu” sonucu uzun dönem çevresel veya epidemiyolojik plasmid stabilitesiyle eş anlamlı değildir.
pSal22P208'in temel yapısı
Sal22P208'in tamamlanmış genomu 4.853.117 bp'lik bir kromozom ile 275.096 bp'lik tek IncHI2 plasmidinden oluşmaktadır. Plasmid konjugasyon için gerekli bir origin-of-transfer bölgesi, relaxase, tip IV coupling protein ve traG, traH, traF, traI ve traD dahil çok sayıda transfer geni içermektedir.
Direnç determinantları korunmuş plasmid omurgasının dışında, aksesuar bölgelerde yoğunlaşmıştır.
| Direnç alanı | Genler |
|---|---|
| β-laktamazlar | blaLAP-2, blaTEM-1B, blaCTX-M-55 |
| Aminoglikozidler | aph(6)-Id, aadA/ant(3′′)-Ia ailesi geni, aac(3)-IId, aph(3′)-Ia |
| Diğer direnç determinantları | floR, tet(A), sul3, lnu(F), qnrS1, mph(A), arr-2, dfrA14 |
Mozaik aksesuar direnç bölgesi
blaLAP-2–ftsI–blaTEM-1B modülü ile blaCTX-M-55, IS26 ve IS4, IS2 ve IS3 ailelerine ait insertion sequence elemanlarının yanı sıra Tn3 ve Tn21 ile ilişkili genlerin bulunduğu mobil-element açısından zengin bir bölgede yer almaktadır.
Diğer direnç determinantları komşu modüllerde dağılmıştır. Bu nedenle pSal22P208'in direnç bölgesi tek bir sürekli direnç kaseti değil, birden çok yapısal modülün birleştiği mozaik bir aksesuar bölgedir.
Metal direnci lokusları
pSal22P208, antibiyotik direnç genlerine ek olarak cıva direnci için merR, merP, merT, merC, merA, merD ve merE; tellüryum direnci için ise terW, terZ, terA, terB, terC, terD ve terE taşımaktadır.
Antibiyotik ve metal direnci determinantlarının fiziksel olarak aynı plasmidde bulunması uygun çevresel koşullarda ko-seleksiyon için bir olanak sağlayabilir. Ancak bu çalışma metal maruziyetinin antibiyotik direnci plasmidini gerçekten seçip seçmediğini deneysel olarak test etmemiştir.
Şekil 1 ve Şekil 2 ne gösteriyor?
Şekil 1, pSal22P208'i merkez referans olarak kullanan dairesel BRIG karşılaştırmasıdır. Konsantrik halkalar diğer IncHI2 plasmidlerinin pSal22P208 ile nükleotid benzerliğini gösterir. Dış halkada antimikrobiyal direnç genleri, metal direnci lokusları ve plasmid replikasyon, bakım ve konjugasyon genleri yer almaktadır.
Şekil 2A, pSal22P208'in MDR bölgesini beş yakın plasmidle doğrusal olarak karşılaştırır ve aksesuar direnç bölgelerinde gen içeriği, yönlenme ve mobil genetik element düzeninin değişebildiğini gösterir. Şekil 2B ise pSal22P208'in cıva direnci bölgesini Phytobacter ursingii pCAV1151-296 plasmidiyle karşılaştırmakta; cıva lokusunun büyük ölçüde korunmasına rağmen çevreleyen insertion sequence bağlamının farklılaştığını göstermektedir.
Plasmid filogenisi
pSal22P208 ile blaLAP-2 ve blaCTX-M-55'i birlikte taşıyan 54 referans IncHI2 plasmidi kSNP v4.1 kullanılarak SNP tabanlı olarak karşılaştırılmıştır.
Altı referans plasmid pSal22P208'den 30 SNP'den daha az farklıdır. Yakın plasmidler arasında tavuk ilişkili Salmonella Muenster ve Salmonella Schwarzengrund, sığır ilişkili E. coli, insan ilişkili Kanada E. coli, dana eti kaynaklı ABD E. coli ve tavuk ilişkili Vietnam Salmonella Kentucky plasmidleri bulunmaktadır.
Bu dağılım yakın IncHI2 plasmidlerinin farklı bakteriyel tür, konak, gıda/klinik kaynak ve coğrafyalarda bulunabildiğini göstermektedir. Filogenetik yakınlık, belirli iki izolata ait doğrudan aktarım olayını kendi başına kanıtlamaz.
İzolatların kromozomal filogenisi
Sal22P208, 41 S. Havana genomu arasında analiz edildiğinde Birleşik Krallık'taki klinik GCA_007343335.1 genomuna en yakın konumda bulunmuş ve ikisi arasında 30'dan az kromozomal SNP saptanmıştır.
Sal22C150 ise 60 S. Agona genomunun karşılaştırmasında Avustralya kaynaklı GCA_012169275.1 ile 50'den az SNP uzaklığında bulunmuş ve Tayvan'dan birkaç yakın izolatla aynı kompakt grupta yer almıştır.
Bu benzerlikler farklı coğrafyalardaki genomlar arasında yakın genetik ilişkileri gösterir; kaynak çalışma bunları doğrudan epidemiyolojik bulaşma zinciri olarak doğrulamamıştır.
Kromozomal MDR Bölgesi Plasmid Direncinden Neden Farklı Bir Yol Oluşturuyor?
Plasmid üzerindeki direnç determinantları konjugasyon yoluyla yatay olarak başka bakterilere taşınabilirken kromozoma entegre olmuş bir MDR bölgesi, belirli bir plasmidin korunmasına bağımlı olmadan hücre bölünmesi sırasında dikey olarak aktarılabilir; Sal22P208'de aynı anda hem konjugatif IncHI2 plasmidinin hem de ayrı bir kromozomal MDR eklenmesinin bulunması, direnç birikimi için birbirini tamamlayan iki genetik yolun aynı bakteride birleşebildiğini göstermektedir.
Sal22P208 kromozomal MDR bölgesi
Büyük MDR bölgesi kromozomda rpmJ ile rpmE arasına yerleşmiştir ve karşılaştırma amacıyla kullanılan S. Agona SL483'ün eşdeğer bölgesinde bulunmamaktadır. Sınırlar Tn3 ailesi elemanlarıyla ilişkilidir.
Bölge şu direnç determinantlarını içermektedir:
- tet(A),
- floR,
- aac(6′)-Ib-cr,
- arr-3,
- dfrA27,
- aadA16,
- qnrB6,
- qacEΔ1,
- sul1.
Bunlara arsenik direnci gen kümesi ile ISVsa3, IS26, ISCR1 ve IS6100 gibi mobil genetik elemanlar eşlik etmektedir. İki adet qacEΔ1–sul1 segmenti ve sınıf 1 integron ilişkili bileşenler de raporlanmıştır.
Citrobacter braakii LBA3 ile benzerlik
Sal22P208 kromozomal MDR bölgesi Citrobacter braakii LBA3'teki bir direnç bölgesiyle yalnız tek tek genler düzeyinde değil; Tn3 bağlantılı sınırlar, arsenik direnci lokusu, tet(A)–floR modülü ve sınıf 1 integron–ISCR1 ilişkili gen düzeni bakımından da kapsamlı benzerlik göstermektedir.
Bu yapıların ortak bir mobil direnç mimarisinden türemiş olabileceği düşünülmektedir. Bununla birlikte dizi ve gen sırası benzerliği aktarımın hangi yönde gerçekleştiğini, ne zaman oluştuğunu veya Salmonella ile Citrobacter arasında doğrudan transfer bulunduğunu göstermez. Ortak bir rezervuar veya ortak atasal mobil element de olası açıklamalar arasındadır.
Çalışmanın Yöntemi ve Bulguları
Salmonella izolasyonu ve tanımlama
İzolatlar Şanghay'da rutin gıda kaynaklı patojen sürveyansı kapsamında perakende tavuk ve domuz eti örneklerinden elde edilmiştir. İzolasyon ISO 6579-1:2017 temel alınarak küçük modifikasyonlarla yapılmıştır.
Gıda örnekleri buffered peptone water içinde ön zenginleştirmeye, ardından tetrathionate broth içinde seçici zenginleştirmeye alınmış; kültürler xylose lysine tergitol 4 agara ekilmiştir. Şüpheli Salmonella kolonileri triple sugar iron agar, üreaz ve lizin dekarboksilaz testleriyle doğrulanmıştır.
Serovarlar ticari O ve H antiserumlarıyla slide agglutination ve genomik veriden SeqSero2 v1.3.2 ile doğrulanmıştır. Sequence type ataması yedi lokuslu Salmonella MLST şemasına göre yapılmıştır.
Antimikrobiyal duyarlılık testi
Sulfisoksazol, nalidiksik asit, ofloksasin, siprofloksasin, ampisilin, sefotaksim, sefepim, kloramfenikol, streptomisin, gentamisin, amikasin, kanamisin, rifampisin, azitromisin, fosfomisin, tetrasiklin ve meropenem için MIC agar dilüsyon yöntemiyle belirlenmiştir.
Tigesiklin ve kolistin için broth microdilution kullanılmıştır. Sonuçlar CLSI M100 34. baskı (2024) eşiklerine göre yorumlanmış ve kalite kontrol suşu olarak E. coli ATCC 25922 kullanılmıştır.
En az üç antimikrobiyal kategoride bir veya daha fazla ajana duyarlı olmayan izolatlar MDR olarak sınıflandırılmıştır.
Tüm genom dizileme ve biyoinformatik
Sal22C150 ve Sal22P208 genomik DNA'sı TIANamp Bacteria DNA Kit ile çıkarılmıştır. Sal22C150 yalnız Illumina HiSeq X10 ile kısa okuma olarak dizilenmiştir. Sal22P208 için Illumina HiSeq X10'a ek olarak PacBio RS II uzun okuma verisi üretilmiştir.
Illumina okumaları fastp v1.3.6 ile filtrelenmiş, Sal22P208 için Illumina + PacBio hibrit montajı Unicycler v0.5.1 ile gerçekleştirilmiştir. Montaj kalitesi QUAST v5.3.0 ile değerlendirilmiştir.
Direnç genleri ResFinder v4.7.2, plasmid replikonları PlasmidFinder v3.0.3 ile belirlenmiştir. Mobil genetik elementler ISfinder, konjugasyonla ilişkili bölgeler oriTfinder2 v2.0 ile analiz edilmiştir.
Konjugasyon ve PCR doğrulaması
| Parametre | Kaynak değeri |
|---|---|
| Donorlar | Sal22C150 ve Sal22P208 |
| Alıcı | Rifampisine dirençli E. coli J53 |
| Donor:alıcı oranı | 3:1 |
| Ortam | Antimikrobiyal içermeyen LB broth |
| İnkübasyon | 37 °C, 18 saat |
| Seçim ortamı | 100 µg/mL rifampisin + 2 µg/mL sefotaksim içeren LB agar |
| PCR hedefleri | IncHI2 replikonu, blaLAP-2, blaCTX-M-55 |
| PCR hacmi | 50 µL |
| Annealing sıcaklığı | 55 °C |
| Beklenen ampliconlar | Yaklaşık 748 bp, 478 bp ve 971 bp |
Plasmid korunum deneyi
Her donordan elde edilen bir PCR-doğrulanmış transkonjugant antimikrobiyal içermeyen LB'de 20 pasaj boyunca seri olarak aktarılmıştır. Belirlenmiş pasajlarda koloniler IncHI2 replikonu, blaLAP-2 ve blaCTX-M-55 açısından taranmıştır.
İncelenen 20 pasaj boyunca üç markerın da kaybı tespit edilmemiştir.
Filogenetik analiz
NCBI'den blaLAP-2 ve blaCTX-M-55'i birlikte taşıyan IncHI2 plasmidleri toplanmış ve filtreleme sonrasında pSal22P208 ile 54 referans plasmid kSNP v4.1 kullanılarak SNP tabanlı filogenetik ve ikili SNP mesafesi analizine alınmıştır.
Ayrıca iki serovar için ayrı kromozomal analizler gerçekleştirilmiş; 41 S. Havana ve 60 S. Agona genomu kullanılmıştır. Ağaçlar iTOL v7.6 ile görselleştirilmiş ve anotasyon yapılmıştır.
Karşılaştırmalı genomik
Tam plasmid karşılaştırmaları BRIG v0.95 ile, belirli direnç bölgelerinin doğrusal karşılaştırmaları Easyfig v2.1 ile yapılmıştır.
pSal22P208'in MDR ve cıva direnci bölgeleri ilgili plasmidlerle karşılaştırılmıştır. Kromozomal rpmJ–rpmE bölgesi ise direnç eklenmesini taşımayan S. Agona SL483 ile yapısal olarak benzer direnç bölgesine sahip C. braakii LBA3'e karşı karşılaştırılmıştır.
İstatistiksel analiz
Konjugasyon deneyleri üç bağımsız biyolojik tekrarla gerçekleştirilmiştir. Konjugasyon frekansları ortalama ± standart sapma olarak verilmiş, log10 dönüşümü uygulanmış ve iki kuyruklu Welch t-testi kullanılmıştır. Anlamlılık sınırı p < 0,05'tir.
Plasmid retention oranları yüzde olarak, MIC ve genomik özellikler ise betimleyici biçimde özetlenmiştir.
Kaynak Şekil 1–5'in bilimsel rolü
Şekil 1: pSal22P208'in ilişkili IncHI2 plasmidleriyle dairesel genom karşılaştırmasını gösterir. Korunmuş plasmid omurgası ile değişken aksesuar bölgeleri birbirinden ayırır.
Şekil 2: pSal22P208'in MDR ve cıva direnci bölgelerini benzer plasmidlerle doğrusal karşılaştırır. Direnç genlerinin tek bir statik kasetten ziyade mobil elementlerle çevrili mozaik modüller halinde düzenlendiğini gösterir.
Şekil 3: pSal22P208 ve 54 ilgili IncHI2 plasmidinin SNP tabanlı filogenetik ilişkisini gösterir. Aynı yakın plasmid soyunun farklı bakteri, konak, kaynak ve coğrafyalarda bulunabildiğini ortaya koyar.
Şekil 4: Sal22P208 ve Sal22C150'yi kendi serovarlarına ait küresel genomlarla karşılaştırır. İzolatların coğrafi olarak uzak kaynaklarla dahi yakın genomik ilişkiler gösterebildiğini ortaya koyar.
Şekil 5: Sal22P208 kromozomundaki rpmJ–rpmE MDR eklenmesini, direnç eklenmesini taşımayan referans Salmonella bölgesi ve benzer yapıyı taşıyan C. braakii LBA3 ile karşılaştırır.
Çalışmanın desteklediği sonuçlar
- İncelenen Sal22C150 ve Sal22P208 izolatları çoklu ilaç dirençlidir.
- Her iki izolatın IncHI2 ile ilişkili blaLAP-2 ve blaCTX-M-55 determinantları E. coli J53'e birlikte aktarılabilmiştir.
- Sal22C150 kaynaklı elementin ölçülen konjugasyon frekansı Sal22P208 kaynaklı elementten daha yüksektir.
- Aktarılan IncHI2 replikonu, blaLAP-2 ve blaCTX-M-55 seçici antibiyotik olmadan 20 pasaj boyunca saptanmıştır.
- pSal22P208, 275.096 bp'lik konjugatif IncHI2 plasmididir ve 15 antimikrobiyal direnç determinantı ile cıva/tellüryum direnci lokusları taşır.
- pSal22P208'in aksesuar direnç bölgesi mobil elementlerle ilişkili mozaik bir organizasyona sahiptir.
- pSal22P208'e çok yakın IncHI2 plasmidleri farklı Salmonella serovarlarında ve E. coli'de; hayvan, gıda ve insan kaynaklarında bulunmaktadır.
- Sal22P208 ayrıca plasmidden bağımsız, geniş bir kromozomal MDR eklenmesi taşımaktadır.
- Kromozomal MDR bölgesi Citrobacter braakii LBA3'teki bir yapıyla kapsamlı yapısal benzerlik göstermektedir.
Çalışmanın desteklemediği sonuçlar
- Bu iki izolat IncHI2–blaLAP-2–blaCTX-M-55 platformlarının Çin'deki veya küresel Salmonella prevalansını belirlemez.
- Sal22C150'de iki β-laktamaz geninin pSal22P208'e özdeş tek kapalı plasmid üzerinde olduğu doğrudan gösterilmemiştir.
- 20 pasajlık korunum uzun dönem doğal-ekosistem plasmid kalıcılığını kanıtlamaz.
- Yakın plasmidler arasındaki düşük SNP mesafesi belirli bir doğrudan bulaşma zincirini veya transfer yönünü kanıtlamaz.
- Sal22P208 ve Citrobacter braakii LBA3 arasındaki kromozomal MDR bölgesi benzerliği iki tür arasında doğrudan transfer gerçekleştiğini kanıtlamaz.
- Antibiyotik ve ağır metal direnci genlerinin aynı plasmidde bulunması gerçek çevresel metal maruziyetinin antibiyotik direncini seçtiğini doğrudan göstermez.
- Direnç geninin bulunması yeni konakta mutlaka aynı büyüklükte fenotipik MIC artışı oluşturduğu anlamına gelmez.
Temel yöntemsel sınırlılıklar
Çalışmanın en belirgin sınırlılığı yalnız iki gıda kaynaklı izolatın incelenmiş olmasıdır. Bu örneklem epidemiyolojik prevalans veya popülasyon dağılımı tahmini yapmak için yeterli değildir.
İkinci önemli sınır, iki izolat için dizileme çözünürlüğünün farklı olmasıdır. Sal22P208 kapalı plasmid düzeyinde çözülmüşken Sal22C150 taslak kısa-okuma montajı olarak kalmıştır. Dolayısıyla iki izolatın IncHI2 bölgelerinin tam yapısal eşdeğerliği belirlenmemiştir.
Plasmid korunum deneyi laboratuvar koşullarında yalnız 20 pasajı kapsamaktadır. Farklı konak türleri, sıcaklıklar, gıda zinciri ortamları veya uzun dönem seçilim koşulları test edilmemiştir.
Konjugasyon E. coli J53 alıcısıyla laboratuvar ortamında gerçekleştirilmiştir. Gerçek gıda matrisi, bağırsak ekosistemi veya çevresel mikrobiyota içindeki transfer frekansları bu çalışma tarafından ölçülmemiştir.
Filogenetik ve yapısal karşılaştırmalar güçlü genomik ilişki kanıtı sağlamakla birlikte aktarım olaylarının tarihini veya yönünü tek başına çözemez.
Kaynak ve Yöntem Notu
Özgün çalışma: Transferable IncHI2-Associated blaLAP-2 and blaCTX-M-55 Resistance Platforms in Foodborne Salmonella.
Yazarlar: Zeqiang Zhan; Shaoping Zhang; Bingguo Wei; Yurui Zheng; Xingrui Li; Qiqi Lin; Jiang Chang; Shoukui He; Hongwu Wang.
Sorumlu yazarlar: Shoukui He ve Hongwu Wang.
Kurumlar: School of Food and Pharmaceutical Engineering, Zhaoqing University; Laboratory of Quality and Safety Risk Assessment for Agro-Products (Zhaoqing), Ministry of Agriculture and Rural Affairs; Guangdong Engineering Technology Research Center of Food and Agricultural Product Safety Analysis and Testing; Key Laboratory of Systems Health Science of Zhejiang Province, Hangzhou Institute for Advanced Study, University of Chinese Academy of Sciences; MOST-USDA Joint Research Center for Food Safety, Shanghai Jiao Tong University.
Dergi ve yayın kimliği: Foods, 2026, Cilt 15, Sayı 17, Makale 3130. Yayınevi: MDPI. DOI: 10.3390/foods15173130.
Yayın süreci: Alınma 8 Ağustos 2026; revizyon 27 Ağustos 2026; kabul 30 Ağustos 2026; yayın 3 Eylül 2026.
Kaynak türü: Hakemli, açık erişimli orijinal araştırma makalesidir. Laboratuvar konjugasyonu, antimikrobiyal duyarlılık, tüm genom dizileme ve karşılaştırmalı genomik yöntemlerini birleştirir.
Lisans: Creative Commons Attribution (CC BY).
Temel örneklem: Şanghay'da 2022 yılında perakende tavuk etinden elde edilen S. Agona ST13 Sal22C150 ve perakende domuz etinden elde edilen S. Havana ST1527 Sal22P208.
Temel yöntemler: ISO 6579-1:2017 tabanlı Salmonella izolasyonu; serolojik ve SeqSero2 serotiplendirme; MLST; CLSI tabanlı MIC ölçümü; Illumina HiSeq X10; PacBio RS II; fastp; Unicycler; QUAST; ResFinder; PlasmidFinder; ISfinder; oriTfinder2; broth-mating konjugasyonu; PCR; 20 pasajlık plasmid marker korunum analizi; kSNP; iTOL; BRIG ve Easyfig.
İstatistik: Konjugasyon deneylerinde üç bağımsız biyolojik tekrar; ortalama ± standart sapma; log10 dönüşümü; iki kuyruklu Welch t-testi; p < 0,05.
Genomik veri erişimi: Sal22C150 taslak genomu NCBI BioProject PRJNA1518757; Sal22P208 tamamlanmış genomu NCBI BioProject PRJNA1518769.
Finansman: National Natural Science Foundation of China No. 32402222; Natural Science Foundation of Guangdong Province No. 2023A1515110754; Department of Education of Guangdong Province Science Project No. 2024KSYS007; Zhaoqing University Science Projects No. GCC202603 ve SD202401; Young Innovative Talents Project of the Department of Education of Guangdong Province No. 2024KQNCX022.
Etik kurul: Uygulanabilir değildir.
Bilgilendirilmiş onam: Uygulanabilir değildir.
Çıkar çatışması: Yazarlar çıkar çatışması bildirmemiştir.
Yapay zekâ kullanım beyanı: Yazarlar makale hazırlanırken DeepSeek-R1'i dilbilgisi hatalarını kontrol etmek amacıyla kullandıklarını; çıktıyı kendilerinin gözden geçirip düzenlediğini ve nihai metnin sorumluluğunu üstlendiklerini bildirmiştir.
Yazar katkıları: Zeqiang Zhan: kavramsallaştırma, yöntem, araştırma, veri düzenleme, biçimsel analiz, görselleştirme ve ilk taslak; Shaoping Zhang: yöntem, araştırma ve veri düzenleme; Bingguo Wei: araştırma, biçimsel analiz ve doğrulama; Yurui Zheng: araştırma ve veri düzenleme; Xingrui Li: yöntem, araştırma ve görselleştirme; Qiqi Lin ve Jiang Chang: biçimsel analiz, doğrulama ve gözden geçirme/düzenleme; Shoukui He: kavramsallaştırma, gözetim, doğrulama ve gözden geçirme/düzenleme; Hongwu Wang: kavramsallaştırma, proje yönetimi, gözetim, finansman ve gözden geçirme/düzenleme.
Bilimsel yorum sınırı
Bu araştırmanın güçlü yönü direnç genlerini yalnız var/yok biçiminde raporlamak yerine konjugatif aktarım, kısa dönem aktarım-sonrası korunum, kapalı plasmid montajı, aksesuar bölge mimarisi, plasmid filogenisi ve kromozomal MDR eklenmesini aynı çalışmada bir araya getirmesidir. Bununla birlikte yalnız iki izolat incelendiğinden bulgular prevalans çalışması olarak okunmamalı; özellikle Sal22C150 için fiziksel plasmid mimarisi tamamlanmış uzun-okuma montajıyla ayrıca doğrulanmalıdır.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir