


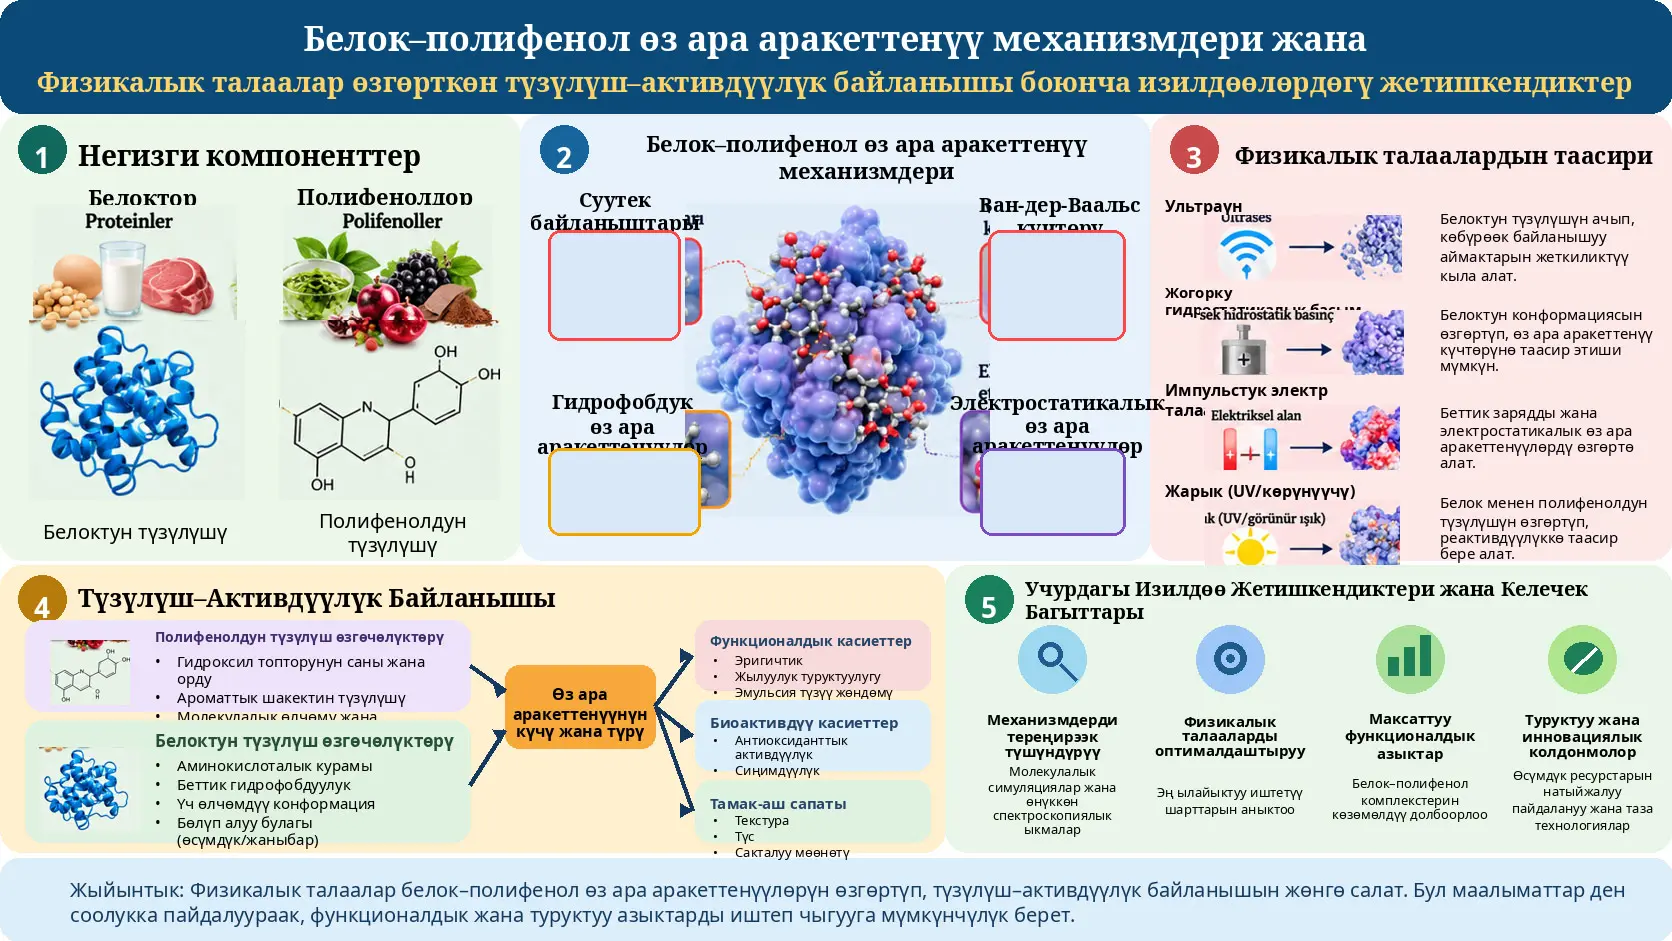
Белок–полифенол комплекстери — белок молекулалары менен полифенолдор коваленттик же коваленттик эмес өз ара аракеттенүүлөр аркылуу түзгөн молекулалык системалар. Бул системалар белоктор менен полифенолдор өз-өзүнчө көрсөткөн физика-химиялык касиеттерди өзгөртө алат. Xiangjun Hu жана анын кесиптештери даярдаган илимий сереп ультраүн, жогорку басымдагы гомогенизация, динамикалык жогорку басымдагы микрофлюидизация, импульстук электр талаасы, микротолкун жана муздак плазма сыяктуу физикалык технологиялар белок–полифенол өз ара аракеттенүүлөрүн кандайча өзгөртөрүн талдайт.
Изилдөөнүн борборундагы илимий маселе — табигый белоктордун тыгыз бүктөлгөн түзүлүшү полифенолдордун байланышын чектеши жана эркин полифенолдор кычкылтекке, температурага, жарыкка жана сиңирүү шарттарына карата туруксуз болушу мүмкүн экендиги. Физикалык иштетүүлөр белоктордун мейкиндик түзүлүшүн өзгөртүп, мурда молекуланын ичинде жашырын болгон гидрофобдук аймактарды жана реактивдүү функционалдык топторду ачып чыгара алат. Айрым физикалык иштетүүлөр полифенолдордун кычкылданышын жана белоктор менен коваленттик байланыш түзүшүн да колдоого алат.
Серепте каралган изилдөөлөр ылайыктуу физикалык иштетүү шарттарында эригичтик, эмульсиянын туруктуулугу, көбүк түзүү, гелдин касиеттери, антиоксиданттык активдүүлүк жана азык-түлүк таңгактарынын көрсөткүчтөрү жакшырганы билдирилгенин көрсөтөт. Мисалы, серепке киргизилген изилдөөлөрдүн биринде кара куурай үрөнүнүн белогу–хлороген кислотасы системасынын эригичтиги ультраүн иштетүүдөн кийин %38,7 өскөн; башка бир изилдөөдө күрүч кебегинин белогу–хлороген кислотасы системасында %68 эригичтик билдирилген. Бул эки маани ар башка тажрыйбаларга тиешелүү жана бирдей баштапкы шартты билдирбейт.
Серептин негизги жыйынтыгы — физикалык иштетүүлөр белок–полифенол комплекстерин жакшыртуу үчүн маанилүү мүмкүнчүлүктөрдү берет. Бирок иштетүүнүн интенсивдүүлүгү, узактыгы, белоктун түрү, полифенолдун түзүлүшү жана азык чөйрөсү натыйжаларды өзгөртө алат. Өтө күчтүү иштетүү белоктордун кааланбаган агрегаттанышын же кычкылдануу өзгөрүүлөрүн жаратышы мүмкүн. Мындан тышкары лабораторияда өлчөнгөн антиоксиданттык активдүүлүк, сиңирүү моделинин натыйжалары же антимикробдук касиеттер адамдарда далилденген ден соолукка пайдалуу таасирлерге барабар эмес.
1. Белоктор менен полифенолдор эмне үчүн бирге изилденет?
Белоктор — аминокислоталардын пептиддик байланыштар аркылуу бири-бирине байланышынын натыйжасында түзүлгөн биологиялык макромолекулалар. Алар азык-түлүктө азыктык баалуулукту гана камсыз кылбастан, эмульсия түзүү, көбүктүн туруктуулугун камсыз кылуу, гел түзүү, сууну байлоо жана консистенция түзүү сыяктуу технологиялык функцияларды да аткарат.
Полифенолдор болсо түзүлүшүндө бир нече фенолдук өзгөчөлүгү бар жана ар түрдүү өсүмдүк булактарында кездешкен кошулмалардын кеңири тобу. Катехиндер, флавоноиддер, антоцианиндер, хлороген кислотасы, рутин жана эпигаллокатехин галлат бул изилдөө тармагында көп кездешүүчү мисалдар.
Серепте полифенолдордун антиоксиданттык касиеттери баса белгиленет. Бирок азык өндүрүү жана сактоо учурунда полифенолдор туш болгон кычкылтек, температура, жарык жана pH өзгөрүүлөрү алардын химиялык туруктуулугун төмөндөтүшү мүмкүн. Сиңирүү шарттары да айрым полифенолдордун жеткиликтүүлүгүн чектеши мүмкүн.
Белоктор өз алдынча да ар дайым каалаган өнөр жайлык көрсөткүчтөрдү бере бербейт. Белоктордун табигый бүктөлгөн түзүлүшү айрым байланышуу участокторунун молекуланын ичинде жашырын калышына алып келиши мүмкүн. Белоктордун өз ара чоң агрегаттарды түзүшү да полифенолдордун байланышуу участокторуна жетүүсүн азайтышы мүмкүн.
Бул эки маселени чогуу кароо белок–полифенол комплекстерин өнүктүрүүгө алып келген. Белок полифенол үчүн ташуучу же коргоочу түзүлүштү түзө алат; полифенол болсо белоктун интерфейстик, антиоксиданттык же тор түзүүчү касиеттерин өзгөртө алат.
Маанилүү айырма: Белок менен полифенолду бир эле эритмеге кошуу сөзсүз күчтүү жана туруктуу комплекс түзүлдү дегенди билдирбейт. Өз ара аракеттенүүнүн түрү жана байланышуу шарттары ылайыктуу ыкмалар менен ырасталышы керек.
2. Белок түзүлүшүнүн төрт деңгээли
Белок–полифенол өз ара аракеттенүүлөрүн түшүнүү үчүн белок түзүлүшүнүн төрт деңгээлин бири-биринен айырмалоо зарыл.
| Түзүлүш деңгээли | Илимий мааниси | Өз ара аракеттенүү үчүн мааниси |
|---|---|---|
| Биринчи түзүлүш | Белок чынжырындагы аминокислоталардын ирети. | Байланышууга катыша ала турган аминокислоталардын каптал топторунун химиялык табиятын аныктайт. |
| Экинчи түзүлүш | Альфа-спираль, бета-катмар, бета-бурулуш жана тартипсиз чынжыр аймактары. | Бүктөлүү тартибинин өзгөрүшү мурда жашырын болгон аймактардын жеткиликтүүлүгүнө таасир этиши мүмкүн. |
| Үчүнчү түзүлүш | Бир полипептид чынжырынын үч өлчөмдүү бүктөлгөн формасы. | Гидрофобдук өзөктүн, ароматтык калдыктардын жана реактивдүү топтордун жайгашуусун аныктайт. |
| Төртүнчү түзүлүш | Бир нече белок суббирдиги бирге түзгөн уюшуу. | Суббирдиктердин ажырашы же кайра биригиши бөлүкчө өлчөмүнө жана комплекстин туруктуулугуна таасир этиши мүмкүн. |
2.1. Альфа-спираль, бета-катмар жана тартипсиз чынжыр деген эмне?
Альфа-спираль (α-helix) — полипептид чынжыры тартиптүү спираль түрүндө бүктөлгөн экинчи түзүлүштүн бир түрү. Түзүлүштү сактоодо пептиддик каркастагы суутек байланыштары маанилүү.
Бета-катмар (β-sheet) — полипептид чынжырынын созулган бөлүктөрү бири-бири менен суутек байланыштарын түзүп, тартиптүү катмар пайда кылган түзүлүш.
Бета-бурулуш (β-turn) — чынжыр багытын өзгөрткөн кыска түзүлүш элементи.
Тартипсиз чынжыр (random coil же unordered structure) — альфа-спираль жана бета-катмар сыяктуу тартиптүү экинчи түзүлүш классына кирбеген чынжыр аймактарын билдирет. Бул термин белок чынжыры толугу менен кокустук кыймылдайт дегенди билдирбейт.
Физикалык иштетүүлөр бул түзүлүштөрдүн үлүштөрүн өзгөртө алат. Мисалы, бир изилдөөдө альфа-спиралдын үлүшү азайып, тартипсиз чынжырдын үлүшү өсүшү мүмкүн. Мындай өзгөрүү полипептид чынжыры мурдагы конформациясынан алыстаганын көрсөтөт.
Бирок бардык белоктордо бирдей өзгөрүү күтүлбөшү керек. Серепте айрым иштетүүлөр альфа-спиралдын азайышы менен, башкалары болсо альфа-спиралдын бета-катмарга өтүшү менен байланышкан.
2.2. Беттик гидрофобдуулук жана эркин тиол топтору
Гидрофобдук аймактар — суу менен өз ара аракеттенүүсү салыштырмалуу жагымсыз болгон аминокислоталардын каптал топтору көбүрөөк топтолгон аймактар. Көптөгөн белоктордо бул аймактардын маанилүү бөлүгү бүктөлгөн түзүлүштүн ичинде жайгашат.
Физикалык иштетүүнүн натыйжасында белок жарым-жартылай ачылса, бул аймактар эриткич менен байланышта болушу мүмкүн. Ошентип, полифенолдордун ароматтык түзүлүштөрү менен гидрофобдук өз ара аракеттенүүлөрдүн түзүлүшү жеңилдеши мүмкүн.
Булакта беттик гидрофобдуулук үчүн H0 белгиси колдонулат. Бул чоңдук тандалган эксперименттик ыкмага жараша белок бетиндеги гидрофобдук касиеттерди баалоодо колдонулат. H0 маанисинин жогорулашы тиешелүү өлчөө шарттарында гидрофобдук аймактар көбүрөөк ачылганын көрсөтүшү мүмкүн.
Дагы бир маанилүү түзүлүш эркин тиол тобу (–SH) деп аталат. Бул топ айрыкча цистеин аминокислотасы менен байланыштуу. Цистеинден келип чыккан эки күкүрт тобунун ортосунда дисульфиддик байланыш (–S–S–) түзүлүшү мүмкүн.
Физикалык иштетүү учурунда белок түзүлүшүнүн ачылышы эркин тиол топторун жеткиликтүү кылышы мүмкүн. Кычкылданган полифенолдордогу ылайыктуу реактивдүү участоктор менен бул топтордун өз ара аракеттенүүсү коваленттик байланышууга салым кошо алат.
Ошол эле учурда эркин тиол көлөмүнүн ар кандай көбөйүшү же азайышы өзүнчө белгилүү бир реакциянын так далили эмес. Дисульфиддик байланыштардын өзгөрүшү, кычкылдануу жана башка кошумча реакциялар да өлчөө натыйжасына таасир этиши мүмкүн.
3. Физикалык талаалар белоктун түзүлүшүн кантип өзгөртөт?
Бул серепте физикалык талаалар менен модификациялоо деген түшүнүк тыштан берилген физикалык энергия же физикалык иштетүү таасири аркылуу белоктун конформациясын жана функционалдык касиеттерин өзгөртүү маанисинде колдонулат.
Ар башка технологиялар ар башка таасир берет. Ультраүн акустикалык кавитацияны, гомогенизация механикалык кесүүнү жана басымдын өзгөрүшүн, импульстук электр талаасы электрдик таасирлерди, микротолкун электромагниттик энергия менен ысытууну, ал эми муздак плазма электр разрядынан пайда болгон реактивдүү түрлөрдү колдонот.
3.1. Ультраүн: Акустикалык кавитациянын таасири
Ультраүн адамдын угуу чегинен жогору жыштыктарда механикалык үн толкундарын колдонууга негизделет. Суюк чөйрөдө ультраүндүн маанилүү таасирлеринин бири акустикалык кавитация деп аталат.
Кавитация учурунда суюктуктун ичинде майда газ же буу көбүкчөлөрү пайда болуп, чоңоюп жана айрым шарттарда катуу кыйрашы мүмкүн. Бул көрүнүш кыска мөөнөттүү жергиликтүү басым жана температура өзгөрүүлөрүн, микроагымдарды жана кесүү күчтөрүн жаратышы мүмкүн.
Белок эритмелеринде бул таасирлер чоң агрегаттардын ыдырашына, полипептид чынжырынын жарым-жартылай ачылышына жана мурда жашырын болгон байланышуу участокторунун жеткиликтүү болушуна көмөктөшүшү мүмкүн.
Ультраүндүн экинчи таасири химиялык. Кавитациядан пайда болгон жергиликтүү энергиянын топтолушу суу молекулаларынан реактивдүү радикал түрлөрдүн пайда болушуна салым кошо алат. Бул түрлөр айрым полифенолдордун кычкылданышына жана ылайыктуу шарттарда коваленттик байланышууга ортомчу болушу мүмкүн.
Бирок ультраүндүн жогорку кубаттуулугу ар дайым жакшы натыйжа бербейт. Булактагы технологияларды салыштырууга ылайык, жогорку кубат тыгыздыгында жергиликтүү ысып кетүү жана кааланбаган белок агрегаттануусу болушу мүмкүн. Чоң көлөмдөгү реакторлордо кавитациянын бирдей бөлүштүрүлбөшү өнөр жайлык масштабга өткөрүүнү да кыйындатат.
3.2. Жогорку басымдагы гомогенизация
Жогорку басымдагы гомогенизация (High-Pressure Homogenization, HPH) — агымдуу системаны жогорку басым астында тар өтмөк же гомогенизация зонасы аркылуу өткөрүү менен күчтүү кесүү жана агым таасирлерин түзгөн иштетүү.
Бул иштетүү белок агрегаттарын майдалап, бөлүкчө өлчөмүн азайтышы мүмкүн. Ошентип белок эритмесинин бөлүштүрүлүшү бир тектүүрөөк болушу мүмкүн.
Серепте берилген бир изилдөөдө чочконун миофибриллярдык белокторунун орточо бөлүкчө өлчөмү жогорку басымдагы гомогенизациядан кийин 886 nm'ден 172 nm'ye төмөндөгөн.
Нанометр (nm) — метрдин миллиарддан бир бөлүгү. Бөлүкчө өлчөмүнүн азайышы белок топторунун майда түзүлүштөргө бөлүнгөнүн көрсөтүшү мүмкүн; бирок бул өзүнчө полифенол байланышуу натыйжалуулугун далилдебейт.
HPH үзгүлтүксүз иштетүүгө ылайыктуулугу жана азык-түлүк өнөр жайындагы калыптанган колдонмолору жагынан артыкчылыкка ээ. Ошол эле учурда жогорку инвестициялык чыгым, иштетүү учурунда температуранын көтөрүлүшү жана насос менен айдалуучу суюктуктар менен иштөө зарылдыгы чектөө болуп саналат.
3.3. Динамикалык жогорку басымдагы микрофлюидизация
Dynamic High-Pressure Microfluidization (DHPM) — күчтүү басым төмөндөөлөрү жана механикалык кесүү таасирлери аркылуу бөлүкчөлөрдүн жана белок агрегаттарынын түзүлүшүн өзгөрткөн технология.
Серепте сулу белогунун изоляты мындай иштетүүдөн кийин гидратацияланган бөлүкчө өлчөмүндө %70,96 азайуу, ал эми зета-потенциалдын абсолюттук маанисинде %33,51 өсүү көрсөтүлгөн изилдөө мисалы келтирилет.
Зета-потенциал — бөлүкчөнүн суюктуктагы электрокинетикалык беттик касиеттери менен байланышкан өлчөнүүчү потенциал. Анын абсолюттук маанисинин өсүшү айрым системаларда бөлүкчөлөр арасындагы электростатикалык түртүлүүнүн күчөшүнө жана дисперсия туруктуулугунун өзгөрүшүнө ишара кылышы мүмкүн.
Бирок жогорку абсолюттук зета-потенциал бардык азык системаларында өзүнчө туруктуулуктун кепилдиги эмес. Чөйрөнүн иондук күчү, pH мааниси жана башка өз ара аракеттенүүлөр да маанилүү.
Серепте Perilla frutescens белокторун 120 MPa басымда DHPM менен иштетүү мисалы да берилет. Бул шартта белок конформациясынын ачылышы жана эркин тиол топторунун жеткиликтүү болушу талкууланган. Мегапаскаль (MPa) — басым бирдиги; 1 MPa бир миллион паскалга барабар.
3.4. Импульстук электр талаасы
Импульстук электр талаасы (Pulsed Electric Field, PEF) — кыска мөөнөттүү жогорку электр талаасынын импульстарын материалга колдонууга негизделген иштетүү.
Белоктор электр заряддарына жана диполдук касиеттерге ээ функционалдык топторду камтыйт. Электр талаасы бул топтордун жергиликтүү заряд бөлүштүрүлүшүн жана өз ара аракеттенүүлөрүн өзгөртө алат.
Серепте PEF иштетүүлөрү белок бетинин гидрофобдуулугун жана ароматтык аминокислоталардын микрочөйрөсүн өзгөртө алары айтылат. Буурчак белогу менен эпигаллокатехин галлаттын ортосундагы байланышуу участокторунун көбөйүшүнө байланыштуу изилдөө да талкууланган.
PEF натыйжалуулугу чөйрөнүн электр өткөрүмдүүлүгүнө, электрод геометриясына жана иштетүү шарттарына көз каранды. Технология өзгөчө суюк системалар үчүн ылайыктуу. Бирок PEF ар дайым толугу менен жылуулуксуз деп эсептелбеши керек; электр энергиясынын жылуулукка айланышы да бааланууга тийиш.
3.5. Микротолкун
Микротолкун менен иштетүү электромагниттик энергиянын материалдын ичинде жылуулукка айланышын колдонот. Энергиянын көлөм боюнча бөлүштүрүлүшү салттуу беттен ысытуудан айырмаланышы мүмкүн.
Серепте кыска мөөнөттүү микротолкун иштетүүлөрү айрым белоктордун тыгыз түзүлүшүн ача алары жана агрегаттануу жүрүмүн өзгөртө алары айтылат. Кычкылданган соя белогунда 30 секунддан кыска иштетүүлөрдүн мисалдары бар.
Бирок микротолкун таасири пайдалуу белок ачылышы менен гана чектелбейт. Тыгыз азык матрицаларында энергиянын бирдей эмес бөлүштүрүлүшү, ысык чекиттер жана кааланбаган жылуулук өзгөрүүлөрү болушу мүмкүн. Ошондуктан кубат, температура, убакыт жана материалдын касиеттери бирге бааланышы керек.
3.6. Муздак плазма
Муздак плазма (Cold Plasma, CP) — электр разряды менен түзүлүп, электрондорду, иондорду, козголгон бөлүкчөлөрдү жана реактивдүү химиялык түрлөрдү камтышы мүмкүн болгон чөйрө.
Муздак плазмада электрондордун энергиясы жогору болушу мүмкүн, ал эми газдын жалпы температурасы айрым системаларда салыштырмалуу төмөн кармалышы мүмкүн. Бирок иштетүү шарттары жана температура бардык плазма системаларында бирдей эмес.
Плазма чөйрөсүндө реактивдүү кычкылтек түрлөрү (Reactive Oxygen Species, ROS) жана реактивдүү азот түрлөрү (Reactive Nitrogen Species, RNS) пайда болушу мүмкүн.
Бул түрлөр белок бетинин химиялык касиеттерин өзгөртүп, полифенолдорду кычкылдандырып жана белок–полифенол комплекстеринин түзүлүшүнө салым кошо алат.
Серепте бета-лактоглобулин менен эпигаллокатехин галлаттын өз ара аракеттенүүсүндө 45 секунддук муздак плазма иштетүүсү салттуу щелочтук иштетүүгө салыштырууга боло турган коваленттик байланыш натыйжалуулугун берген изилдөө каралат.
Бул жыйынтыкты бардык белокторго жана бардык полифенолдорго көчүрүү туура эмес. Реактивдүү түрлөрдүн пайда болушу газ курамына, разряд режимине, иштетүү убактысына жана материал чөйрөсүнө көз каранды.
4. Коваленттик эмес белок–полифенол байланышы
Коваленттик эмес өз ара аракеттенүүлөрдө белок менен полифенолдун ортосунда жаңы жалпы электрон жуп түзгөн түздөн-түз коваленттик байланыш болушу шарт эмес. Молекулалар бир нече алсыз же орточо күчтүү өз ара аракеттенүүлөрдүн жыйындысы менен бирге кармалышы мүмкүн.
Серепте өз ара аракеттенүүнүн төрт негизги түрү түшүндүрүлөт.
| Өз ара аракеттенүү | Негизги механизм | Белок–полифенол үчүн мааниси |
|---|---|---|
| Гидрофобдук өз ара аракеттенүү | Суу чөйрөсүндө полярсыз молекулалык беттердин биригиши термодинамикалык жактан пайдалуу болушу. | Полифенолдордун ароматтык аймактары белоктордун ачылган гидрофобдук аймактары менен өз ара аракеттениши мүмкүн. |
| Суутек байланышы | Ылайыктуу суутек байланышын берүүчү жана кабыл алуучу топтордун ортосундагы багытталган өз ара аракеттенүү. | Полифенолдогу гидроксил топтор белоктордун ылайыктуу полярдык топтору менен байланыш түзүшү мүмкүн. |
| Электростатикалык өз ара аракеттенүү | Электр заряддарынын бөлүштүрүлүшүнө байланыштуу тартылуу же түртүлүү. | Чөйрөнүн pH-ы жана иондук шарттары өз ара аракеттенүүнү өзгөртө алат. |
| van der Waals өз ара аракеттенүүлөрү | Молекулалар аралык кыска аралыктагы физикалык өз ара аракеттенүүлөр. | Көптөгөн байланыштардын бир учурда болушу комплекстин туруктуулугуна салым кошо алат. |
Коваленттик эмес байланышуу көбүнчө кайтарымдуу мүнөзгө ээ. Бирок кайтарымдуулук комплекс сөзсүз оңой ажырайт дегенди билдирбейт; байланыштын күчү жана системанын шарттары маанилүү.
Белок–Полифенол Байланышы Коваленттикпи же Коваленттик Эмеспи Кантип Аныкталат?
Байланыштын түрүн белок менен полифенолдун жөн гана аралаштырылганына карап аныктоого болбойт. Флуоресценциялык спектроскопия, термодинамикалык анализ, электрофорез, масс-спектрометрия жана түзүлүштүк өлчөөлөр чогуу бааланат. Коваленттик эмес байланышууда суутек байланыштары, гидрофобдук жана электростатикалык өз ара аракеттенүүлөр маанилүү болсо, коваленттик байланышууда кычкылданган полифенолдор менен белоктордун ылайыктуу реактивдүү топторунун ортосунда жаңы химиялык байланыштар түзүлөт. Так механизм үчүн бири-бирин толуктаган аналитикалык далилдер талап кылынат.
5. Коваленттик белок–полифенол байланышы
Коваленттик байланышууда белок менен полифенолдун ортосунда химиялык байланыш түзүлөт. Бул өз ара аракеттенүү коваленттик эмес байланышууга салыштырмалуу адатта туруктуураак.
Серепте физикалык иштетүү маалында пайда болгон кычкылдандыруучу түрлөрдүн полифенолдорду хинон же тиешелүү реактивдүү аралык продуктыларга айлантуусу маанилүү механизмдердин бири катары каралат.
Хинондор ылайыктуу химиялык шарттарда белоктордун электронго бай функционалдык топтору менен реакцияга кириши мүмкүн.
5.1. Michael кошулуу реакциясы
Michael кошулуусу — электрон жетишсиздиги бар ылайыктуу каныкпаган системага нуклеофилдик кошулуу жүрүшүн билдирет.
Белок–полифенол системасында кычкылданган полифенолдун хинон түзүлүшү электрофилдик касиет көрсөтүшү мүмкүн. Белоктогу цистеинден чыккан тиол же лизинден чыккан амин топтору ылайыктуу шарттарда нуклеофил катары аракет кыла алат.
Ошентип байланыш натыйжасында C–S же C–N түрүндөгү коваленттик байланыштар пайда болушу мүмкүн. Бул жерде C көмүртекти, S күкүрттү жана N азотту билдирет.
5.2. Schiff негизинин түзүлүшү
Schiff негизи — ылайыктуу карбонил кошулмасы менен биринчилик аминдин конденсациясынын натыйжасында түзүлүшү мүмкүн болгон, көмүртек–азот кош байланышын (C=N) камтыган түзүлүш.
Серепте кычкылданган полифенолдордун карбонил топтору менен белоктордун амин топторунун ортосунда жүрүшү мүмкүн болгон ушул механизм түшүндүрүлөт.
Michael кошулуусу менен Schiff негизинин түзүлүшү химиялык жактан бирдей реакция эмес. Ошондуктан белок менен полифенол коваленттик байланышканын гана көрсөтүү байланыш кайсы механизм менен түзүлгөнүн автоматтык түрдө аныктабайт.
5.3. Физикалык иштетүүнүн интенсивдүүлүгү байланышууга эмне үчүн таасир этиши мүмкүн?
Орточо интенсивдүүлүктөгү физикалык иштетүү белоктун жарым-жартылай ачылышы аркылуу коваленттик эмес өз ара аракеттенүүлөрдү жеңилдете алат. Кычкылдануу шарттары ылайыктуу болгон айрым системаларда реактивдүү полифенол аралык продуктыларынын пайда болушу коваленттик байланыштын күчөшүнө алып келиши мүмкүн.
Бирок бул байланыш бардык системалар үчүн так бир иштетүү интенсивдүүлүгүнүн босогосуна чейин жөнөкөйлөтүлбөйт. Физикалык талаанын түрү, энергия деңгээли, колдонуу убактысы, белок–полифенол катышы жана реакция чөйрөсү бирге таасир этет.
Сереп коваленттик жана коваленттик эмес байланыштар бир эле системада бир учурда болушу мүмкүн экенин өзгөчө баса белгилейт.
6. Белок–полифенол өз ара аракеттенүүлөрүнүн термодинамикасы
Термодинамикалык анализ молекулалык байланыштын энергия жана тартипсиздик өзгөрүүлөрү менен байланышын баалоо үчүн колдонулат.
Бул тармакта үч негизги чоңдук маанилүү:
- Gibbs эркин энергиясынын өзгөрүшү (ΔG): Белгиленген температура жана басым шарттарында процесс термодинамикалык жактан ыңгайлуубу же жокпу көрсөтөт.
- Энтальпиянын өзгөрүшү (ΔH): Байланышууга коштолгон жылуулук энергиясынын өзгөрүшү менен байланышкан термодинамикалык чоңдук.
- Энтропиянын өзгөрүшү (ΔS): Системанын термодинамикалык микроабалдары менен байланышкан өзгөрүүнү билдирет.
Булакта бул чоңдуктар байланыш механизмдерин чечмелөөдө колдонулат. Төмөнкү теңдеме изилдөөдө берилген өлчөө натыйжаларын алмаштырган жаңы эксперименттик модель эмес, термодинамикалык өзгөрмөлөрдүн ортосундагы жалпы байланышты үйрөтүүчү көрсөтмө:
\[\Delta G=\Delta H-T\Delta S\]
Бул жерде ΔG жана ΔH адатта kJ/mol, ΔS J/(mol·K) же kJ/(mol·K), ал эми T kelvin (K) бирдиги менен берилет. Эсептөөдө энтальпия менен энтропия мүчөлөрүнүн бирдиктери шайкеш болушу керек.
ΔG < 0 болушу белгиленген шарттарда байланыш процесси термодинамикалык жактан ыңгайлуу экенин көрсөтөт. Бирок реакция канчалык тез жүрөрүн өз алдынча түшүндүрбөйт.
ΔH < 0 болушу тиешелүү процесс экзотермиялык экенин билдирет. ΔS > 0 же ΔS < 0 болушу болсо байланыш менен байланышкан энтропия өзгөрүшүнүн багытын көрсөтөт.
Бул белгилерди өз алдынча белгилүү байланыш түрлөрүнүн так далили катары колдонуу туура эмес. Белок–полифенол байланышында эриткич молекулалары, иондор жана түзүлүштүк кайра уюшулуулар да термодинамикалык натыйжаларга салым кошушу мүмкүн.
6.1. Булакта келтирилген лактоферрин–хлороген кислотасы мисалы
Серепте уй лактоферрини менен хлороген кислотасынын өз ара аракеттенүүсүнө байланыштуу термодинамикалык изилдөөнүн натыйжалары берилет.
| Чоңдук | 290 K | 300 K |
|---|---|---|
| Байланыш константасы Ka | 5,29 × 10³ L/mol | 5,19 × 10³ L/mol |
| Gibbs эркин энергиясынын өзгөрүшү ΔG | −26,23 kJ/mol | −27,09 kJ/mol |
| Энтальпиянын өзгөрүшү ΔH | Бул температура үчүн өзүнчө маани берилген эмес. | −1,35 kJ/mol |
| Энтропиянын өзгөрүшү ΔS | Бул температура үчүн өзүнчө маани берилген эмес. | 85,79 J/(mol·K) |
Эки температурада тең терс Gibbs эркин энергиясы билдирилген. Серепте терс энтальпия жана оң энтропия өзгөрүүлөрү суутек байланыштары, van der Waals күчтөрү жана гидрофобдук өз ара аракеттенүүлөр бирге салым кошушу мүмкүн экенин көрсөтөрү айтылат.
Сандык текшерүү эскертүүсү: Булакта берилген 300 K маанилерин жалпы Gibbs теңдемесине түз киргизгенде, ΔH = −1,35 kJ/mol жана ΔS = 85,79 J/(mol·K) үчүн болжол менен −27,09 kJ/mol алынат. Ошентип, булактагы маанилер көрсөтүлгөн тегеректөө деңгээлинде өз ара шайкеш.
7. Байланышууну жана белок түзүлүшүн өлчөө үчүн колдонулган ыкмалар
Белок–полифенол комплексин туура мүнөздөө бир гана өлчөө ыкмасы менен чектелбеши керек. Себеби белок түзүлүшүнүн өзгөрүшү, байланыш күчү, химиялык байланыштын түзүлүшү жана бөлүкчө морфологиясы — ар башка илимий суроолор.
| Ыкма | Толук аталышы же функциясы | Берген маалыматы |
|---|---|---|
| FTIR | Фурье-трансформациялык инфракызыл спектроскопия | Химиялык байланыш термелүүлөрү жана белоктун экинчи түзүлүшүндөгү өзгөрүүлөр. |
| CD | Тегерек дихроизм спектроскопиясы | Экинчи түзүлүш компоненттеринин үлүштөрү жана конформациялык өзгөрүүлөр. |
| Raman | Raman спектроскопиясы | Молекулалык термелүүлөр, аминокислоталардын микрочөйрөсү жана айрым байланыш өзгөрүүлөрү. |
| Флуоресценция | Флуоресценциялык спектроскопия | Ароматтык аминокислоталардын чөйрөсү, флуоресценциянын өчүшү жана байланыш жүрүмү. |
| ITC | Изотермиялык титрлөө калориметриясы | Байланышууга байланышкан жылуулук жана термодинамикалык параметрлер. |
| DSC | Дифференциалдык сканерлөө калориметриясы | Жылуулук өтүүлөрү жана белок денатурациясынын жүрүмү. |
| NMR | Ядролук магниттик резонанс | Молекулалык чөйрө жана ылайыктуу тажрыйбаларда айрым калдыктардын өз ара аракеттенүүлөрү. |
| SAXS | Кичине бурчтуу рентген чачырашы | Эритмедеги жалпы молекулалык форма жана түзүлүштүк өлчөмдөр. |
| DLS | Динамикалык жарык чачырашы | Гидродинамикалык бөлүкчө өлчөмү жана бөлүштүрүлүшү. |
| SDS-PAGE | Белок гел электрофорези | Белок суббирдиктери жана молекулалык масса бөлүштүрүлүшү менен байланышкан үлгүлөр. |
| SEM / TEM / AFM | Электрондук жана атомдук күч микроскопиясы | Бөлүкчө морфологиясы, агрегаттануу жана ылайыктуу шарттарда беттик топография. |
| LC-MS/MS | Суюк хроматография–тандем масс-спектрометрия | Пептид жана химиялык модификация анализи; ылайыктуу маалымат менен байланышуу участокторун аныктоо. |
| Молекулалык докинг | Molecular docking | Ыктымал байланышуу орундарын жана эсептөөчү өз ара аракеттенүү божомолдорун көрсөтөт. |
| Молекулалык динамика | Molecular dynamics | Белгиленген модель шарттарында молекулалык кыймыл жана конформациялык өзгөрүүлөр. |
7.1. FTIRде амид I тилкеси эмне үчүн маанилүү?
Белоктордун Фурье-трансформациялык инфракызыл спектринде амид I тилкеси адатта 1600–1700 cm−1 аралыкта талданат.
Бул тилкенин маанилүү салымы белок каркасындагы карбонил (C=O) термелүүлөрүнөн келип чыгат. Тилкенин жайгашуусу жана формасы суутек байланыш чөйрөсүнө жана экинчи түзүлүшкө сезгич.
Бул жердеги cm−1 бирдиги толкун саны. Ал бир сантиметр узундукка туура келген толкун циклдеринин саны менен байланышкан спектроскопиялык чоңдук; түздөн-түз температура же белок көлөмү эмес.
Серепте лактоферрин–теафлавин өз ара аракеттенүүсүндө амид I тилкеси 1637,3 cm−1 маанисинен, теафлавин концентрациясы көбөйгөн сайын, тиешелүүлүгүнө жараша 1635,4; 1633,3 жана 1629,6 cm−1 орундарга жылганы келтирилет.
Бул өзгөрүү белок конформациясынын кайра уюшулушу менен байланышкан. Бирок бир гана тилкенин жылышы белгилүү коваленттик байланыш түзүлгөнүн так далилдебей турганын унутпоо керек.
7.2. Тегерек дихроизм менен белок түзүлүшү
CD спектроскопиясы сол жана оң тегерек поляризацияланган жарыктын үлгү тарабынан ар башка өлчөмдө жутулушуна негизделет. Белоктордун алыскы ультракызгылт көк аймактагы CD спектрлери алардын экинчи түзүлүшү жөнүндө маалымат берет.
Серепте келтирилген лактоферрин–теафлавин изилдөөсүндө баштапкы белок үчүн альфа-спираль үлүшү %7,40 ± 0,44; бета-катмар үлүшү %38,73 ± 0,78; бета-бурулуш үлүшү %21,76 ± 0,35 жана тартипсиз түзүлүш үлүшү %32,10 ± 0,63 деп билдирилген.
Теафлавин байланышкандан кийин бета-катмар үлүшү %42,30 ± 0,57 деңгээлине өскөнү билдирилген. Булакта бул өзгөрүү үчүн p < 0,05 статистикалык маанилүүлүк шарты берилген.
p мааниси кантип чечмеленет? p < 0,05 колдонулган статистикалык модель жана нөлдүк гипотеза шартында байкалган же андан да экстремалдуу натыйжанын ыктымалдыгы %5тен аз экенин билдирет. Бул натыйжанын туура болуш ыктымалдыгы %95 дегенди билдирбейт. Ошондой эле өзгөрүүнүн чоңдугун же практикалык маанисин өзүнчө көрсөтпөйт.
7.3. Флуоресценциянын өчүшү
Белоктордогу триптофан жана тирозин сыяктуу ароматтык аминокислоталар белгилүү шарттарда флуоресценция сигналын бере алат.
Полифенолдун белок менен өз ара аракеттенүүсү флуоресценциянын интенсивдүүлүгүн өзгөртө алат. Бул көрүнүш флуоресценциянын өчүшү катары изилденет.
Флуоресценциянын өчүшү динамикалык же статикалык мүнөздө болушу мүмкүн. Динамикалык өчүү козголгон абалдагы кагылышуулар менен байланыштуу. Статикалык өчүү болсо негизги абалда флуоресценциялык касиеттери башкача болгон комплекстин түзүлүшү менен байланыштуу болушу мүмкүн.
Серепте Stern–Volmer анализинин колдонулушу түшүндүрүлөт. Бирок бул кароонун алкагында белгилүү бир тажрыйбанын толук флуоресценциялык маалыматтар сериясы берилбегендиктен, булактан тышкары сандык Stern–Volmer ийри сызыгы же байланыш константасы түзүлгөн эмес.
Флуоресценция сигналынын азайышы өзүнчө коваленттик байланыш түзүлгөнүнүн так далили болуп эсептелбейт. Өчүү түрүн баалоодо температурага көз карандылык, жашоо убактысы жана кошумча ыкмалар эске алынышы керек.
7.4. NMR аркылуу байланышуу участокторун көзөмөлдөө
Ядролук магниттик резонанс атом ядролорунун магниттик касиеттери аркылуу молекулалык түзүлүш жана чөйрө жөнүндө маалымат берген ыкма.
Серепте 1H–15N HSQC тажрыйбалары менен алмадагы Mal d 1 аллерген белогунун хлороген кислотасы менен өз ара аракеттенүүсү изилденген иш бар.
HSQC — Heteronuclear Single Quantum Coherence деген сөз айкашынын кыскартылышы. Тийиштүү түрдө белгиленген белоктордо суутек жана азот ядролоруна байланышкан эки өлчөмдүү корреляция сигналдары аркылуу белгилүү аминокислота калдыктарынын химиялык чөйрөсүн изилдөөгө болот.
Булактын 3-сүрөт түшүндүрмөсүндө 100 µM белгиленген белок жана 0,1 mM, 1 mM, 2 mM хлороген кислотасы шарттары салыштырылат. µM жана mM — концентрация бирдиктери; 1 mM, 1000 µMге барабар.
Спектрдеги айрым сигналдардын орду өзгөрүшү же интенсивдүүлүгүнүн азайышы тиешелүү аминокислоталардын молекулалык чөйрөсү өз ара аракеттенүүнүн натыйжасында өзгөргөнүн көрсөтүшү мүмкүн.
Булактагы 3-сүрөттүн чыныгы NMR пик орундарын оригиналдык эксперименттин спектрдик маалыматтарын кайра колдонбостон ишенимдүү түзүү мүмкүн эмес. Ошондуктан спектр тууралган эмес.
7.5. Молекулалык динамикадагы RMSD
Root-Mean-Square Deviation (RMSD) — белгилүү атом орундарындагы эталондук конфигурацияга карата орточо квадраттык четтөөнүн квадраттык тамыры менен байланышкан өлчөм.
Молекулалык динамикада RMSD белоктун убакыт бою эталондук түзүлүштөн канчалык алыстаганын баалоого жардам берет.
RMSD ийри сызыгы убакыт өтүшү менен платого чыгышы белгиленген атом тандоосу жана тегиздөө шарттарында түзүлүштүк четтөө салыштырмалуу туруктуу болгонун көрсөтүшү мүмкүн. Бирок төмөн RMSD ар дайым жакшыраак биологиялык көрсөткүч же так термодинамикалык туруктуулуктун далили эмес.
Серепте полифенол оксидаза менен полифенолдук кошулмалардын өз ара аракеттенүүсүн изилдеген молекулалык динамика иштеринен сөз болот. Булактагы 4-сүрөттүн түшүндүрмөсү hesperetin–полифенол оксидаза системасына жана 150 ns симуляцияга тиешелүү. Ошол эле бөлүмдөгү naringin аркылуу берилген баяндоо менен сүрөттөгү кошулманын аталышы айырмаланат. Ошондуктан бул эки ат жашыруун түрдө теңештирилген эмес жана оригинал сүрөттөн жаңы сандык RMSD ийри сызыгы чыгарылган эмес.
7.6. Масс-спектрометрия менен коваленттик байланышты изилдөө
Масс-спектрометрия иондорду масса/заряд катышы боюнча анализдөөгө мүмкүндүк берет. Бул жердеги m/z белгиси иондун масса/заряд катышын билдирет.
Серепте хлороген кислотасы менен цистеиндин ортосундагы коваленттик кошулуу продуктусун изилдеген мисалда m/z 476 маанисиндеги прекурсор ион сүрөттөлөт.
Тандем масс-спектрометрияда прекурсор ион тандалып, бөлүнгөндө пайда болгон продукт иондорун байкоого болот. Ылайыктуу фрагментация үлгүлөрү жана кошумча аналитикалык маалыматтар молекулалык байланыштын химиялык идентификациясын баалоого жардам берет.
Бирок m/z 476 санынын гана көрүнүшү бардык белок–полифенол системаларында ошол эле коваленттик түзүлүш пайда болгонун көрсөтпөйт. Иондун заряды, химиялык курамы жана эксперименттин фрагментация шарттары бирге бааланышы керек.
8. Белок–полифенол комплекстеринин азыктагы функциялары
Сереп физикалык иштетүү менен өзгөртүлгөн комплекстердин колдонуу потенциалын беттик касиеттер, эригичтик, антиоксиданттык активдүүлүк, антимикробдук жүрүм жана гел түзүлүшү аркылуу карайт.
8.1. Эмульсия түзүү жана туруктуулук
Эмульсия — бири-бири менен аралашпаган эки суюк фазанын биринин экинчисинде тамчылар түрүндө таралган системасы. Азыктагы май–суу эмульсиялары мунун маанилүү мисалы.
Белоктор гидрофилдик да, гидрофобдук да касиеттерге ээ болгондуктан май–суу интерфейсине жайгашып, эмульсия түзүлүшүнө салым кошо алат.
Серепте эки көрсөткүч колдонулат:
- Emulsification Activity Index (EAI): Белгиленген эксперименттик шарттарда белоктун эмульсия түзүү активдүүлүгүн баалаган көрсөткүч.
- Emulsification Stability Index (ESI): Белгиленген өлчөө протоколунда түзүлгөн эмульсиянын убакыт боюнча туруктуулугу менен байланышкан көрсөткүч.
Бул эки көрсөткүч бир түшүнүк эмес. Белок башында жакшы эмульсия түзүшү мүмкүн, бирок түзүлгөн тамчы системасы убакыт өткөн сайын туруксуз болушу мүмкүн.
Булакта муздак плазма менен беттик гидрофобдуулугу өзгөртүлгөн белоктор жана полифенол комплекстери айрым шарттарда EAI жана ESI боюнча жакшыруулар көрсөткөнү айтылат.
8.2. Көбүк түзүү
Азыкта көбүк — газ көбүкчөлөрү суюк же жарым катуу фазага тараган түзүлүш. Белоктордун газ–суюктук интерфейсине адсорбцияланышы көбүк түзүлүшүндө маанилүү.
Серепте ультраүн менен иштетилген ovalbumin жана протокатехуикалык альдегид системасында көбүк түзүү жөндөмү %27,5, ал эми көбүк туруктуулугу %5,5 өскөнү билдирилген изилдөө бар.
Бул эки пайыз ар башка көрсөткүчтөргө тиешелүү. Көбүк түзүү жөндөмүндөгү %27,5 өсүү көбүк туруктуулугу да ошол эле көлөмдө өстү дегенди билдирбейт.
8.3. Сууда эригичтик
Белок–полифенол системасынын сууда эригичтиги жана таралуусу, өзгөчө суусундуктар жана суюк азык колдонмолору үчүн маанилүү.
Белок агрегаттарынын кичирейиши, гидрофилдик топтордун ачылышы жана белок–полифенол өз ара аракеттенүүлөрүнүн өзгөрүшү суу чөйрөсүндөгү таралууну жакшыртышы мүмкүн.
Серепте эки өзүнчө изилдөө мисалы бар:
- Кара куурай үрөнүнүн белогу–хлороген кислотасы комплексинин ультраүн иштетүүдөн кийинки эригичтигинде %38,7 өсүү.
- Күрүч кебегинин белогу–хлороген кислотасы системасында ультраүн жардамындагы иштетүүдөн кийин %68 эригичтик деңгээли.
Биринчи жыйынтык баштапкы мааниге карата өзгөрүүнү, экинчи жыйынтык болсо билдирилген акыркы эригичтик деңгээлин көрсөтөт. Ошондуктан %38,7 менен %68 түздөн-түз бирдей типтеги өлчөө катары салыштырылбайт.
8.4. Антиоксиданттык активдүүлүк жана сиңирүүдө корголуу
Антиоксиданттык активдүүлүк белгилүү эксперименттик шарттарда кычкылданууга байланышкан реакцияларга каршы көрсөтүлгөн химиялык активдүүлүктү билдирет. Ар башка антиоксидант тесттер ар башка реакцияларды өлчөшү мүмкүн.
Белок–полифенол комплекстеринде антиоксиданттык жүрүм полифенолдордун өз химиялык касиеттеринен тышкары, белокко байланышуу полифенолду тышкы таасирлерден коргошу жана реакциялык участоктордун жеткиликтүүлүгүн өзгөртүшү менен байланыштуу болушу мүмкүн.
Серепте жогорку гидростатикалык басымда иштетилген сарысуу белогу–антоцианин туундулары системасында in vitro ичеги сиңирүүсүнөн кийин биоактивдүү кошулмалардын %38,17 бөлүгү сакталган изилдөө келтирилет.
In vitro — тирүү организмдин сыртында түзүлгөн контролдонуучу эксперименттик чөйрө. Лабораторияда моделденген сиңирүү системасы адам организминдеги сиңирүү жана сиңип кетүү процесстеринин баарын билдирбейт.
Биожеткиликтүүлүк (bioaccessibility) — кошулманын сиңирүүдөн кийин сиңүүгө жеткиликтүү боло алган фракциясына тиешелүү. Биожеткиликтүүлүк/биоөздөштүрүлүү (bioavailability) болсо системалык кан айланууга өтүү жана организмде колдонулуу сыяктуу кеңири процесстерди камтыйт. Бул эки термин синоним катары колдонулбашы керек.
Булактын өзү да in vivo фармакокинетикалык жана bioavailability далилдери чектелүү экенин белгилейт.
8.5. Антимикробдук касиеттер
Полифенолдор айрым бактерияларда клетка мембранасы, металл иондору жана ферменттер менен байланышкан таасирлерди жарата алары изилденип жатат.
Серепте анар полифенолу камтылган жана ультраүн жардамында даярдалган тунец балыгынын терисинин коллагени–хитозан пленкаларынын Staphylococcus aureus жана Escherichia coli каршы күчөгөн антибактериялык активдүүлүгү жөнүндө изилдөө бар.
Бул табылга белгилүү пленка формуласы жана тест шарттары үчүн бааланышы керек. Ар бир белок–полифенол аралашмасы бардык патогендерге каршы натыйжалуу деген жыйынтык чыгарууга болбойт.
8.6. Гел түзүлүшү жана сууну кармоо
Белок гели — белок молекулалары бири-бири менен өз ара аракеттенип үч өлчөмдүү тор түзгөн түзүлүш. Бул тордун көзөнөк түзүлүшү, сууну байлоо жөндөмү жана механикалык бекемдиги продукт сапатына таасир этет.
Серепте буурчак белогу менен антоцианинге бай кара бузина экстрактын жогорку басым жана ультраүн менен бирге иштетүү боюнча изилдөөлөр каралат.
Мындай иштетүүлөр белоктордун ачылышына, полифенолдор менен өз ара аракеттенишине жана кайра уюшулушуна шарт түзүп, тыгызыраак тордун пайда болушуна салым кошо алат. Натыйжада айрым шарттарда гелдин туруктуулугу жана сууну кармоо жөндөмү жакшырышы мүмкүн.
Бирок тыгызыраак тор түзүлүшү бардык продукттарда каалаган текстура дегенди билдирбеши керек. Ар кандай азыктар ар башка катуулукту, ийкемдүүлүктү жана агым касиеттерин талап кылат.
9. Азык-түлүк өнөр жайындагы колдонмолор
9.1. Pickering эмульсиялары
Pickering эмульсиясы — суюк тамчылардын интерфейсинде жайгашкан ылайыктуу катуу бөлүкчөлөр менен туруктууландырылган эмульсия системасы.
Физикалык иштетүүлөр менен өзгөртүлгөн белок–полифенол бөлүкчөлөрү ылайыктуу өлчөмү жана беттик касиеттери менен мындай эмульсияларда стабилизатор катары колдонулушу мүмкүн.
Серепте ультраүн менен иштетилген жумуртка сарысынын белогу–эпигаллокатехин галлат системасынын жогорку ички фазалуу Pickering эмульсияларында колдонулушу жана бул системалардын майда эрүүчү биоактивдүү кошулмаларды ташуу потенциалы талкууланат.
9.2. Азык-түлүк таңгак пленкалары
Белок негизиндеги пленкалар азык-түлүк таңгактарында колдонулушу мүмкүн; бирок айрым табигый белок пленкаларынын механикалык бекемдиги жана суу буусуна каршы тосмо касиеттери чектелүү.
Серепте ультраүн жардамындагы тунец терисинин коллагени–анар полифенолу камтылган пленка системасында, ультраүн колдонулбаган салыштыруу пленкаларына караганда тартылуу бекемдиги %47,03 өскөн жана антиоксиданттык сыйымдуулук 24,16 эсе өскөн изилдөө берилген.
Тартылуу бекемдиги материалдын тартуу күчү астындагы механикалык каршылыгына тиешелүү. Антиоксиданттык сыйымдуулук болсо башка химиялык көрсөткүч. Бул эки натыйжа бир эле чоңдуктун өзгөрүшү эмес.
Таңгак колдонмосунда пленканын бекемдиги, өткөрүмдүүлүгү, микробдук активдүүлүгү, продукт менен контактка ылайыктуулугу жана сактоо көрсөткүчтөрү өз-өзүнчө бааланышы керек.
9.3. Эт азыктарынын сапаты
Эт азыктарында белоктор менен майлардын кычкылданышы түсүнө, даамына, текстурасына жана сактоо мөөнөтүнө таасир этиши мүмкүн.
Серепте миозин менен хлороген кислотасынын микротолкун жана ультраүн жардамында өз ара аракеттениши жана алынган комплекстердин эт эмульсияларында колдонулушу талкууланат.
Белок түзүлүшүнүн өзгөрүшү май–суу интерфейсиндеги жүрүмүнө, ал эми полифенолдун болушу кычкылданууга байланышкан касиеттерге таасир этиши мүмкүн. Бирок чыныгы коммерциялык продукттарда натыйжалар рецептурага жана иштетүү шарттарына жараша ырасталышы керек.
9.4. Өсүмдүк азыктары, йогурт сымал продукттар жана нан-булочка өндүрүшү
Сереп физикалык иштетүү технологияларынын өсүмдүк белокторунун функционалдуулугун жакшыртуу потенциалын да карайт.
Өсүмдүк негизиндеги йогурт сымал продукттарда жогорку басым иштетүүлөрү гел жана текстура касиеттерин өзгөртө алат. Дан жана нан-булочка азыктарында болсо белоктордун тор түзүү касиеттери, фенолдук кошулмалардын сакталуусу жана иштетүү учурундагы түзүлүш өзгөрүүлөрү маанилүү изилдөө багыттары болуп саналат.
Муздак плазманын глютен түзүлүшүндөгү кычкылдануу өзгөрүүлөрүнө таасир этиши жана микротолкундун дан матрицасында фенолдук кошулмалардын бошонушуна салым кошо алышы серепте талкууланган механизмдердин арасында.
Бирок физикалык иштетүү колдонулганына гана таянып продукт төмөн гликемиялык индекстүү, ден соолукка пайдалуураак же клиникалык жактан артык деген жыйынтык чыгарууга болбойт. Мындай дооматтар үчүн тиешелүү продукттун түз өлчөөлөрү керек.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
10. Изилдөөнүн дизайны
Бул иш белок–полифенол өз ара аракеттенүүлөрү жана физикалык иштетүүлөр жөнүндө жарыяланган изилдөөлөрдү бириктирген илимий сереп. Ал бир үлгү тобуна колдонулган жаңы ультраүн, плазма же басым тажрыйбасынан турган оригиналдуу эксперименттик изилдөө эмес.
Авторлор белок түзүлүшүнүн өзгөрүшүн, коваленттик жана коваленттик эмес өз ара аракеттенүүлөрдү, аналитикалык мүнөздөөнү, функционалдык касиеттерди жана азык колдонмолорун бири-бири менен байланышта баалашкан.
Серепте ар түрдүү изилдөөлөрдөн алынган жыйынтыктар болсо да, бардык иштерге колдонулган жалпы эксперименттик протокол же серептин өзүнө таандык жаңы эксперименттик контролдук топ жок. Ошондой эле бул макалага тиешелүү жаңы маалымат топтому түзүлгөн эмес.
10.1. Физикалык технологияларды салыштыруу
| Технология | Негизги артыкчылык | Башкы чектөө | Өнөр жайдагы абал |
|---|---|---|---|
| Ультраүн | Кавитация аркылуу белоктун ачылышын жана байланышууга көмөк көрсөтүү. | Чоң көлөмдө бирдей эмес кавитация; жергиликтүү ысып кетүү жана агрегаттануу коркунучу. | Азык иштетүүдө өнөр жайлык системалар бар; белок модификациясында масштабга чыгаруу маанилүү. |
| HPH | Үзгүлтүксүз иштетүү, бөлүкчөнү кичирейтүү жана таралууну жакшыртуу. | Жогорку инвестиция жана энергия керектөөсү; температуранын жогорулашы. | Сүт жана эмульсия өнөр жайында калыптанган инфраструктура. |
| PEF | Тез иштетүү жана жылуулукка сезгич компоненттер үчүн ылайыктуу шарттарды түзүү мүмкүнчүлүгү. | Чөйрөнүн өткөрүмдүүлүгү, электрод түзүлүшү жана суюк система талабы. | Суюк азык иштетүүдөгү инфраструктура белок колдонмолоруна үлгү болот. |
| Микротолкун | Тез көлөмдүк ысытуу. | Ысык чекиттер, чектелген кирүү жана температураны көзөмөлдөө көйгөйлөрү. | Ысытуу, кургатуу жана башка азык иштетүүдө өнөр жайлык инфраструктура. |
| Муздак плазма | Реактивдүү түрлөр менен беттик жана молекулалык модификация. | Кайталанмалуулук, пенетрация жана разряд шарттарын көзөмөлдөө. | Беттик иштетүү жана таңгак тармагында өнүгүп жаткан колдонмолор. |
| DHPM | Күчтүү кесүү күчү, агрегаттарды ажыратуу жана үзгүлтүксүз агым. | Жогорку жабдуу жана тейлөө наркы; эскирүү жана энергия сарптоо. | Айрыкча жогорку баалуу же атайын продукт колдонмолоруна ылайыктуу. |
Бул таблица бир технология бардык шарттарда экинчисинен жогору экенин көрсөтпөйт. Тандоодо максаттуу белок, полифенол, продукт түрү, энергия керектөөсү, процесс чыгымы жана каалаган функционалдык касиеттер бирге бааланышы керек.
10.2. Серептеги тандалган сандык изилдөө жыйынтыктары
| Изилдөө системасы | Билдирилген маани | Маанинин илимий түшүндүрмөсү |
|---|---|---|
| Сулу белогунун изоляты жана DHPM | Бөлүкчө өлчөмүндө %70,96 азайуу; абсолюттук зета-потенциалда %33,51 өсүү. | Агрегаттануу жана электрокинетикалык беттик касиеттердеги өзгөрүү. |
| Чочконун миофибриллярдык белогу жана HPH | Бөлүкчө өлчөмү 886 nmден 172 nmге өзгөргөн. | Тиешелүү белок системасында майда бөлүкчөлөрдүн бөлүштүрүлүшү. |
| Уй сыворотка альбумини жана муздак плазма | 60 мүнөт иштетүүдөн кийин альфа-спираль %27 азайган жана тартипсиз чынжыр %10 өскөн деп билдирилген. | Белоктун экинчи түзүлүшүндөгү өзгөрүү; изилдөөнүн оригиналдуу отчет формасы сакталган. |
| Бета-лактоглобулин–EGCG жана муздак плазма | 45 секунд. | Тиешелүү изилдөөдөгү коваленттик комплекстешүү үчүн берилген иштетүү убактысы. |
| Сарысуу белогу–рутин жана ультраүн | 200–600 W; 10–30 мүнөт. | Кычкылдануу жана байланыштын кубат/убакытка көз карандылыгы изилденген диапазон. |
| Ovalbumin–протокатехуикалык альдегид | Көбүк түзүү жөндөмү +%27,5; көбүк туруктуулугу +%5,5. | Бир-биринен айырмаланган эки көбүк көрсөткүчү. |
| Кара куурай үрөнүнүн белогу–хлороген кислотасы | Эригичтикте %38,7 өсүү. | Баштапкы шартка карата билдирилген өзгөрүү. |
| Күрүч кебегинин белогу–хлороген кислотасы | %68 эригичтик. | Билдирилген эригичтик деңгээли. |
| Басым иштетүү колдонулган сарысуу белогу–антоцианин системасы | In vitro сиңирүүдөн кийин %38,17 сакталуу. | Тиешелүү эксперименттик шарттарда биоактивдүү кошулмалардын сакталуу үлүшү. |
| Ультраүн жардамындагы коллаген–анар полифенолу пленкасы | Тартылуу бекемдиги +%47,03; антиоксиданттык сыйымдуулук 24,16 эсе өскөн. | Пленканын механикалык көрсөткүчү жана химиялык антиоксиданттык сыйымдуулук өзүнчө бааланат. |
Маалыматты чечмелөө боюнча эскертүү: Бул таблицадагы сандар бир эле изилдөө тобу бир эле эксперименттик түзүлүштө өлчөгөн жалпы маалымат топтому эмес. Ар бир маани серепте шилтеме берилген тиешелүү изилдөөнүн шарттарына тиешелүү. Ошондуктан ар башка белоктор, полифенолдор жана иштетүүлөр үчүн берилген пайыздарды түздөн-түз бирдиктүү ийгилик рейтингине айландырууга болбойт.
10.3. Функционалдык өзгөрүүнүн молекулалык негизи
Серептин негизги илимий синтези физикалык иштетүү менен функционалдык натыйжанын ортосунда көп баскычтуу байланыш бар экенин көрсөтөт:
Бул агымдын биринчи баскычында физикалык иштетүү белок түзүлүшүн өзгөртөт. Экинчи баскычта ачылган байланышуу участоктору же пайда болгон реактивдүү аралык продуктылар белок–полифенол өз ара аракеттенүүлөрүнө таасир этет. Үчүнчү баскычта бул өз ара аракеттенүүлөр эригичтик, интерфейстик активдүүлүк, гел түзүлүшү же химиялык туруктуулук сыяктуу касиеттерди өзгөртө алат.
Төртүнчү баскычта ылайыктуу комплекстер белгилүү азык формулаларында колдонулат. Бирок молекулалык деңгээлдеги оң өзгөрүү ар бир чыныгы азык системасында автоматтык түрдө продукт сапатынын жогорулашына айланат дегенди билдирбейт.
11. Изилдөө колдогон жыйынтыктар
- Физикалык иштетүүлөр белок агрегаттануусун, экинчи жана үчүнчү түзүлүштү жана айрым беттик касиеттерди өзгөртө алат.
- Белок конформациясынын өзгөрүшү полифенолдордун байланышуу участокторуна жетүүсүнө таасир этиши мүмкүн.
- Ылайыктуу шарттарда коваленттик эмес же коваленттик белок–полифенол өз ара аракеттенүүлөрү колдоого алынышы мүмкүн.
- Айрым комплекстерде эригичтик, эмульсия, көбүк, гел, антиоксиданттык жана антимикробдук касиеттердин жакшырганы билдирилген.
- Физикалык модификация Pickering эмульсиялары, активдүү таңгактар жана функционалдык азык компоненттери үчүн изилдөөгө татыктуу ыкмалардын тобу.
- Иштетүүнү тандоо белок менен полифенолдун түзүлүшүнө жана максатталган колдонуу тармагына көз каранды болушу керек.
12. Изилдөө түздөн-түз далилдебеген жыйынтыктар
Сереп физикалык иштетүү колдонулган бардык белок–полифенол системалары бирдей деңгээлде ийгиликтүү экенин далилдебейт. Ультраүн, микротолкун, жогорку басым же плазма үчүн бардык белокторго колдонулуучу бирдиктүү оптималдуу убакыт же кубат маанисин бербейт.
Ошондой эле лабораториядагы антиоксиданттык сыйымдуулуктун өсүшү адамдарда оору коркунучун азайтат, клиникалык пайда берет же белгилүү бир азык кошулмасы адам организминде сөзсүз жогорку bioavailabilityге жетет деген жыйынтык бул сереп менен далилденген эмес.
Серепте талкууланган азык таңгактоо жана антимикробдук системалар да ар бир продукт үчүн түз коммерциялык жарамдуулук же жөнгө салуучу жактыруу дегенди билдирбейт.
13. Изилдөөнүн чектөөлөрү жана келечектеги изилдөө муктаждыктары
Авторлор физикалык талаалар аркылуу белок–полифенол өз ара аракеттенүүлөрүн жакшыртуу боюнча изилдөөлөр маанилүү жетишкендиктерди көрсөткөнүн, бирок айрым тармактарда кошумча далилдер керек экенин баса белгилешет.
Маанилүү изилдөө муктаждыктарынын бири — ар түрдүү физикалык иштетүүлөрдү бирге колдонгондо пайда болгон өз ара таасирлерди түшүнүү. Мисалы, жогорку басым менен ультраүндү бирге колдонуу эки иштетүүнүн өз-өзүнчө берген таасирлеринин жөнөкөй суммасына барабар натыйжа бербеши мүмкүн.
Экинчи маанилүү муктаждык — бир белок жана бир полифенол камтыган жөнөкөйлөтүлгөн системалардан чыныгы азык матрицаларына өтүү. Чыныгы азыктарда майлар, полисахариддер, туздар жана башка компоненттер байланышуу жана фаза жүрүмүн өзгөртө алат.
Үчүнчү муктаждык — гастроинтестиналдык сиңирүүнү, сиңип кетүүнү, bioavailabilityни жана токсикологиялык коопсуздукту тирүү системаларда кеңири баалоо. Изилдөөчүлөр жаныбар моделдерин жана көп-омикалык ыкмаларды бул тармактагы келечектеги изилдөө темалары катары көрсөтүшөт.
Төртүнчү муктаждык — өнөр жай масштабында кайталануучу жана айлана-чөйрөгө таасири баалана турган үзгүлтүксүз процесстерди өнүктүрүү. Лабораторияда кичине көлөмдө алынган таасир чоң өндүрүш линиясында сөзсүз ошол эле түрдө пайда болот деп эсептөө туура эмес.
Акырында, эсептөө ыкмаларын белок–полифенол түзүлүштөрүн болжолдоо жана иштетүү шарттарын баалоо үчүн колдонууга көңүл бурулат. Бирок эсептөөчү божомолдор эксперименттик өлчөөлөр менен ырасталышы керек.
14. Жалпы илимий баалоо
Hu жана анын кесиптештеринин серебинин негизги салымы — физикалык иштетүү технологияларын белокторду жөн гана алдын ала иштетүү катары карабаганы. Изилдөө физикалык иштетүүлөр белок конформациясы, молекулалык байланыш механизмдери жана азыктагы функционалдык касиеттердин ортосунда кандай байланыш түзө аларын чогуу түшүндүрөт.
Физикалык модификациянын потенциалы белоктун же полифенолдун өзүнчө касиеттерин өзгөртүүдөн кеңири. Максат — эки компонент белгилүү шарттарда кандай комплекс түзөрүн түшүнүү жана бул комплекстин чыныгы азык системасындагы жүрүмүн ырастоо.
Ошондуктан эң маанилүү илимий жыйынтык белгилүү бир технологиянын универсалдуу түрдө артык болушу эмес; белок түзүлүшү, полифенол химиясы, физикалык иштетүү шарттары жана максаттуу азык функциясы бирге бааланышы керек.
Булак жана Ыкма Жөнүндө Эскертүү
Оригиналдуу изилдөө: Research Progress on Protein–Polyphenol Interaction Mechanisms and Structure–Activity Relationship Modified by Physical Fields.
Авторлор: Xiangjun Hu, Chengcheng Liu, Yutang Wang, Xi Yang жана Lijun Sun.
Мекемелер: College of Food Science and Engineering, Northwest A&F University, Yangling, Кытай; College of Food Science and Engineering, Ningbo University, Ningbo, Кытай.
Жооптуу авторлор: Xi Yang жана Lijun Sun. Булакта тең салым жөнүндө билдирүү жок.
Журнал: Foods.
Басмакана: MDPI.
Библиографиялык жазуу: Foods 2026, 15(14), 2431.
DOI: 10.3390/foods15142431.
Тапшыруу датасы: 3-июнь 2026.
Кайра кароо датасы: 3-июль 2026.
Кабыл алуу датасы: 6-июль 2026.
Жарыялоо датасы: 9-июль 2026.
Расмий шилтеме: https://doi.org/10.3390/foods15142431
Булак түрү: Рецензияланган илимий журналда жарыяланган Review түрүндөгү сереп. Preprint эмес. Жаңы лабораториялык эксперимент же жаңы маалымат топтомун билдирбейт.
Лицензия: Creative Commons Attribution (CC BY). Автордук укук 2026-жылы авторлорго таандык; басмакана — MDPI.
Каржылоо: National Natural Science Foundation of China, General Program, долбоор номери 32172204.
Кызыкчылыктардын кагылышы: Авторлор кызыкчылыктардын кагылышы жок экенин билдиришкен.
Маалыматтардын жеткиликтүүлүгү: Изилдөөдө жаңы маалымат түзүлбөгөнү же анализделбегени, ошондуктан маалымат бөлүшүү колдонулбай турганы көрсөтүлгөн.
Авторлордун салымы: Концептуалдаштыруу Xiangjun Hu; методология Chengcheng Liu; программалык камсыздоо Xiangjun Hu; маалыматтарды куроо Chengcheng Liu; алгачкы долбоор Xiangjun Hu; карап чыгуу жана редакциялоо Xi Yang; визуалдаштыруу Xiangjun Hu; көзөмөл Yutang Wang; долбоорду башкаруу жана каржылоону камсыз кылуу Lijun Sun тарабынан аткарылган.
Формула боюнча эскертүү: Gibbs эркин энергиясынын теңдемеси булакта талкууланган термодинамикалык чоңдуктарды түшүндүрүү үчүн жалпы илимий түшүндүрмө катары берилген. Булакта көрсөтүлбөгөн эксперименттик тууралоо коэффициенттери же сандык модель параметрлери чыгарылган эмес.
Булактын ичиндеги маанилүү шайкешсиздик: Белок–полифенол өз ара аракеттенүүлөрү молекулалык динамика менен түшүндүрүлгөн бөлүмдө naringin боюнча баяндоо менен 4-сүрөттө hesperetin деп аталган кошулманын ортосунда аталыш айырмасы бар. Бул айырма жаңы эксперименттик натыйжа менен чечилгендей көрсөтүлгөн эмес.
Илимий чечмелөөнүн чеги: Серептеги лабораториялык, in vitro сиңирүү, молекулалык моделдөө жана азык формуласы боюнча жыйынтыктар адамдардагы клиникалык натыйжалуулуктун, кеңири коопсуздуктун же бардык өнөр жай системаларындагы коммерциялык ийгиликтин түз далили эмес.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген