


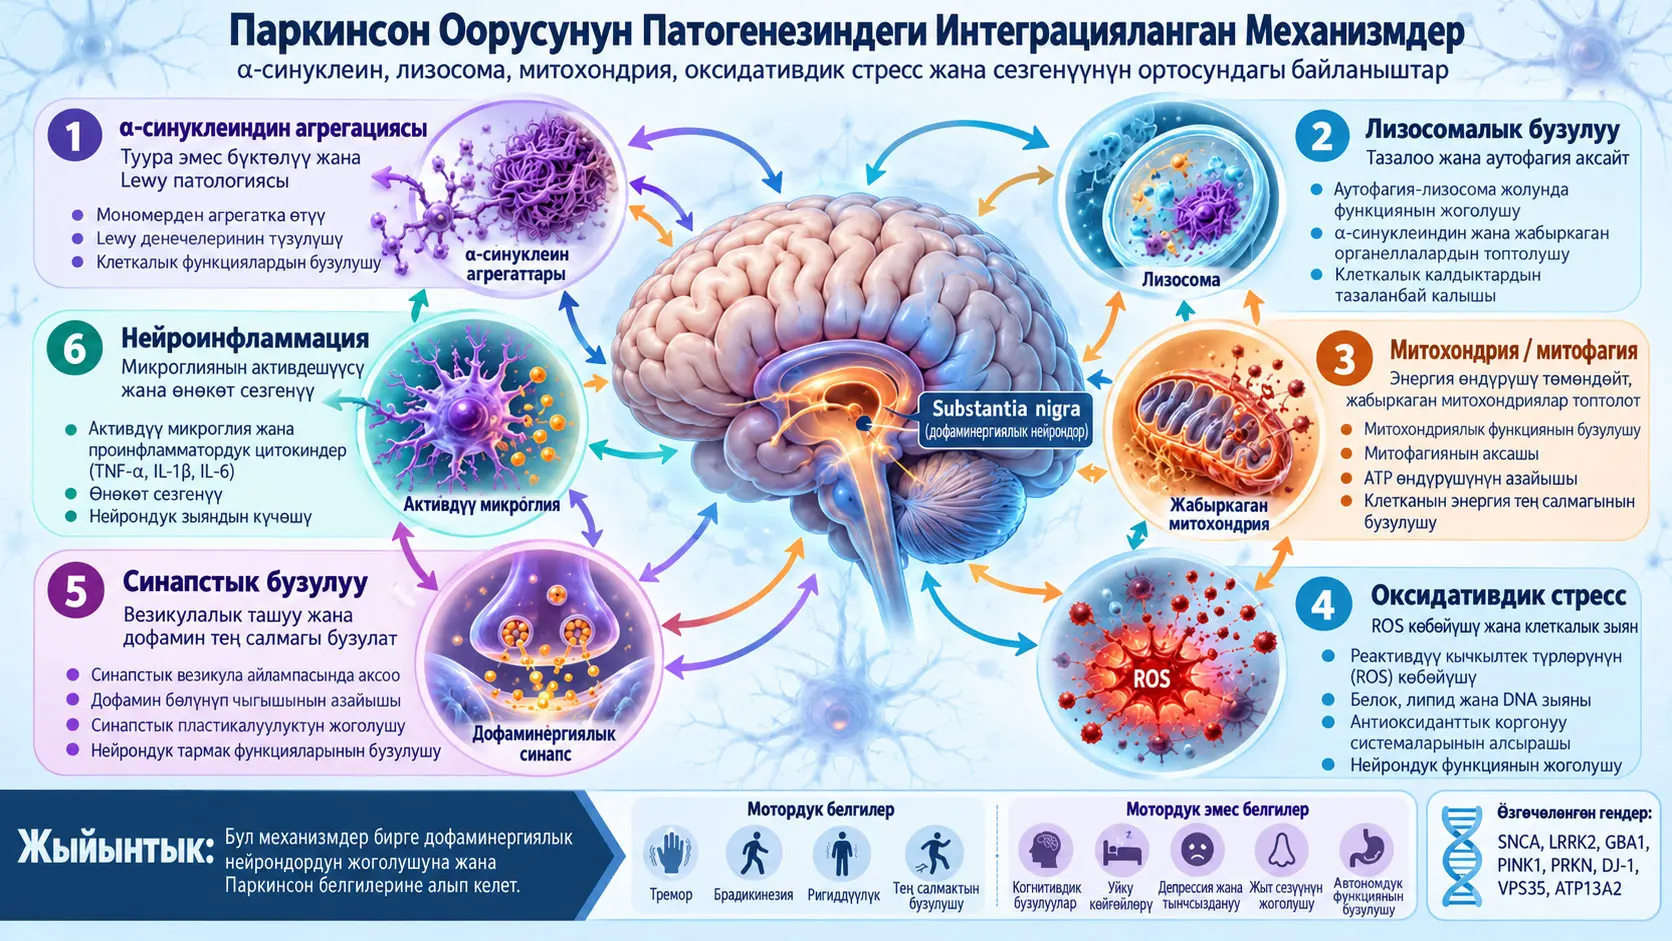
Паркинсон оорусу (Parkinson’s disease, PD), substantia nigra pars compacta аймагындагы дофаминергиялык нейрондордун прогрессивдүү жоголушу жана Lewy денечелери менен Lewy невриттеринде агрегацияланган α-синуклеиндин топтолушу менен мүнөздөлгөн прогрессивдүү нейродегенеративдик оору. Бул булак жаңы эксперимент же клиникалык дарылоо изилдөөсү эмес, Паркинсон патогенезин түшүндүргөн генетикалык жана клеткалык механизмдерди бириктирген сереп. Серептин негизги көз карашы боюнча, Паркинсон оорусу бир гана молекулалык бузулуудан эмес; α-синуклеиндин агрегациясы, лизосомалык бузулуу, аутофагия жана митофагия кемтиги, митохондриялык функциянын жоголушу, оксидативдик стресс, синапстык жана везикулалык ташуу бузулушу менен өнөкөт нейроинфламмация бири-бирин күчөткөн көп катмарлуу клеткалык тармактан келип чыгат.
Булак Паркинсон оорусун кыймыл бузулуусу катары гана баалабайт. Брадикинезия, ригиддүүлүк, тынч абалдагы тремор жана постуралдык туруксуздук сыяктуу мотордук белгилер менен катар когнитивдик бузулуу, автономдук функциянын бузулушу, уйку бузулуулары, депрессия, жыт сезүүнүн жоголушу жана гастроинтестиналдык белгилер сыяктуу мотордук эмес көрүнүштөр да оорунун клиникалык сүрөтүнүн бир бөлүгү. Сереп айрым мотордук эмес белгилер айкын мотордук бузулуулардан бир нече жыл мурда башталышы мүмкүн экенин баса белгилеп, патологиялык процесс клиникалык диагноз коюлганга чейин эле башталышы мүмкүн экенине көңүл бурат.
Генетикалык деңгээлде SNCA, LRRK2, GBA1, PINK1, PRKN, DJ-1, VPS35 жана ATP13A2 сыяктуу Паркинсон менен байланышкан гендер ар башка белокторду коддогону менен, алардын таасирлери көбүнчө жалпы клеткалык системаларда биригет. Бул системаларга митохондриянын сапатын көзөмөлдөө, лизосомалык деградация, аутофагия, синапстык везикулалардын айлануусу, эндосомалык ташуу, редокс тең салмактуулугу жана белок сапатын көзөмөлдөө кирет. Сереп бул гендерди бири-биринен көз карандысыз “Паркинсон гендери” катары тизмектөөнүн ордуна, бузулганда ошол эле патогендик тармактын ар башка чекиттерин алсыраткан биологиялык түйүндөр катары карайт.
α-синуклеин бул тармактын борборундагы белоктордун бири. Нормалдуу шартта пресинапстык аймакта жайгашкан α-синуклеин синапстык везикулалардын топтолушуна, SNARE комплексинин жөнгө салынышына жана нейротрансмиттердин бөлүнүп чыгышына салым кошот. Патологиялык шартта белоктун конформациясы өзгөрүшү мүмкүн; олигомерлер, протофибриллалар жана фибриллалар пайда болуп, акырында Lewy патологиясынын бөлүгүнө айланышы мүмкүн. Оксидативдик стресс, митохондриянын бузулушу, липид алмашуунун өзгөрүшү, дофаминдин кычкылданышы жана жетишсиз лизосомалык тазалануу α-синуклеиндин агрегациясын жеңилдетиши мүмкүн.
Лизосомалык система менен α-синуклеиндин ортосундагы байланыш эки тараптуу. Мисалы, GBA1 функциясынын жоголушуна байланыштуу glucocerebrosidase (GCase) активдүүлүгүнүн төмөндөшү glucosylceramide жана ага байланышкан сфинголипиддердин топтолушуна алып келиши мүмкүн; мындай чөйрө α-синуклеиндин олигомерлешүүсүн жеңилдетиши мүмкүн. Топтолгон α-синуклеин болсо GCase ташылышын жана лизосоманын жетилүүсүн бузуп, жаңы терс айлампаны түзүшү мүмкүн. Ошондуктан лизосомалык бузулуу α-синуклеин топтолушунун натыйжасы гана эмес, агрегацияны күчөтө турган upstream механизм катары да бааланат.
Митохондриялык сапатты көзөмөлдөөдө PINK1–Parkin жолу өзгөчө маанилүү. Дени сак митохондрияда PINK1 белогу ичке киргизилип, тез ажыратылат. Митохондрия мембраналык потенциалын жоготкондо PINK1 тышкы митохондриялык мембранада топтолуп, ubiquitinди фосфорлойт жана Parkinди ошол аймакка тартат. Активдешкен Parkin тышкы митохондриялык мембрана белокторун убиквитиндейт жана жабыркаган митохондриянын митофагия жолу менен тандалма түрдө чыгарылышын колдойт. PINK1 же PRKN мутациялары бул сапатты көзөмөлдөө циклин бузганда жабыркаган митохондриялар топтолуп, ATP өндүрүшү азайып, кальций тең салмактуулугу бузулуп, реактивдүү кычкылтек түрлөрү көбөйүшү мүмкүн.
Оксидативдик стресс ошол эле тармактын натыйжасы да, кыймылдаткыч фактору да болуп саналат. Жабыркаган митохондриялар ROS өндүрүшүн көбөйтүшү мүмкүн; ROS белокторго, мембраналык липиддерге, нуклеин кислоталарына жана митохондрия компоненттерине зыян келтириши мүмкүн. Оксидативдик зыян α-синуклеиндин туура эмес бүктөлүшүн жана агрегациясын жеңилдетсе, агрегацияланган α-синуклеин да митохондриялык дем алууну жана мембрананын бүтүндүгүн бузушу мүмкүн. Ошентип, оксидативдик стресс менен белок агрегациясы бири-бирин күчөткөн кайтарым байланыш циклин түзөт.
Сереп темирдин тең салмаксыздыгын да оксидативдик стресс тармагына кошот. Substantia nigraдагы темирдин көбөйүшү Fenton химиясы аркылуу өтө реактивдүү гидроксил радикалдарынын пайда болушун колдошу мүмкүн. Бул механизм липиддердин пероксидденишин, белоктордун кычкылданышын жана митохондриялык зыянды күчөтө турган кошумча оксидативдик жүк түзүшү мүмкүн.
Нейроинфламмация да патологиянын пассивдүү натыйжасы катары каралбайт. Активдешкен микроглия жана астроглия проинфламмациялык цитокиндерди, ROS, азот кычкылын жана инфламмасома менен байланышкан медиаторлорду бөлүп чыгарышы мүмкүн. Туура эмес бүктөлгөн α-синуклеин NLRP3 инфламмасомасын кошкондо innate immune жолдорун стимулдаштырышы мүмкүн. Жабыркаган митохондриялардан чыккан митохондриялык DNA сыяктуу damage-associated molecular patterns да микроглиялык активдешүүнү күчөтүшү мүмкүн. Өнөкөт инфламмация көбүрөөк оксидативдик стресс жана митохондриялык бузулуу жаратып, кайрадан оң кайтарым байланыш түзөт.
Сереп борбордук нерв системасы менен гана чектелбейт. Ичеги–мээ огу эң кеңири талкууланган перифериялык механизм; ичегинин өткөрүмдүүлүгү, ичеги микробиотасы, перифериялык иммунитет жана энтерикалык нерв системасындагы α-синуклеин патологиясы ушул алкакта бааланат. Булак ошондой эле боор–мээ, көк боор–мээ жана тери–мээ байланыштарын өнүгүп жаткан изилдөө багыттары катары талкуулайт. Булар бардык бейтаптар үчүн так жана жалпы баштапкы механизмдер катары эмес, борбордук патология менен өз ара таасир эте турган перифериялык модуляторлор катары каралышы керек.
Бул серептин терапиялык билдирүүсү “бир максаттуу дарылоо табылды” деген эмес. GCase активдүүлүгүн жогорулатуу, аутофагияны жана лизосомалык функцияны күчөтүү, PINK1–Parkin митофагиясын колдоо, LRRK2 киназа активдүүлүгүн ингибирлөө, α-синуклеин агрегациясын же таралышын бутага алуу, микроглиялык/инфламмасома активдүүлүгүн азайтуу жана ичеги микробиотасын модуляциялоо сыяктуу көптөгөн ыкмалар изилденүүдө. Бирок булак аларды клиникалык жактан далилденген оорунун жүрүшүн өзгөртүүчү стандарттык дарылоо катары көрсөтпөйт.
Паркинсон оорусундагы негизги патологиялык түзүлүш кандай?
Паркинсон оорусунун классикалык нейропатологиялык өзгөчөлүктөрүнүн бири substantia nigra pars compacta аймагындагы дофаминергиялык нейрондордун прогрессивдүү жоголушу. Бул нейрондор стриатумга дофамин жеткирген нигростриаталдык системанын негизги бөлүктөрүнүн бири. Дофаминдин жоголушу кыймылды баштоо жана жөнгө салууда катышкан базалдык ганглия чынжырларынын иштешин бузуп, мотордук белгилерге салым кошот.
Экинчи негизги өзгөчөлүк — Lewy денечелери менен Lewy невриттеринин ичинде агрегацияланган α-синуклеиндин болушу. Lewy денечелерин нейрон денесиндеги, Lewy невриттерин болсо нейрондук өсүндүлөрдөгү патологиялык белок топтолмолору катары кароого болот. Бирок серептин негизги мамилеси бул эки патологиялык өзгөчөлүктү оорунун толук түшүндүрмөсү деп эсептебейт; алардын астында жана айланасында көптөгөн клеткалык сапатты көзөмөлдөө системалары бар.
Дофаминергиялык нейрондор эмне үчүн өзгөчө аялуу?
Булак substantia nigraдагы дофаминергиялык нейрондор узун жана кең аксондук бутактанууга, көп сандагы синапстык терминалдарга, жогорку энергия муктаждыгына, кальцийге көз каранды автономдук pacemaking активдүүлүгүнө жана дофамин метаболизмине байланышкан туруктуу оксидативдик жүккө ээ экенин баса белгилейт. Бул өзгөчөлүктөр митохондриянын функциясына, белок сапатын көзөмөлдөөгө жана клетка ичиндеги ташуу системаларына өзгөчө көз карандылыкты жаратат.
Ошондуктан митохондрия, лизосома же везикулалык ташуу системаларынын бириндеги гана майда жана өнөкөт бузулуу да жылдар ичинде клеткалык жүктүн топтолушуна салым кошушу мүмкүн. Сереп тандалма нейрондук сезгичтикти бири-бирине кошулган ушул физиологиялык жүктөр менен түшүндүрөт.
Паркинсон Оорусунда α-Синуклеин Эмне Үчүн Борбордук?
α-синуклеин адатта пресинапстык везикула уюшулушуна жана нейротрансмиттердин бөлүнүп чыгышына салым кошкон, бирок туура эмес бүктөлгөндө олигомер, протофибрилла жана фибрилла түзө алган белок; анын Паркинсон патогенезинде борбордук болушунун себеби — агрегациясы митохондрия, лизосома, аутофагия жана синапстык ташуу системаларын бузушу жана бул системалардагы бузулуулар да α-синуклеин агрегациясын андан ары күчөтүшү мүмкүн.
α-синуклеиндин нормалдуу милдети кандай?
α-синуклеин негизинен пресинапстык аймакта жайгашкан динамикалык белок. Ал мономердик жана мультимердик абалдардын ортосунда өтүп, синапстык везикулалардын топтолушу, мембраналар менен өз ара аракеттенүү, SNARE комплексинин түзүлүшү жана нейротрансмиттердин бөлүнүп чыгышын жөнгө салуу сыяктуу процесстерге салым кошо алат.
SNARE комплекси деген эмне?
SNARE комплекси клетка ичиндеги мембраналардын жана өзгөчө синапстык везикулалардын максаттуу мембрана менен кошулушун камсыз кылган белоктук механизм. Нерв терминалында нейротрансмиттер ташыган везикуланын клетка мембранасы менен кошулуп, курамын синапстык аралыкка чыгарышы ушундай мембрана-фузия механизмдерине негизделет. α-синуклеиндин физиологиялык функцияларынын бири бул везикулалык системанын жөнгө салынышына салым кошуу.
Олигомер, протофибрилла жана фибрилла эмнени билдирет?
Олигомер, аз сандагы α-синуклеин молекулалары бириккен аралык агрегациялык түзүлүш. Протофибрилла, олигомерлерге караганда көбүрөөк уюшкан жана узарган аралык түзүлүштөрдү; фибрилла болсо узунураак жана тартиптүү филаменттик агрегаттарды билдирет. Бул терминдер бир эле белоктун агрегация процессиндеги ар башка структуралык абалдарын сүрөттөйт.
Булак ар башка синуклеинопатиялардан алынган α-синуклеин фибриллаларында cryo-electron microscopy аркылуу структуралык ар түрдүүлүк байкалганын жана бул айырмачылыктар клиникалык ар түрдүүлүктүн мүмкүн болгон себептеринин бири болушу мүмкүн экенин билдирет. Сереп бул структуралык айырмачылыктарды өз алдынча клиникалык фенотипти аныктаган далилденген себеп катары көрсөтпөйт.
“Прион сымал таралуу” эмнени билдирет?
Прион сымал таралуу деген түшүнүк туура эмес бүктөлгөн α-синуклеин түрлөрү бир нейрондон экинчисине өтүп, кабыл алуучу клеткада жаңы α-синуклеин агрегациясын башташы мүмкүн деген идеяны сүрөттөйт. Бул Паркинсон оорусу классикалык жугуштуу прион оорусу дегенди билдирбейт; салыштыруу белоктун туура эмес бүктөлүшү клеткалар арасында калып сымал түрдө тарашы мүмкүн болгон механизмге тиешелүү.
Мембраналык липиддер α-синуклеинге кандай таасир этиши мүмкүн?
α-синуклеин өзгөчө ийрилиги жогору фосфолипиддик мембраналар менен өз ара аракеттене алат. Мембрананын курамынын же клеткалык липид метаболизминин өзгөрүшү белоктун мембрана менен өз ара аракеттенүү тең салмактуулугун бузуп, олигомерлешүү/фибриллешүү тенденциясына таасир этиши мүмкүн. Ошентип, липиддик гомеостаз менен белок агрегациясынын ортосунда түз клеткалык байланыш түзүлөт.
Протеостаз деген эмне?
Протеостаз, клетканын белоктордун синтези, туура бүктөлүшү, ташылышы, сапатын көзөмөлдөө жана зарыл учурда ажыратылышы ортосундагы тең салмактуулукту сактоосу. Паркинсон патогенезинде протеостаз бузулганда туура эмес бүктөлгөн жана жабыркаган белоктордун тазаланышы жетишсиз болушу мүмкүн; α-синуклеиндин топтолушу да белок сапатын көзөмөлдөө системаларынын жүгүн дагы көбөйтүшү мүмкүн.
Лизосоманын милдети кандай?
Лизосома клетканын ичинде белокторду, липиддерди жана жабыркаган органеллаларды ажыраткан кычкыл деградациялык органелла. Узак жашаган жана бөлүнбөгөн нейрондор жабыркаган белокторду жана органеллаларды дайыма тазалап турушу керек болгондуктан, лизосомалык системадагы өнөкөт бузулууларга өзгөчө сезгич.
Аутофагия деген эмне?
Аутофагия — клетка өзүнүн цитоплазмалык материалын лизосомалык деградацияга багыттаган сапатты көзөмөлдөө системаларынын жалпы аталышы. Ал жабыркаган белок агрегаттарын жана органеллаларды чыгаруу үчүн зарыл. Аутофагиялык агым аутофагосоманын пайда болушун гана эмес, ташуу жана лизосома менен кошулуу процесстеринин аяктоосун да камтыйт.
Шаперон аркылуу жүрүүчү аутофагия деген эмне?
Chaperone-mediated autophagy — белгилүү цитозолдук белоктор шаперон белоктору тарабынан таанылып, лизосомалык мембранага ташылган тандалма деградация жолу. Патологиялык α-синуклеин түрлөрү lysosome-associated membrane protein 2A (LAMP2A) менен натыйжасыз өз ара аракеттенип, бул жолду бөгөп, туура эмес бүктөлгөн белоктордун тазаланышын азайтышы мүмкүн.
GBA1 жана GCase эмне үчүн маанилүү?
GBA1, lysosomal glucocerebrosidase, башкача айтканда GCase ферменти менен байланышкан ген. Сереп GBA1 мутацияларын Паркинсон оорусунун эң күчтүү генетикалык тобокелдик факторлорунун бири катары сүрөттөйт. GCase активдүүлүгү азайганда glucosylceramide жана ага байланышкан sphingolipidдердин лизосомалык метаболизми бузулушу мүмкүн.
Бул липиддердин топтолушу α-синуклеиндин олигомерлешүүсүн жана фибриллешүүсүн жеңилдетиши мүмкүн. Өз кезегинде топтолгон α-синуклеин GCaseтин клетка ичиндеги ташылышын жана лизосоманын жетилүүсүн бузушу мүмкүн. Ошентип GBA1/GCase–α-синуклеин байланышы эки тараптуу патогендик циклди түзөт.
ATP13A2 эмне кылат?
ATP13A2 лизосомалык ион жана полиамин гомеостазы, лизосомалык кычкылдануу жана аутофагиялык деградация менен байланышкан белок. ATP13A2 функциясынын жоголушу лизосоманын химиялык чөйрөсүн жана тазалоо жөндөмүн бузуп, оксидативдик стресске жана клеткалык зыянга сезгичтикти жогорулатышы мүмкүн.
VPS35 жана ретромер системасы деген эмне?
VPS35 ретромер деп аталган эндосомалык кайра айлантуу комплексинин маанилүү компоненттеринин бири. Ретромер эндосомалардан белгилүү белокторду туура клеткалык максаттарга кайра ташууга салым кошот. VPS35 бузулуулары endosomal sorting, лизосомалык фермент ташылышы жана аутофагия менен байланышкан жолдорго таасир этиши мүмкүн.
PINK1–Parkin Жолу Жабыркаган Митохондрияларды Кантип Тазалайт?
PINK1–Parkin жолу мембраналык потенциалын жоготкон митохондрияларды таанып, убиквитинге негизделген сигналдар аркылуу митофагияга багыттаган митохондриялык сапатты көзөмөлдөө системасы; дени сак митохондрияда тез ажыраган PINK1 жабыркаган митохондриянын тышкы мембранасында топтолуп ubiquitinди фосфорлойт, Parkinди активдештирет жана жабыркаган органелланын тандалма түрдө чыгарылышын жеңилдетет.
Митофагия деген эмне?
Митофагия, аутофагиянын өзгөчө жабыркаган же функциясыз митохондрияларды бутага алган тандалма түрү. Максат — аз ATP өндүрүп, ашыкча ROS түзгөн митохондриялардын клетка ичинде топтолушуна жол бербөө.
Нормалдуу митохондрияда PINK1 эмне болот?
Митохондриянын мембраналык потенциалы нормалдуу болгондо PINK1 митохондриянын ичине киргизилип, тез ажыратылат. Ошондуктан тышкы митохондриялык мембранада PINK1 көп топтолбойт.
Жабыркаган митохондрияда эмне өзгөрөт?
Митохондрия мембраналык потенциалын жоготкондо PINK1дин нормалдуу ичке кириши бузулуп, белок тышкы митохондриялык мембранада топтолот. PINK1 бул жерде ubiquitinди фосфорлойт жана цитозолдук Parkinдин жабыркаган митохондрияга топтолушун колдойт.
Parkin эмне кылат?
PRKN тарабынан коддолгон Parkin — E3 ubiquitin лигаза. Активдешкенде тышкы митохондриялык мембранадагы белокторду убиквитиндөө аркылуу клетканын сапатты көзөмөлдөө системасына “бул митохондрия жабыркаган” деген сигнал берет. Ошентип органелла аутофагиялык тазалоо системасына багытталышы мүмкүн.
PINK1 же PRKN бузулса эмне болот?
PINK1 же PRKN мутациялары митофагиянын натыйжалуулугун төмөндөтүшү мүмкүн. Функциясыз митохондриялар топтолгон сайын оксидативдик фосфорлануу алсырап, ATP өндүрүшү азайып, ROS өндүрүшү көбөйүп жана кальций гомеостазы бузулушу мүмкүн. Жабыркаган митохондриялар ошондой эле про-апоптоздук сигналдарды жана инфламмацияны стимулдай турган митохондриялык компоненттерди бөлүп чыгарышы мүмкүн.
DJ-1дин ролу кандай?
DJ-1 клеткалык антиоксиданттык коргонууда жана митохондриялык редокс жөнгө салууда роль ойногон белок. DJ-1 функциясынын жоголушу клетканын оксидативдик стресске каршы буферлөө жөндөмүн төмөндөтүп, митохондриялык зыянга сезгичтикти жогорулатышы мүмкүн.
Оксидативдик стресс деген эмне?
Оксидативдик стресс — клеткада пайда болгон реактивдүү кычкылтек түрлөрү антиоксиданттык коргонуу мүмкүнчүлүгүнөн ашып кеткен абал. ROS толугу менен зыяндуу же толугу менен керексиз молекулалар эмес; төмөн деңгээлде клеткалык сигнал берүүгө катыша алышат. Маселе өндүрүш менен тазалоонун ортосундагы тең салмак бузулганда пайда болот.
Паркинсон оорусунда ROS эмне үчүн көбөйүшү мүмкүн?
Митохондриялык электрон ташуу чынжырынын бузулушу, дофаминдин кычкылданышы, темирдин тең салмаксыздыгы, айлана-чөйрөлүк токсиндер жана өнөкөт инфламмациялык клетка активдешүүсү ROS жүгүн көбөйтө турган механизмдер. Rotenone жана paraquat сыяктуу айлана-чөйрөлүк токсиндер да серепте митохондриялык дем алууну жана редокс тең салмактуулугун буза турган мисалдар катары талкууланат.
Липиддердин пероксиддениши деген эмне?
Липиддердин пероксиддениши — өзгөчө көп каныкпаган мембраналык липиддердин реактивдүү кычкылтек түрлөрү тарабынан оксидативдик чынжыр реакцияларына кабылышы. Бул процесс мембрананын бүтүндүгүн, везикулалык динамиканы жана клеткалык сигнал системаларын бузушу мүмкүн. Сереп липиддердин пероксидденишин оксидативдик стресстин клеткалык натыйжаларынын бири катары карайт.
Темир жана Fenton химиясы эмне үчүн маанилүү?
Эркин же туура жөнгө салынбаган темир суутек пероксиди сыяктуу оксиданттар менен реакцияга кирип, өтө жогорку реактивдүүлүккө ээ гидроксил радикалдарынын пайда болушун жеңилдетиши мүмкүн. Бул реакциялар тармагы Fenton химиясы деп аталат. Булак substantia nigraдагы темир топтолушун оксидативдик зыянды жана митохондриялык бузулууну күчөтө турган механизмдердин бири катары баалайт.
Синапстык бузулуу эмне үчүн эрте болушу мүмкүн?
Нейрон толук өлө электе синапстык байланыш бузулушу мүмкүн. α-синуклеин нормалдуу синапстык везикула уюшулушунда роль ойногондуктан, белок агрегациясы везикула clustering, docking, recycling жана нейротрансмиттердин бөлүнүп чыгышына таасир этиши мүмкүн. Дофаминдин везикуладан тышкары цитозолдо көбүрөөк калышы дофаминдин кычкылданышын күчөтүп, жаңы оксидативдик жүк жаратышы мүмкүн.
LRRK2 эмне кылат?
LRRK2 көптөгөн клеткалык буталарды фосфорлой ала турган киназа жана синапстык везикула эндоцитозунда, цитоскелеттик уюшулууда, эндосомалык жана лизосомалык мембрана трафигин жөнгө салууда роль ойнойт. Оору менен байланышкан ашыкча LRRK2 киназа активдүүлүгү везикула recycling жана эндолизосомалык гомеостазды бузушу мүмкүн.
SYNJ1 жана DNAJC6 эмне үчүн маанилүү?
SYNJ1 phosphoinositide метаболизминде жана синапстык везикула эндоцитозунда иштейт. DNAJC6 болсо clathrin капталган везикулалардын uncoating процесси менен байланыштуу. Бул белоктордун бузулушу синапстык везикулалардын кайра айлануусунун ар башка баскычтарын үзгүлтүккө учуратышы мүмкүн.
Нейроинфламмация деген эмне?
Нейроинфламмация — борбордук нерв системасындагы иммундук жана глиялык клеткалардын инфламмациялык сигнал жолдорунун өнөкөт же тартипсиз түрдө активдешүүсү. Микроглия мээнин негизги резиденттик иммундук клеткалары; астроглия болсо нейрондук чөйрөнүн метаболикалык жана структуралык жөнгө салынышында роль ойногон глиялык клеткалар.
NLRP3 инфламмасомасы деген эмне?
NLRP3 инфламмасомасы клеткалык коркунуч сигналдарын сезип, инфламмациялык жооптун активдешүүсүнө салым кошкон көп белоктуу innate immune комплекс. Булак туура эмес бүктөлгөн α-синуклеин NLRP3тү кошкондо innate immune жолдорун активдештирип, өнөкөт микроглиялык жоопту колдой аларын билдирет.
DAMP деген эмне?
Damage-associated molecular patterns (DAMPтер) — инфекция жок кезде клеткалык зыянды иммундук система сезүүсүнө шарт түзгөн эндогендик молекулалык сигналдар. Жабыркаган митохондриялардан чыккан митохондриялык DNA жана башка митохондрия компоненттери ушундай коркунуч сигналдары катары иштей алат.
Ичеги–мээ огу кандай каралат?
Сереп ичеги микробиотасындагы өзгөрүүлөр ичегинин өткөрүмдүүлүгүнө жана перифериялык иммундук активдешүүгө таасир этиши; энтерикалык нерв системасында α-синуклеиндин топтолушун жеңилдетиши мүмкүн экенин талкуулайт. “Body-first” моделинде перифериялык аймакта пайда болгон патологиялык α-синуклеин түрлөрү vagus нерви аркылуу мээ сабагына жана тиешелүү борбордук аймактарга жылышы мүмкүн деп болжолдонот.
Бул модель бардык Паркинсон бейтаптарында оору ичегиден башталат дегенди далилдебейт. Булак муну оорунун өнүгүшүнүн белгилүү бир модели катары көрсөтөт.
Боор–мээ огу деген эмне?
Боор метаболикалык жана инфламмациялык сигналдар аркылуу системалык иммунитетке жана оксидативдик стресске таасир этиши мүмкүн. Сереп боор функциясынын бузулушу, өзгөчө метаболикалык оорулар менен бирге болгондо, микроглиялык активдешүү жана α-синуклеин патологиясы менен байланыштуу болушу мүмкүн деген өнүгүп жаткан далилдерди талкуулайт.
Көк боор–мээ огу эмне үчүн талкууланат?
Көк боор перифериялык иммундук клеткаларды жана цитокиндик чөйрөнү жөнгө салууда маанилүү орган. Эксперименттик моделдерде splenic immune-cell activation жана цитокиндик тартипсиздик борбордук нейроинфламмациялык жоопторду күчөтө алары билдирилген. Ошондуктан сереп көк боорду Паркинсондогу системалык инфламмация тармагынын мүмкүн болгон модуляторлорунун бири катары карайт.
Тери эмне үчүн Паркинсон биомаркерин изилдөөдө маанилүү болуп жатат?
Перифериялык тери нерв талчаларында α-синуклеиндин топтолушу көрсөтүлүшү тери биопсиялары системалык synucleinopathy үчүн жеткиликтүү биомаркер булагы болушу мүмкүн деген ойду колдойт. Сереп муну өнүгүп жаткан биомаркер багыты катары көрсөтөт; аны өз алдынча стандарттуу жана так Паркинсон диагностикалык тести катары аныктабайт.
Паркинсон Оорусунда Механизмдер Эмне Үчүн Бири-бирин Азыктандырган Тармак Катары Каралат?
Анткени лизосомалык тазалануунун бузулушу α-синуклеиндин жана жабыркаган митохондриялардын топтолушун көбөйтө алат; жабыркаган митохондриялар ROS өндүрүшүн жогорулата алат; ROS α-синуклеиндин туура эмес бүктөлүшүн жана лизосомалык зыянды күчөтө алат; агрегацияланган α-синуклеин митохондрия жана синапстык ташуу системаларын буза алат; өнөкөт инфламмация болсо оксидативдик зыянды кайра көбөйтө алат. Бул өз ара байланыштар бир багыттуу сызыктуу чынжырдын ордуна өзүн-өзү күчөткөн патогендик кайтарым байланыш тармагын түзөт.
Multi-omics эмнени билдирет?
Multi-omics — бир эле биологиялык маселени геномика, транскриптомика, протеомика, метаболомика же башка кең масштабдагы молекулалык маалымат катмарларын чогуу баалоо аркылуу изилдөө ыкмасы. Сереп Паркинсон ткандарындагы жана эксперименттик моделдердеги multi-omics изилдөөлөрү протеостаз, митохондрия метаболизми, аутофагия, липид гомеостазы жана синапстык функция бузулуулары бир учурда пайда болушу мүмкүн экенин колдой турганын белгилейт.
Эмне үчүн ар башка генетикалык себептер окшош Паркинсон патологиясына алып келиши мүмкүн?
Анткени ар башка мутациялар ар башка белокторго таасир эткени менен, бул белоктор ошол эле негизги клеткалык тармактарда биригиши мүмкүн. GBA1 көбүнчө лизосомалык метаболизм, PINK1/PRKN митохондрия сапатын көзөмөлдөө, LRRK2 везикулалык trafficking жана SNCA α-синуклеин биологиясы менен байланыштуу; бирок бул системалардын биринин бузулушу башка системаларда экинчилик стресс жаратышы мүмкүн. Бул жакындашуу генетикалык жактан айырмаланган Паркинсон формаларында эмне үчүн окшош нейродегенеративдик өзгөчөлүктөр көрүнүшү мүмкүн экенин түшүндүрүүгө жардам берет.
Серепте ген–механизм байланыштары кантип жыйынтыкталат?
| Клеткалык система | Негизги ген/белоктор | Бузулганда негизги көйгөй | Башка жолдор менен байланышы |
|---|---|---|---|
| α-синуклеин протеостазы | SNCA | Туура эмес бүктөлүү, олигомерлешүү, фибрилла жана Lewy патологиясы | Митохондрия, лизосома, аутофагия жана синапстык везикула системаларына таасир этиши мүмкүн |
| Лизосомалык функция | GBA1, ATP13A2, VPS35 | Деградациянын, липид гомеостазынын жана фермент ташылышынын бузулушу | α-синуклеин топтолушуна жана митохондрия сапатын көзөмөлдөөгө таасир этет |
| Митохондрия сапатын көзөмөлдөө | PINK1, PRKN, DJ-1 | Митофагиянын азайышы, ROS көбөйүшү, дем алуу жана энергия көйгөйлөрү | Оксидативдик стрессти, инфламмацияны жана белок агрегациясын күчөтүшү мүмкүн |
| Синапстык везикула системасы | LRRK2, SYNJ1, DNAJC6 | Эндоцитоз, uncoating, recycling жана нейротрансмиттер бөлүнүп чыгышынын бузулушу | Дофамин гомеостазы жана оксидативдик жүк таасирлениши мүмкүн |
| Эндосомалык trafficking | VPS35, LRRK2 | Ретромер жана мембраналык ташуунун бузулушу | Лизосомалык ферменттердин бөлүштүрүлүшү жана синапстык белоктордун сакталуусу таасирлениши мүмкүн |
| Редокс коргонуу | DJ-1, PRKN | ROS буферлөө жөндөмүнүн төмөндөшү жана оксидативдик зыян | Митохондрия, липиддер жана α-синуклеин агрегациясы таасирлениши мүмкүн |
| Нейроинфламмация | NLRP3 инфламмасомасы, микроглиялык активдешүү | Өнөкөт цитокин жана инфламмациялык медиатор өндүрүшү | ROS жана митохондрия бузулушун көбөйтүп, нейрондук зыянды күчөтүшү мүмкүн |
Терапиялык буталар кайсы топторго бөлүнөт?
| Бута аймагы | Булакта талкууланган ыкма | Биологиялык негиз | Түшүндүрмө чеги |
|---|---|---|---|
| Лизосома / GCase | GCase активдүүлүгүн жогорулаткан кичи молекулалуу шаперондор | Лизосомалык деградацияны жакшыртуу жана α-синуклеин жүгүн азайтуу | Сереп буларды так ооруну өзгөртүүчү стандарт катары көрсөтпөйт |
| Аутофагия | TFEB активаторлору жана mTOR сигнал модуляторлору | Агрегацияланган белокторду жана жабыркаган органеллаларды тазалоону күчөтүү | Изилдөө баскычындагы механисттик ыкмалар |
| Митохондрия | PINK1–Parkin, митофагия, митохондриялык биогенез жана ROSту бутага алуу | Энергия өндүрүшүн жана сапатты көзөмөлдөөнү сактоо | Булак ар түрдүү эксперименттик ыкмаларды синтездейт; жаңы клиникалык натыйжалуулук сыноосун жүргүзбөйт |
| LRRK2 | LRRK2 киназа ингибиторлору | Везикулалык trafficking жана эндолизосомалык гомеостазды жакшыртуу | Клиникалык натыйжа бул серепте далилденген эмес |
| α-синуклеин | Агрегаттарга каршы моноклоналдык антителолор жана фибриллешүүнү бутага алган кичи молекулалар | Экстрацеллюлярдык себүүнү, таралууну же агрегацияны азайтуу | Активдүү изилдөө багыты |
| Нейроинфламмация | Микроглиялык активдешүүнү жана инфламмасома сигнал берүүсүн бутага алуу | Прогрессия менен байланышкан инфламмациялык нейротоксикалуулукту азайтуу | Сереп муну дарылоо стандарты деп жарыялабайт |
| Ичеги микробиотасы | Диета, пробиотик жана microbiota-directed ыкмалар | Перифериялык иммундук/метаболикалык сигнал берүүнү модуляциялоо | Изилденип жаткан дарылоо изилдөө багыты |
Бул Сереп Жаңы Паркинсон Дарылоосунун Натыйжалуу Экенин Көрсөтөбү?
Жок. Бул макала жаңы дарыны, биологиялык продуктуну же айкалыштырылган дарылоону көзөмөлдөнгөн клиникалык сыноодо текшербейт; терапиялык бөлүк учурдагы механисттик жана эксперименттик адабияттарды синтездеп, GCase, аутофагия, митофагия, LRRK2, α-синуклеин, инфламмация жана микробиота сыяктуу изилдөө буталарын талкуулайт. Ошондуктан “үмүт жараткан биологиялык бута” менен “оорунун жүрүшүн бейтаптарда далилденген түрдө өзгөрткөн дарылоо” бири-биринен айырмаланышы керек.
Эмне үчүн айкалыштырылган стратегиялар талкууланат?
Бири-бирин күчөткөн көптөгөн патогендик жолдордон улам бир гана бутаны оңдоо бүт системаны нормалдаштырбай калышы мүмкүн деп эсептелет. Ошондуктан сереп митохондрия, лизосома/протеостаз жана инфламмация сыяктуу бир нече жалпы патогендик түйүндөрдү бирге бутага алган ыкмалар келечекте маанилүү болушу мүмкүн экенин сунуштайт.
Келечекте кандай изилдөөлөр керек?
Булак өзгөчө патогендик окуялардын убакыттык ирети, Паркинсон подтиптеринин гетерогендүүлүгү жана перифериялык механизмдер менен борбордук нерв системасынын механизмдеринин салыштырмалуу салымы али толук чечилбегенин белгилейт. Келечекте longitudinal изилдөөлөр, multi-omics ыкмалары жана systems biology анализдери бул байланыштарды убакыт ичинде жакшыраак аныктайт деп күтүлөт.
Ооруну жакшыраак подтиптөө, биомаркерлерди иштеп чыгуу жана механизмге негизделген бейтаптарды классификациялоо precision medicine ыкмаларынын негизин түзүшү мүмкүн. Бирок булак булар азырынча келечекке багытталган изилдөө максаттары экенин ачык сактайт.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Бул иш кандай изилдөө түрүнө кирет?
Бул иш Review катары жарыяланган илимий сереп. Ал жаңы бейтап үлгүсүн, жаныбарлар когортасын, клетка культурасы экспериментин же жаңы omics маалымат топтомун түзбөйт. Макаланын илимий милдети ар кандай генетикалык, молекулалык, клеткалык, эксперименттик жана клиникалык изилдөөлөрдөн алынган маалыматтарды жалпы Паркинсон патогенези алкагында синтездөө.
Бул системалуу сереппи же мета-анализби?
Булакта PRISMA агым диаграммасы, системалуу маалымат базасын издөө протоколу, издөө даталары, ачкыч сөз стратегиясы, киргизүү/чыгаруу критерийлери, изилдөө сапатын баалоо, risk-of-bias баалоосу же мета-аналитикалык effect size эсептөөсү берилген эмес. Ошондуктан Verianla макаласы булакты системалуу сереп же мета-анализ деп атабайт.
Серептеги адабият боштугу эмнеде?
Авторлордун баштапкы көз карашы боюнча, мурунку көптөгөн серептер Паркинсондогу α-синуклеин, митохондрия, лизосома же инфламмация сыяктуу механизмдерди өзүнчө темаларда караганына карабастан, көбөйүп жаткан далилдер бул процесстердин өтө тыгыз өз ара байланышта экенин көрсөтөт. Бул макала механизмдерди өзүнчө силостор катары эмес, өз ара кайтарым байланыш системасы катары түшүндүрүүнү максат кылат.
Серептин далил булактары кандай түрлөрдөн турат?
Адабияттар генетикалык association жана геномдук изилдөөлөр, α-синуклеин биологиясы, эксперименттик жаныбар моделдери, клеткалык механизм изилдөөлөрү, адамдын дофаминергиялык клетка моделдери, лизосома жана митофагия изилдөөлөрү, multi-omics изилдөөлөрү, перифериялык орган–мээ октору, тери биопсиясы изилдөөлөрү жана терапиялык изилдөөлөр сыяктуу ар түрдүү далил катмарларынан турат. Бул ар түрдүүлүк комплекстүү синтездин күчтүү тарабы; бирок изилдөөлөрдүн методологиялары бирдей эмес.
Булакта жаңы статистикалык анализ барбы?
Жок. Макала жаңы p-маани, confidence interval, effect size, regression модели же мета-аналитикалык pooled estimate түзбөйт. Булакта математикалык формула же теңдеме жок. Ошондуктан Verianla булакка тиешеси жок статистикалык же математикалык эсеп кошпойт.
Серептин негизги синтез жыйынтыктары
- α-синуклеин агрегациясы Паркинсон патологиясынын борбордук компоненттеринин бири, бирок өзү жалгыз бүт ооруну түшүндүрбөйт.
- GBA1/GCase–α-синуклеин байланышы лизосомалык липид метаболизми менен белок агрегациясынын ортосунда эки тараптуу патогендик байланыш түзүшү мүмкүн.
- ATP13A2 жана VPS35 сыяктуу белоктор лизосомалык жана эндосомалык гомеостаздын Паркинсон патогенезиндеги маанисин колдойт.
- PINK1–Parkin жолу жабыркаган митохондрияларды митофагия аркылуу тазалоодогу борбордук сапатты көзөмөлдөө механизми.
- PINK1 же PRKN функциясынын жоголушу жабыркаган митохондриялардын жана ROSтун топтолушун көбөйтүшү мүмкүн.
- DJ-1 редокс коргонуу жана митохондриялык стресске туруктуулук үчүн маанилүү.
- Оксидативдик стресс митохондрия жана лизосома бузулушунун натыйжасы да, α-синуклеин агрегациясы менен инфламмациянын upstream күчөткүчү да болушу мүмкүн.
- Темирдин тең салмаксыздыгы жана липиддердин пероксиддениши дофаминергиялык нейрондордун оксидативдик жүгүн көбөйтүшү мүмкүн.
- Синапстык жана везикулалык trafficking бузулуулары айкын нейрон жоголушуна чейин пайда болушу мүмкүн болгон эрте патологиялык окуялардын бири.
- LRRK2, SYNJ1, DNAJC6 жана VPS35 синапстык/эндосомалык ташуу системаларынын Паркинсон патогенезиндеги маанисин колдойт.
- Микроглиялык активдешүү жана NLRP3 инфламмасомасы өнөкөт нейроинфламмациялык кайтарым байланыштарга салым кошушу мүмкүн.
- Ичеги–мээ огу маанилүү перифериялык изилдөө багыты; боор, көк боор жана тери менен байланышкан жолдор да өнүгүп жаткан кошумча модуляторлор.
- Ар башка генетикалык Паркинсон формаларынын жалпы патологиялык өзгөчөлүктөрү ар башка гендердин ошол эле клеткалык тармактарда жакындашуусу менен жарым-жартылай түшүндүрүлүшү мүмкүн.
Изилдөө колдогон жыйынтыктар
- Паркинсон оорусу көп жана өз ара байланышкан клеткалык механизмдер менен байланыштуу.
- α-синуклеин, митохондрия, лизосома, аутофагия, синапстык trafficking, редокс тең салмактуулугу жана инфламмация арасында эки тараптуу байланыштар бар.
- Паркинсон менен байланышкан гендер ар башка белокторго таасир этсе да, жалпы клеткалык сапатты көзөмөлдөө системаларында жакындаша алат.
- Дофаминергиялык нейрондордун өзгөчө физиологиялык касиеттери бул клеткаларды энергия жана протеостаз бузулууларына аялуу кылышы мүмкүн.
- Перифериялык органдар жана системалык иммунитет Паркинсон изилдөөлөрүндө эске алынышы керек болгон кошумча катмарлар.
- Ооруну өзгөртүүчү изилдөөлөр бир механизмден тышкары жалпы патогендик түйүндөрдү бутага алууга багытталууда.
Изилдөө колдобогон жыйынтыктар
- Паркинсон оорусунун бирдиктүү жана так себеби аныкталган эмес.
- Бардык Паркинсон учурларында α-синуклеин патологиясы ичегиде башталары көрсөтүлгөн эмес.
- Боор, көк боор же тери октору бардык бейтаптарда себептик баштапкы механизм экени көрсөтүлгөн эмес.
- Бир ген варианты өз алдынча бүт Паркинсон патогенезин түшүндүрөрү көрсөтүлгөн эмес.
- Сереп жаңы биомаркердин клиникалык диагноздогу тактыгын текшербейт.
- GCase шаперондорунун, TFEB/mTOR модуляторлорунун, LRRK2 ингибиторлорунун же α-синуклеин антителолорунун бул серепте ооруну өзгөртүүчү клиникалык натыйжалуулугу далилденбейт.
- Ичеги микробиотасына кийлигишүү Паркинсон оорусун алдын алары же дарылай турганы бул макалада көрсөтүлгөн эмес.
- Сереп жаңы рандомизацияланган көзөмөлдүү клиникалык изилдөө эмес.
- Сереп жаңы мета-анализ же жаңы сандык тобокелдик баалоосун сунуштабайт.
Серептин күчтүү жактары
Серептин негизги күчтүү жагы Паркинсон патогенезин бир гана молекула же органелла менен чектебегенинде. Генетикалык тобокелдик, белок агрегациясы, органелла сапатын көзөмөлдөө, клеткалык энергия, синапстык ташуу, редокс тең салмактуулугу, иммундук жооп жана перифериялык орган системалары бир алкакта байланышкан.
Экинчи күчтүү жагы — үй-бүлөлүк жана спорадикалык Паркинсон формалары жалпы патологиялык түйүндөрдө кантип жакындаша аларын түшүндүргөн механисттик алкак сунушташы.
Үчүнчү күчтүү жагы — клетка ичиндеги биологияны терапиялык буталар менен байланыштырганда келечектеги дарылоо изилдөөлөрүн бир гана “керемет бутага” негиздебегени.
Серептин негизги чектөөлөрү
Биринчи чектөө: Булак системалуу сереп методологиясын сунуштабайт. Адабият кайсы маалымат базаларынан, кайсы издөө терминдери менен жана кайсы киргизүү/чыгаруу критерийлери боюнча тандалганы билдирилбегендиктен, изилдөөнү тандоонун жана камтуунун кайталанмалуулугу системалуу review деңгээлинде эмес.
Экинчи чектөө: Бириктирилген далилдер генетикалык изилдөөлөр, жаныбар моделдери, клеткалык эксперименттер, адам тканы/биопсиясы изилдөөлөрү жана клиникалык изилдөөлөр сыяктуу ар башка далил деңгээлдеринен келет. Ар бир табылга бирдей түз клиникалык далил күчүнө ээ эмес.
Үчүнчү чектөө: Патогендик окуялардын убакыттагы чыныгы ирети азырынча так эмес. Белгилүү бир бейтапта биринчи басымдуу окуя митохондрия бузулушу, α-синуклеин агрегациясы, лизосомалык жетишсиздик же инфламмация болушу мүмкүн.
Төртүнчү чектөө: Паркинсон оорусу гетерогендүү. Ар башка генетикалык, клиникалык жана патологиялык подтиптерде ошол эле механизмдердин салыштырмалуу салмагы айырмаланышы мүмкүн.
Бешинчи чектөө: Перифериялык орган–мээ окторунун борбордук механизмдерге салыштырмалуу салымы толук чечилген эмес.
Алтынчы чектөө: Терапиялык буталардын механисттик жактан негиздүү болушу клиникалык ооруну өзгөртүүчү натыйжалуулук далилденди дегенди билдирбейт.
Келечектеги изилдөө багыттары
Булак келечекте longitudinal бейтап изилдөөлөрүн, multi-omics маалымат интеграциясын, systems biologyни, оорунун подтиптерин кеңири классификациялоону жана перифериялык-борбордук механизмдердин убакыт ичиндеги байланыштарын изилдөөнү артыкчылыктуу багыттар катары көрөт.
Бул ыкма биомаркерлерди диагноз үчүн гана эмес, бейтаптарды классификациялоо, оорунун активдүүлүгүн көзөмөлдөө жана дарылоого жоопту байкоо үчүн колдонууга мүмкүн болгон precision-medicine моделдерине негиз түзүшү мүмкүн.
Булак жана Ыкма Жөнүндө Эскертүү
Түп нускадагы аталыш: Integrated Mechanisms Driving Parkinson’s Disease Pathogenesis.
Авторлор жана ирети: Ayesha Kashif, In Sik Kim.
Тең салым: Булакта тең салым жөнүндө билдирүү жок.
Жооптуу автор: In Sik Kim.
Мекеме 1: School of Medicine, The University of Notre Dame Australia, Sydney 2010, Australia.
Мекеме 2: Department of Senior Healthcare, Graduate School, Eulji University, Uijeongbu 11759, Korea.
Мекеме 3: Department of Biomedical Laboratory Science, College of Health Science, Eulji University, Uijeongbu 11759, Korea.
Журнал: Biomedical Science Letters.
Жарыялаган илимий уюм: The Korean Society for Biomedical Laboratory Sciences.
Том / сан / беттер: 32(2), 133–142.
DOI: 10.15616/BSL.2026.32.2.133.
Жарыялоо мезгили: 2026-жылдын июнь саны.
Received: 2-июнь 2026.
Revised: 15-июнь 2026.
Accepted: 17-июнь 2026.
Булак түрү: Review / илимий сереп.
Рецензиялоо абалы: Бул жарыяланган журналдык сереп жана Received–Revised–Accepted жарыялоо процесси билдирилген. Булак PDF өзүнчө “peer-reviewed” белгисин бербейт.
Preprint абалы: Берилген булак preprint эмес, жарыяланган журнал PDFи.
Лицензия: Creative Commons Attribution Non-Commercial. Берилген PDF лицензиянын версия номерин ачык жазбагандыктан, Verianla версия номерин ойлоп чыгарбайт.
eISSN: 2288-7415.
ORCID: Ayesha Kashif — 0000-0002-2891-044X; In Sik Kim — 0000-0001-6072-8990.
Acknowledgement: None.
Funding: None.
Кызыкчылыктардын кагылышы: Авторлор макалага байланыштуу потенциалдуу кызыкчылыктардын кагылышын билдиришкен эмес.
Авторлордун салымы: Conceptualization: Ayesha Kashif; Supervision: In Sik Kim; Writing – original draft: Ayesha Kashif.
Маалыматтын жеткиликтүүлүгү: Булакта өзүнчө Data Availability Statement жок. Бул review макаласы болгондуктан жаңы оригиналдуу эксперименттик маалымат топтому билдирилбейт.
Адабияттар: Сереп 32 библиографиялык булакка негизделген.
Системалуу сереп абалы: PRISMA, системалуу издөө протоколу, киргизүү/чыгаруу критерийлери, risk-of-bias же мета-анализ билдирилбегендиктен системалуу сереп катары белгиленген эмес.
Формула/статистика абалы: Булакта математикалык теңдеме, жаңы статистикалык модель, жаңы p-маани же мета-аналитикалык effect size жок. Verianla булакта жок формуланы жараткан эмес.
Негизги генетикалык түйүндөр: SNCA, LRRK2, GBA1, PINK1, PRKN, DJ-1, VPS35 жана ATP13A2.
Негизги патогендик процесстер: α-синуклеин агрегациясы; лизосомалык бузулуу; аутофагия жана митофагия жетишсиздиги; митохондриялык функциянын жоголушу; оксидативдик стресс жана редокс тең салмаксыздыгы; синапстык жана эндосомалык trafficking бузулуулары; нейроинфламмация.
Перифериялык механизмдер: Ичеги–мээ огу; өнүгүп жаткан боор–мээ, көк боор–мээ жана тери–мээ байланыштары.
Терапиялык изилдөө багыттары: GCase/лизосома, TFEB жана mTOR аркылуу аутофагия, PINK1–Parkin жана митохондрия сапатын көзөмөлдөө, LRRK2 киназа, α-синуклеин агрегациясы/таралышы, микроглиялык жана инфламмасома сигнал берүүсү, ичеги микробиотасы.
Критикалык клиникалык чек: Сереп жаңы дары натыйжалуулугун же бейтапты дарылоо ийгилигин көрсөтпөйт. Терапиялык ыкмалар адабияттагы изилдөө багыттары катары бааланган.
Критикалык себептүүлүк чеги: Өз ара байланышкан механизмдер күчтүү биологиялык жана эксперименттик колдоого ээ болгону менен, ар бир Паркинсон бейтабында бир эле окуя биринчи себеп экени же бардык механизмдер бирдей иретте өнүгөрү көрсөтүлгөн эмес.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген