


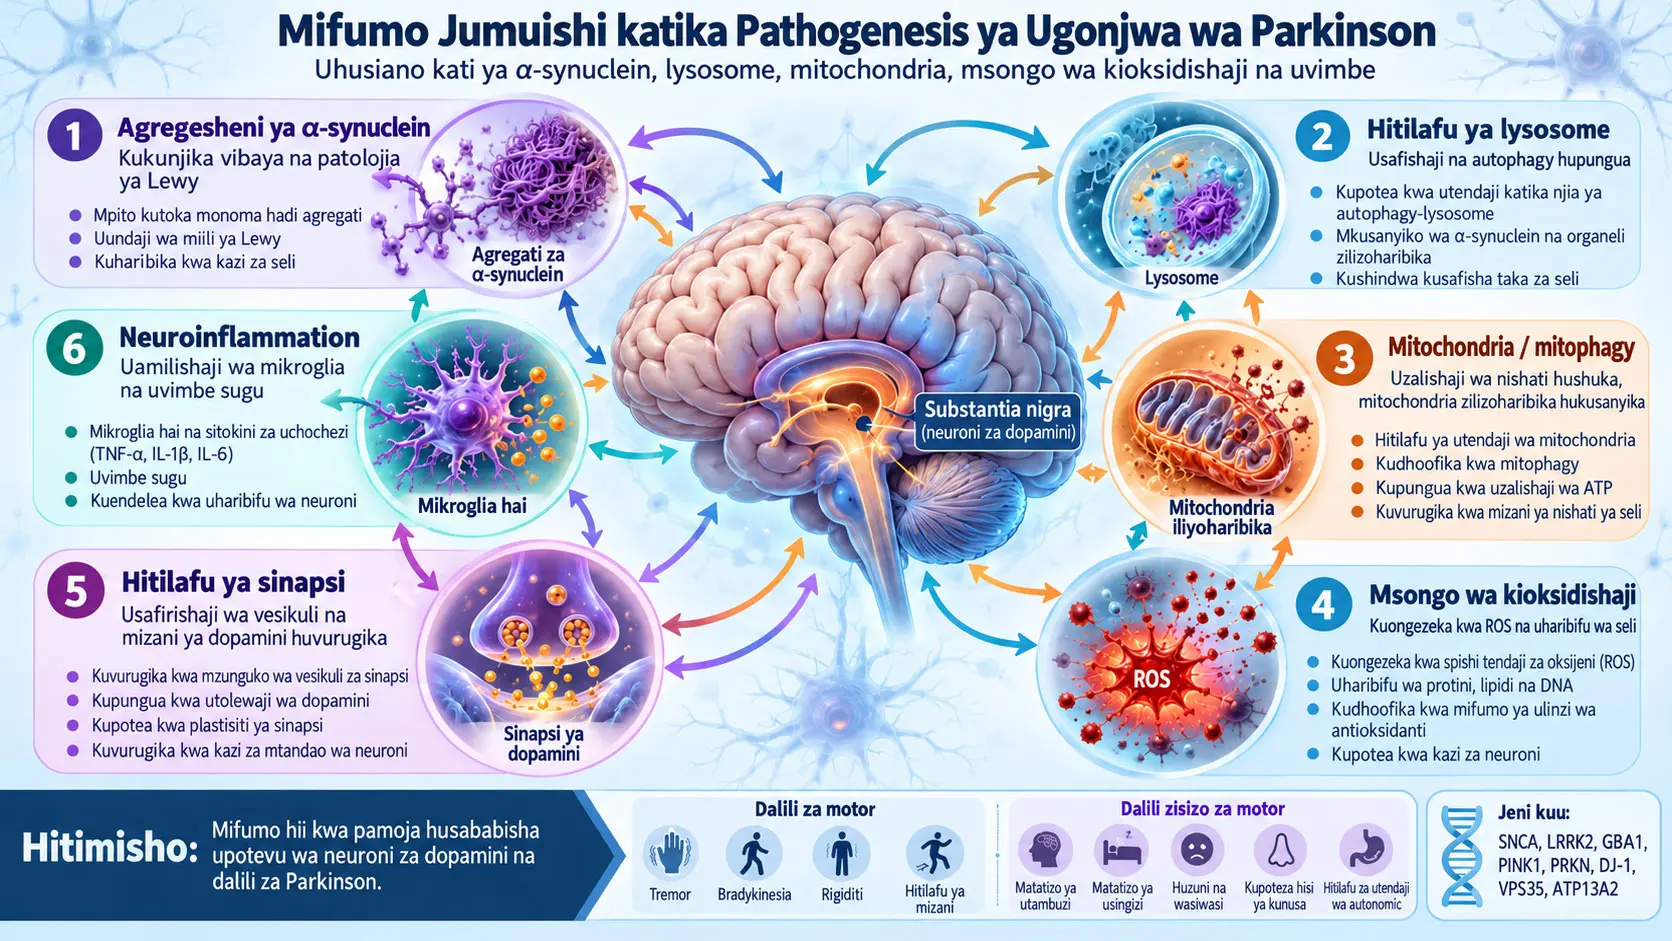
Ugonjwa wa Parkinson (Parkinson’s disease, PD), ni ugonjwa wa neva unaoendelea kudhoofika unaojulikana kwa upotevu unaoendelea wa neuroni za dopamini katika eneo la substantia nigra pars compacta na mkusanyiko wa α-synuclein iliyojikusanya katika miili ya Lewy na neuriti za Lewy. Chanzo hiki si jaribio jipya wala utafiti wa kliniki wa tiba, bali ni mapitio yanayounganisha mifumo ya kijeni na ya seli inayoeleza pathogenesis ya Parkinson. Hoja kuu ya mapitio ni kwamba ugonjwa wa Parkinson hautokani na hitilafu moja ya molekuli; badala yake hutokea kutokana na mtandao wa seli wenye tabaka nyingi ambamo agregesheni ya α-synuclein, hitilafu ya lysosome, kasoro ya autophagy na mitophagy, kupotea kwa utendaji wa mitochondria, msongo wa kioksidishaji, hitilafu ya usafirishaji wa sinapsi na vesikuli, pamoja na neuroinflammation sugu huimarishana.
Chanzo hakitathmini ugonjwa wa Parkinson kama tatizo la harakati pekee. Pamoja na dalili za motor kama bradykinesia, rigidity, tremor ya mapumziko na kutokuwa thabiti kwa mkao, matokeo yasiyo ya motor kama kuharibika kwa utambuzi, hitilafu ya utendaji wa mfumo wa autonomic, matatizo ya usingizi, huzuni, kupoteza uwezo wa kunusa na dalili za gastrointestinal pia ni sehemu ya picha ya ugonjwa. Mapitio yanasisitiza kwamba baadhi ya dalili zisizo za motor zinaweza kuanza miaka kabla ya matatizo makubwa ya motor, na hivyo kuonyesha kuwa mchakato wa kipatholojia unaweza kuanza muda mrefu kabla ya utambuzi wa kliniki.
Katika kiwango cha kijeni, SNCA, LRRK2, GBA1, PINK1, PRKN, DJ-1, VPS35 na ATP13A2 ni jeni zinazohusishwa na Parkinson ambazo, ingawa husimba protini tofauti, athari zake mara nyingi hukutana katika mifumo ya pamoja ya seli. Mifumo hii inajumuisha udhibiti wa ubora wa mitochondria, uharibifu wa lysosome, autophagy, mzunguko wa vesikuli za sinapsi, usafirishaji wa endosome, usawaziko wa redox na udhibiti wa ubora wa protini. Badala ya kuorodhesha jeni hizi kama “jeni za Parkinson” zinazojitegemea, mapitio huzichukulia kama vinundu vya kibiolojia ambavyo vinapoharibika hudhoofisha sehemu tofauti za mtandao uleule wa kipathojeni.
α-synuclein ni mojawapo ya protini zilizo katikati ya mtandao huu. Katika hali za kawaida, α-synuclein iliyopo katika eneo la presynaptic huchangia katika kuunganika kwa vesikuli za sinapsi, udhibiti wa kompleks ya SNARE na utolewaji wa neurotransmitter. Katika hali za kipatholojia, konformeshini ya protini inaweza kubadilika; oligomer, protofibril na fibril zinaweza kutokea na hatimaye kuwa sehemu ya patholojia ya Lewy. Msongo wa kioksidishaji, hitilafu ya mitochondria, mabadiliko ya metaboli ya lipidi, oksidesheni ya dopamini na usafishaji duni wa lysosome vinaweza kuwezesha agregesheni ya α-synuclein.
Uhusiano kati ya mfumo wa lysosome na α-synuclein ni wa pande mbili. Kwa mfano, kupungua kwa shughuli ya glucocerebrosidase (GCase) kunakohusiana na kupotea kwa utendaji wa GBA1 kunaweza kusababisha mkusanyiko wa glucosylceramide na sphingolipid zinazohusiana; mazingira haya yanaweza kuwezesha oligomerization ya α-synuclein. Kwa upande mwingine, α-synuclein iliyojikusanya inaweza kuvuruga usafirishaji wa GCase na ukomavu wa lysosome, na kuunda mzunguko mwingine mbaya. Kwa hiyo, hitilafu ya lysosome haichukuliwi tu kama matokeo ya mkusanyiko wa α-synuclein, bali pia kama utaratibu wa upstream unaoweza kuongeza agregesheni.
Katika udhibiti wa ubora wa mitochondria, njia ya PINK1–Parkin ni muhimu hasa. Katika mitochondria yenye afya, protini PINK1 huingizwa ndani na kuvunjwa haraka. Mitochondria inapopoteza potenshali ya membrani, PINK1 hujikusanya kwenye membrani ya nje ya mitochondria, hufosforilisha ubiquitin na kuvuta Parkin kwenye eneo hilo. Parkin iliyoamilishwa huubiquitinisha protini za membrani ya nje ya mitochondria na kusaidia kuondolewa kwa kuchagua kwa mitochondria iliyoharibika kupitia mitophagy. Mabadiliko ya PINK1 au PRKN yanapovuruga mzunguko huu wa udhibiti wa ubora, mitochondria zilizoharibika zinaweza kujikusanya, uzalishaji wa ATP unaweza kupungua, usawaziko wa kalsiamu unaweza kuvurugika na reactive oxygen species zinaweza kuongezeka.
Msongo wa kioksidishaji ni matokeo na pia kichocheo cha mtandao huohuo. Mitochondria zilizoharibika zinaweza kuongeza uzalishaji wa ROS; ROS inaweza kuharibu protini, lipidi za membrani, asidi za nukleiki na vipengele vya mitochondria. Uharibifu wa kioksidishaji unaporahisisha kukunjika vibaya na agregesheni ya α-synuclein, α-synuclein iliyojikusanya nayo inaweza kuvuruga upumuaji wa mitochondria na uadilifu wa membrani. Hivyo, msongo wa kioksidishaji na agregesheni ya protini huunda mzunguko wa mrejesho unaoimarishana.
Mapitio pia yanajumuisha kutokuwiana kwa chuma katika mtandao wa msongo wa kioksidishaji. Kuongezeka kwa chuma katika substantia nigra kunaweza kusaidia kutokea kwa radicali za hydroxyl zenye reactivity kubwa kupitia kemia ya Fenton. Utaratibu huu unaweza kuunda mzigo wa ziada wa kioksidishaji unaoweza kuongeza peroxidation ya lipidi, oksidesheni ya protini na uharibifu wa mitochondria.
Neuroinflammation pia haionekani kama matokeo ya kimya ya patholojia. Microglia na astroglia zilizoamilishwa zinaweza kutoa cytokine za pro-inflammatory, ROS, nitric oxide na vipatanishi vinavyohusishwa na inflammasome. α-synuclein iliyokunjika vibaya inaweza kuchochea njia za innate immune, ikiwemo inflammasome ya NLRP3. Damage-associated molecular patterns kama mitochondrial DNA inayotolewa kutoka mitochondria zilizoharibika pia inaweza kuongeza uamilishaji wa microglia. Uvimbe sugu huunda tena mrejesho chanya kwa kusababisha msongo zaidi wa kioksidishaji na hitilafu ya mitochondria.
Mapitio hayajawekewa mipaka na mfumo mkuu wa neva pekee. Mhimili wa utumbo–ubongo ndio utaratibu wa pembeni unaojadiliwa kwa kina zaidi; upenyezaji wa utumbo, microbiota ya utumbo, kinga ya pembeni na patholojia ya α-synuclein katika mfumo wa neva wa enteric hutathminiwa ndani ya muktadha huu. Chanzo pia kinajadili mahusiano ya ini–ubongo, wengu–ubongo na ngozi–ubongo kama maeneo ya utafiti yanayoendelea kukua. Haya hayapaswi kuchukuliwa kama mifumo ya kuanza iliyo ya hakika na inayotumika kwa wagonjwa wote, bali kama vidhibiti vya pembeni vinavyoweza kuingiliana na patholojia ya kati.
Ujumbe wa kitabibu wa mapitio haya si kwamba “tiba yenye shabaha moja imepatikana”. Mbinu nyingi zinachunguzwa, kama kuongeza shughuli ya GCase, kuimarisha autophagy na utendaji wa lysosome, kuunga mkono mitophagy ya PINK1–Parkin, kuzuia shughuli ya kinase ya LRRK2, kulenga agregesheni au usambazaji wa α-synuclein, kupunguza shughuli ya microglia/inflammasome na kurekebisha microbiota ya utumbo. Hata hivyo, chanzo hakizitolei kama tiba za kawaida zinazorekebisha ugonjwa ambazo zimethibitishwa kliniki.
Muundo mkuu wa kipatholojia katika ugonjwa wa Parkinson ni upi?
Mojawapo ya sifa za kawaida za neuropatholojia ya ugonjwa wa Parkinson ni upotevu unaoendelea wa neuroni za dopamini katika eneo la substantia nigra pars compacta. Neuroni hizi ni sehemu kuu za mfumo wa nigrostriatal unaopeleka dopamini kwenye striatum. Upotevu wa dopamini huvuruga utendaji wa mizunguko ya basal ganglia inayohusika katika kuanzisha na kudhibiti harakati, na hivyo kuchangia dalili za motor.
Sifa kuu ya pili ni kuwepo kwa α-synuclein iliyojikusanya ndani ya miili ya Lewy na neuriti za Lewy. Miili ya Lewy inaweza kuchukuliwa kuwa mikusanyiko ya protini ya kipatholojia katika mwili wa neuroni, na neuriti za Lewy kuwa mikusanyiko katika michomo ya neuroni. Hata hivyo, mtazamo mkuu wa mapitio hauchukulii sifa hizi mbili za kipatholojia kuwa maelezo kamili ya ugonjwa; chini na kuzunguka sifa hizi kuna mifumo mingi ya udhibiti wa ubora wa seli.
Kwa nini neuroni za dopamini ni dhaifu hasa?
Chanzo kinasisitiza kwamba neuroni za dopamini za substantia nigra zina matawi marefu na mapana ya axon, idadi kubwa ya terminali za sinapsi, mahitaji makubwa ya nishati, shughuli ya autonomic pacemaking inayotegemea kalsiamu na mzigo wa kudumu wa kioksidishaji unaohusiana na metaboli ya dopamini. Sifa hizi huunda utegemezi mkubwa sana kwa utendaji wa mitochondria, udhibiti wa ubora wa protini na mifumo ya usafirishaji ndani ya seli.
Kwa hiyo, hata hitilafu ndogo na sugu katika mojawapo tu ya mifumo ya mitochondria, lysosome au usafirishaji wa vesikuli inaweza kuchangia mkusanyiko wa mzigo wa seli kwa miaka. Mapitio yanaeleza uwezekano wa kuchaguliwa wa neuroni kuathirika kupitia mizigo hii ya kifiziolojia inayoongezeka pamoja.
Kwa Nini α-Synuclein ni ya Kati katika Ugonjwa wa Parkinson?
α-synuclein ni protini ambayo kwa kawaida huchangia mpangilio wa vesikuli za presynaptic na utolewaji wa neurotransmitter, lakini inapokunjika vibaya inaweza kuunda oligomer, protofibril na fibril; sababu ya kuwa ya kati katika pathogenesis ya Parkinson ni kwamba agregesheni yake inaweza kuvuruga mifumo ya mitochondria, lysosome, autophagy na usafirishaji wa sinapsi, na hitilafu katika mifumo hii pia zinaweza kuongeza zaidi agregesheni ya α-synuclein.
Kazi ya kawaida ya α-synuclein ni ipi?
α-synuclein ni protini yenye mienendo inayopatikana hasa katika eneo la presynaptic. Inaweza kubadilika kati ya hali za monomeric na multimeric na kuchangia michakato kama kuunganika kwa vesikuli za sinapsi, mwingiliano na membrani, uundaji wa kompleks ya SNARE na udhibiti wa utolewaji wa neurotransmitter.
Kompleks ya SNARE ni nini?
Kompleks ya SNARE ni mashine ya protini inayowezesha membrani za ndani ya seli, hasa vesikuli za sinapsi, kuungana na membrani lengwa. Katika terminali ya neva, kuungana kwa vesikuli inayobeba neurotransmitter na membrani ya seli na kutoa yaliyomo kwenye ufa wa sinapsi hutegemea mifumo ya aina hii ya membrane fusion. Mojawapo ya kazi za kifiziolojia za α-synuclein ni kuchangia udhibiti wa mfumo huu wa vesikuli.
Oligomer, protofibril na fibril zinamaanisha nini?
Oligomer, ni muundo wa kati wa agregati ambamo idadi ndogo ya molekuli za α-synuclein huungana. Protofibril, hurejelea miundo ya kati iliyoandaliwa zaidi na iliyorefuka kuliko oligomer; fibril hurejelea agregati za filament zilizo ndefu na zenye mpangilio zaidi. Istilahi hizi zinaeleza hali tofauti za kimuundo za protini ileile katika mchakato wa agregesheni.
Chanzo kinaripoti kwamba utofauti wa kimuundo umeonekana kwa cryo-electron microscopy katika fibril za α-synuclein zilizopatikana kutoka synucleinopathy tofauti, na kwamba tofauti hizi zinaweza kuwa mojawapo ya sababu zinazowezekana za utofauti wa kliniki. Mapitio hayawasilishi tofauti hizi za kimuundo peke yake kama sababu iliyothibitishwa inayoamua fenotipu ya kliniki.
“Usambazaji unaofanana na prion” unamaanisha nini?
Kauli ya usambazaji unaofanana na prion inaeleza wazo kwamba aina za α-synuclein zilizokunjika vibaya zinaweza kuhamishwa kutoka neuroni moja hadi nyingine na kuchochea agregesheni mpya ya α-synuclein katika seli inayopokea. Matumizi haya hayamaanishi kwamba ugonjwa wa Parkinson ni ugonjwa wa kawaida wa prion unaoambukiza; mlinganisho unahusu utaratibu ambao kukunjika vibaya kwa protini kunaweza kuenea kati ya seli kwa namna inayofanana na kiolezo.
Lipidi za membrani zinawezaje kuathiri α-synuclein?
α-synuclein inaweza kuingiliana hasa na membrani za phospholipid zenye curvature kubwa. Mabadiliko katika muundo wa membrani au metaboli ya lipidi za seli yanaweza kuvuruga usawaziko wa mwingiliano wa protini na membrani na kuathiri mwelekeo wa oligomerization/fibrillization. Hivyo, uhusiano wa moja kwa moja wa seli huundwa kati ya homeostasis ya lipidi na agregesheni ya protini.
Proteostasis ni nini?
Proteostasis, ni uwezo wa seli kudumisha usawaziko kati ya usanisi wa protini, kukunjika kwa usahihi, usafirishaji, udhibiti wa ubora na, inapohitajika, uvunjaji. Proteostasis inapoharibika katika pathogenesis ya Parkinson, usafishaji wa protini zilizokunjika vibaya na zilizoharibika unaweza kutotosha; mkusanyiko wa α-synuclein pia unaweza kuongeza zaidi mzigo wa mifumo ya udhibiti wa ubora wa protini.
Kazi ya lysosome ni nini?
Lysosome ni organelle ya uharibifu yenye mazingira ya asidi ambayo huvunja protini, lipidi na organelle zilizoharibika ndani ya seli. Kwa kuwa neuroni za muda mrefu ambazo hazigawanyiki lazima zisafishe protini na organelle zilizoharibika kila wakati, huwa nyeti hasa kwa hitilafu sugu katika mfumo wa lysosome.
Autophagy ni nini?
Autophagy ni jina la jumla la mifumo ya udhibiti wa ubora ambayo seli hutumia kuelekeza nyenzo zake za cytoplasm kwenye uharibifu wa lysosome. Ni muhimu kwa kuondoa agregati za protini zilizoharibika na organelle. Mtiririko wa autophagy haujumuishi tu kutengenezwa kwa autophagosome, bali pia kukamilika kwa usafirishaji na kuungana na lysosome.
Autophagy inayopatanishwa na chaperone ni nini?
Chaperone-mediated autophagy ni njia ya uharibifu wa kuchagua ambayo protini maalum za cytosol hutambuliwa na protini za chaperone na kusafirishwa hadi membrani ya lysosome. Aina za kipatholojia za α-synuclein zinaweza kuingiliana kwa njia isiyo na tija na lysosome-associated membrane protein 2A (LAMP2A), kuzuia njia hii na kupunguza usafishaji wa protini zilizokunjika vibaya.
Kwa nini GBA1 na GCase ni muhimu?
GBA1, ni jeni inayohusishwa na kimeng’enya cha lysosomal glucocerebrosidase, yaani GCase. Mapitio yanaeleza mabadiliko ya GBA1 kama mojawapo ya vihatarishi vikali zaidi vya kijeni kwa ugonjwa wa Parkinson. Shughuli ya GCase inapopungua, metaboli ya lysosome ya glucosylceramide na sphingolipid zinazohusiana inaweza kuvurugika.
Mkusanyiko wa lipidi hizi unaweza kuwezesha oligomerization na fibrillization ya α-synuclein. Kwa upande mwingine, α-synuclein iliyojikusanya inaweza kuvuruga usafirishaji wa ndani ya seli wa GCase na ukomavu wa lysosome. Hivyo, uhusiano wa GBA1/GCase–α-synuclein huunda mzunguko wa kipathojeni wa pande mbili.
ATP13A2 hufanya nini?
ATP13A2 ni protini inayohusiana na homeostasis ya ioni na polyamine za lysosome, uacidishaji wa lysosome na uharibifu wa autophagy. Kupotea kwa utendaji wa ATP13A2 kunaweza kuvuruga mazingira ya kikemia na uwezo wa usafishaji wa lysosome, na kuongeza unyeti kwa msongo wa kioksidishaji na uharibifu wa seli.
VPS35 na mfumo wa retromer ni nini?
VPS35 ni mojawapo ya vipengele muhimu vya kompleks ya urejelezaji wa endosome inayoitwa retromer. Retromer huchangia kurudisha protini maalum kutoka endosome hadi malengo sahihi ya seli. Hitilafu za VPS35 zinaweza kuathiri endosomal sorting, usafirishaji wa vimeng’enya vya lysosome na njia zinazohusiana na autophagy.
Njia ya PINK1–Parkin Husafishaje Mitochondria Zilizoharibika?
Njia ya PINK1–Parkin ni mfumo wa udhibiti wa ubora wa mitochondria unaotambua mitochondria zilizopoteza potenshali ya membrani na kuzielekeza kwenye mitophagy kupitia ishara zinazotegemea ubiquitin; PINK1, ambayo huvunjwa haraka katika mitochondria yenye afya, hujikusanya kwenye membrani ya nje ya mitochondria iliyoharibika, hufosforilisha ubiquitin, huamilisha Parkin na kuwezesha kuondolewa kwa kuchagua kwa organelle iliyoharibika.
Mitophagy ni nini?
Mitophagy, ni aina ya kuchagua ya autophagy inayolenga hasa mitochondria zilizoharibika au zisizofanya kazi. Lengo ni kuzuia mitochondria zinazozalisha ATP kidogo na ROS nyingi kupita kiasi zisijikusanye ndani ya seli.
Ni nini hutokea kwa PINK1 katika mitochondria ya kawaida?
Potenshali ya membrani ya mitochondria inapokuwa nzuri, PINK1 huingizwa ndani ya mitochondria na kuvunjwa haraka. Kwa hiyo, hakuna mkusanyiko mkubwa wa PINK1 kwenye membrani ya nje ya mitochondria.
Ni nini hubadilika katika mitochondria iliyoharibika?
Mitochondria inapopoteza potenshali ya membrani, uingizaji wa kawaida wa PINK1 huvurugika na protini hujikusanya kwenye membrani ya nje ya mitochondria. Hapo PINK1 hufosforilisha ubiquitin na kusaidia Parkin ya cytosol kujikusanya kwenye mitochondria iliyoharibika.
Parkin hufanya nini?
Parkin, inayosimbwa na PRKN, ni E3 ubiquitin ligase. Inapoamilishwa, huubiquitinisha protini kwenye membrani ya nje ya mitochondria na kuupa mfumo wa udhibiti wa ubora wa seli ishara kwamba “mitochondria hii imeharibiwa”. Hivyo, organelle inaweza kuelekezwa kwenye mfumo wa usafishaji wa autophagy.
Ni nini hutokea PINK1 au PRKN ikiharibika?
Mabadiliko ya PINK1 au PRKN yanaweza kupunguza ufanisi wa mitophagy. Mitochondria zisizofanya kazi zinapojikusanya, oxidative phosphorylation inaweza kudhoofika, uzalishaji wa ATP unaweza kupungua, uzalishaji wa ROS unaweza kuongezeka na homeostasis ya kalsiamu inaweza kuvurugika. Mitochondria zilizoharibika pia zinaweza kutoa ishara za pro-apoptotic na vipengele vya mitochondria vinavyoweza kuchochea uvimbe.
Jukumu la DJ-1 ni nini?
DJ-1 ni protini inayohusika katika ulinzi wa antioxidant wa seli na udhibiti wa redox wa mitochondria. Kupotea kwa utendaji wa DJ-1 kunaweza kupunguza uwezo wa seli wa kubafa msongo wa kioksidishaji na kuongeza unyeti kwa uharibifu wa mitochondria.
Msongo wa kioksidishaji ni nini?
Msongo wa kioksidishaji ni hali ambapo reactive oxygen species zinazozalishwa katika seli huzidi uwezo wa ulinzi wa antioxidant. ROS si molekuli zenye madhara kabisa wala zisizohitajika kabisa; katika viwango vya chini zinaweza kushiriki katika signalization ya seli. Tatizo hutokea usawaziko kati ya uzalishaji na usafishaji unapovurugika.
Kwa nini ROS inaweza kuongezeka katika ugonjwa wa Parkinson?
Hitilafu ya mnyororo wa usafirishaji wa elektroni wa mitochondria, oksidesheni ya dopamini, kutokuwiana kwa chuma, sumu za mazingira na uamilishaji sugu wa seli za uvimbe ni mifumo inayoweza kuongeza mzigo wa ROS. Sumu za mazingira kama Rotenone na paraquat pia zinajadiliwa katika mapitio kama mifano inayoweza kuvuruga upumuaji wa mitochondria na usawaziko wa redox.
Peroxidation ya lipidi ni nini?
Peroxidation ya lipidi ni mchakato ambapo hasa lipidi za membrani zenye unsaturation nyingi huingia katika athari za mnyororo wa kioksidishaji kutokana na reactive oxygen species. Mchakato huu unaweza kuvuruga uadilifu wa membrani, mienendo ya vesikuli na mifumo ya signalization ya seli. Mapitio yanachukulia peroxidation ya lipidi kama mojawapo ya matokeo ya seli ya msongo wa kioksidishaji.
Kwa nini chuma na kemia ya Fenton ni muhimu?
Chuma huru au kisichodhibitiwa ipasavyo kinaweza kuitikia na vioksidishaji kama hydrogen peroxide na kuwezesha kutokea kwa radicali za hydroxyl zenye reactivity kubwa sana. Mtandao huu wa athari unajulikana kama kemia ya Fenton. Chanzo kinatathmini mkusanyiko wa chuma katika substantia nigra kama mojawapo ya mifumo inayoweza kuongeza uharibifu wa kioksidishaji na hitilafu ya mitochondria.
Kwa nini hitilafu ya sinapsi inaweza kutokea mapema?
Mawasiliano ya sinapsi yanaweza kuvurugika kabla neuroni haijafa kabisa. Kwa kuwa α-synuclein hushiriki katika mpangilio wa kawaida wa vesikuli za sinapsi, agregesheni ya protini inaweza kuathiri vesicle clustering, docking, recycling na utolewaji wa neurotransmitter. Dopamini kubaki zaidi katika cytosol nje ya vesikuli kunaweza kuongeza oksidesheni ya dopamini na kuunda mzigo mpya wa kioksidishaji.
LRRK2 hufanya nini?
LRRK2 ni kinase inayoweza kufosforilisha malengo mengi ya seli na hushiriki katika endocytosis ya vesikuli za sinapsi, mpangilio wa cytoskeleton, na udhibiti wa trafiki ya membrani za endosome na lysosome. Shughuli ya kinase ya LRRK2 iliyo juu kupita kiasi na inayohusishwa na ugonjwa inaweza kuvuruga vesicle recycling na homeostasis ya endolysosome.
Kwa nini SYNJ1 na DNAJC6 ni muhimu?
SYNJ1 hushiriki katika metaboli ya phosphoinositide na endocytosis ya vesikuli za sinapsi. DNAJC6 inahusishwa na mchakato wa uncoating wa vesikuli zilizofunikwa na clathrin. Hitilafu katika protini hizi zinaweza kuvuruga hatua tofauti za urejelezaji wa vesikuli za sinapsi.
Neuroinflammation ni nini?
Neuroinflammation ni uamilishaji sugu au usio na mpangilio wa njia za signalization za uvimbe katika seli za kinga na glia za mfumo mkuu wa neva. Microglia ni seli kuu za kinga zinazokaa kwenye ubongo; astroglia ni seli za glia zinazoshiriki katika udhibiti wa kimetaboli na kimuundo wa mazingira ya neuroni.
Inflammasome ya NLRP3 ni nini?
Inflammasome ya NLRP3 ni kompleks ya innate immune yenye protini nyingi inayotambua ishara za hatari za seli na kuchangia uamilishaji wa mwitikio wa uvimbe. Chanzo kinaripoti kwamba α-synuclein iliyokunjika vibaya inaweza kuamilisha njia za innate immune, ikiwemo NLRP3, na kusaidia mwitikio sugu wa microglia.
DAMP ni nini?
Damage-associated molecular patterns (DAMP) ni ishara za ndani za molekuli zinazoweza kuruhusu mfumo wa kinga kutambua uharibifu wa seli bila maambukizi. Mitochondrial DNA na vipengele vingine vya mitochondria vinavyotolewa kutoka mitochondria zilizoharibika vinaweza kutenda kama ishara za aina hii za hatari.
Mhimili wa utumbo–ubongo unashughulikiwaje?
Mapitio yanajadili kwamba mabadiliko katika microbiota ya utumbo yanaweza kuathiri upenyezaji wa utumbo na uamilishaji wa kinga ya pembeni, na yanaweza kuwezesha mkusanyiko wa α-synuclein katika mfumo wa neva wa enteric. Katika modeli ya “Body-first”, inadhaniwa kwamba aina za α-synuclein za kipatholojia zinazotokea pembeni zinaweza kusafiri kando ya neva ya vagus hadi shina la ubongo na maeneo ya kati yanayohusiana.
Modeli hii haithibitishi kwamba ugonjwa wa wagonjwa wote wa Parkinson huanza kwenye utumbo. Chanzo huiwasilisha kama modeli maalum ya maendeleo ya ugonjwa.
Mhimili wa ini–ubongo ni nini?
Ini linaweza kuathiri kinga ya mfumo mzima na msongo wa kioksidishaji kupitia ishara za kimetaboli na za uvimbe. Mapitio yanajadili ushahidi unaoendelea kujitokeza kwamba hitilafu ya utendaji wa ini, hasa inapokuwa pamoja na magonjwa ya kimetaboli, inaweza kuhusishwa na uamilishaji wa microglia na patholojia ya α-synuclein.
Kwa nini mhimili wa wengu–ubongo unajadiliwa?
Wengu ni kiungo muhimu katika kudhibiti seli za kinga za pembeni na mazingira ya cytokine. Katika modeli za majaribio, imeripotiwa kwamba splenic immune-cell activation na kutokuwepo kwa mpangilio wa cytokine kunaweza kuimarisha miitikio ya kati ya neuroinflammation. Kwa hiyo, mapitio yanauchukulia wengu kama mojawapo ya vidhibiti vinavyowezekana vya mtandao wa uvimbe wa mfumo mzima katika Parkinson.
Kwa nini ngozi inakuwa muhimu katika utafiti wa biomarker za Parkinson?
Kuonyeshwa kwa mkusanyiko wa α-synuclein katika nyuzi za neva za ngozi za pembeni kunaunga mkono wazo kwamba biopsy ya ngozi inaweza kuwa chanzo kinachofikika cha biomarker kwa synucleinopathy ya mfumo mzima. Mapitio yanawasilisha hili kama eneo la biomarker linaloendelea kukua; halifafanui biopsy ya ngozi pekee kama kipimo cha kawaida na cha uhakika cha utambuzi wa Parkinson.
Kwa Nini Mifumo katika Ugonjwa wa Parkinson Huchukuliwa kama Mtandao Unaolishana?
Kwa sababu hitilafu ya usafishaji wa lysosome inaweza kuongeza mkusanyiko wa α-synuclein na mitochondria zilizoharibika; mitochondria zilizoharibika zinaweza kuongeza uzalishaji wa ROS; ROS inaweza kuongeza kukunjika vibaya kwa α-synuclein na uharibifu wa lysosome; α-synuclein iliyojikusanya inaweza kuvuruga mitochondria na mifumo ya usafirishaji wa sinapsi; na uvimbe sugu unaweza kuongeza tena uharibifu wa kioksidishaji. Mahusiano haya ya pande mbili huunda mtandao wa mrejesho wa kipathojeni unaojiimarisha badala ya mnyororo wa mstari wa mwelekeo mmoja.
Multi-omics inamaanisha nini?
Multi-omics ni mbinu ya kuchunguza tatizo lilelile la kibiolojia kwa kutathmini pamoja genomics, transcriptomics, proteomics, metabolomics au tabaka nyingine kubwa za data za molekuli. Mapitio yanaeleza kwamba tafiti za multi-omics katika tishu za Parkinson na modeli za majaribio zinaunga mkono uwezekano wa hitilafu za proteostasis, metaboli ya mitochondria, autophagy, homeostasis ya lipidi na utendaji wa sinapsi kutokea kwa wakati mmoja.
Kwa nini sababu tofauti za kijeni zinaweza kusababisha patholojia inayofanana ya Parkinson?
Kwa sababu ingawa mabadiliko tofauti huathiri protini tofauti, protini hizi zinaweza kukutana katika mitandao ileile ya msingi ya seli. GBA1 inahusishwa zaidi na metaboli ya lysosome, PINK1/PRKN na udhibiti wa ubora wa mitochondria, LRRK2 na vesicular trafficking, na SNCA na biolojia ya α-synuclein; hata hivyo, kuharibika kwa mfumo mmoja kunaweza kusababisha msongo wa pili katika mifumo mingine. Muunganiko huu husaidia kueleza kwa nini sifa zinazofanana za neurodegeneration zinaweza kuonekana katika aina za Parkinson zenye sababu tofauti za kijeni.
Mahusiano ya jeni–utaratibu yanafupishwaje katika mapitio?
| Mfumo wa seli | Jeni/protini kuu | Tatizo kuu inapoharibika | Uhusiano na njia nyingine |
|---|---|---|---|
| Proteostasis ya α-synuclein | SNCA | Kukunjika vibaya, oligomerization, fibril na patholojia ya Lewy | Inaweza kuathiri mitochondria, lysosome, autophagy na mifumo ya vesikuli za sinapsi |
| Utendaji wa lysosome | GBA1, ATP13A2, VPS35 | Hitilafu ya uharibifu, homeostasis ya lipidi na usafirishaji wa vimeng’enya | Huathiri mkusanyiko wa α-synuclein na udhibiti wa ubora wa mitochondria |
| Udhibiti wa ubora wa mitochondria | PINK1, PRKN, DJ-1 | Kupungua kwa mitophagy, kuongezeka kwa ROS, matatizo ya upumuaji na nishati | Inaweza kuimarisha msongo wa kioksidishaji, uvimbe na agregesheni ya protini |
| Mfumo wa vesikuli za sinapsi | LRRK2, SYNJ1, DNAJC6 | Hitilafu ya endocytosis, uncoating, recycling na utolewaji wa neurotransmitter | Homeostasis ya dopamini na mzigo wa kioksidishaji vinaweza kuathirika |
| Endosomal trafficking | VPS35, LRRK2 | Hitilafu ya retromer na usafirishaji wa membrani | Usambazaji wa vimeng’enya vya lysosome na udumishaji wa protini za sinapsi vinaweza kuathirika |
| Ulinzi wa redox | DJ-1, PRKN | Kupungua kwa uwezo wa kubafa ROS na uharibifu wa kioksidishaji | Mitochondria, lipidi na agregesheni ya α-synuclein vinaweza kuathirika |
| Neuroinflammation | Inflammasome ya NLRP3, uamilishaji wa microglia | Uzalishaji sugu wa cytokine na vipatanishi vya uvimbe | Inaweza kuimarisha uharibifu wa neuroni kwa kuongeza ROS na hitilafu ya mitochondria |
Malengo ya kitabibu yanawekwa katika makundi gani?
| Eneo lengwa | Mbinu inayojadiliwa katika chanzo | Msingi wa kibiolojia | Mpaka wa tafsiri |
|---|---|---|---|
| Lysosome / GCase | Chaperone za molekuli ndogo zinazoongeza shughuli ya GCase | Kuboresha uharibifu wa lysosome na kupunguza mzigo wa α-synuclein | Mapitio hayayaonyeshi haya kama kiwango cha uhakika cha tiba inayorekebisha ugonjwa |
| Autophagy | Viamilishaji vya TFEB na vidhibiti vya signal ya mTOR | Kuongeza usafishaji wa protini zilizojikusanya na organelle zilizoharibika | Mbinu za kimfumo zilizo katika hatua ya utafiti |
| Mitochondria | PINK1–Parkin, mitophagy, biogenesis ya mitochondria na kulenga ROS | Kulinda uzalishaji wa nishati na udhibiti wa ubora | Chanzo kinasanisi mbinu mbalimbali za majaribio; hakifanyi jaribio jipya la ufanisi wa kliniki |
| LRRK2 | Vizuizi vya kinase ya LRRK2 | Kuboresha vesicular trafficking na homeostasis ya endolysosome | Matokeo ya kliniki hayajathibitishwa katika mapitio haya |
| α-synuclein | Antibodi za monoclonal dhidi ya agregati na molekuli ndogo zinazolenga fibrillization | Kupunguza extracellular seeding, usambazaji au agregesheni | Ni eneo la utafiti linaloendelea kikamilifu |
| Neuroinflammation | Kulenga uamilishaji wa microglia na signalization ya inflammasome | Kupunguza neurotoxicity ya uvimbe inayohusishwa na maendeleo ya ugonjwa | Mapitio hayatangazi hili kuwa kiwango cha tiba |
| Microbiota ya utumbo | Mbinu za lishe, probiotic na microbiota-directed | Kurekebisha signalization ya kinga/kimetaboli ya pembeni | Ni eneo la utafiti wa tiba linalochunguzwa |
Je, Mapitio Haya Yanaonyesha Kwamba Tiba Mpya ya Parkinson Inafaa?
Hapana. Makala haya hayajaribu dawa mpya, bidhaa ya kibaolojia au tiba mchanganyiko katika jaribio la kliniki lililodhibitiwa; sehemu ya tiba inasanisi fasihi ya sasa ya kimfumo na ya majaribio na kujadili malengo ya utafiti kama GCase, autophagy, mitophagy, LRRK2, α-synuclein, uvimbe na microbiota. Kwa hiyo, “lengo la kibiolojia lenye matumaini” linapaswa kutofautishwa na “tiba iliyothibitishwa kubadilisha mwendo wa ugonjwa kwa wagonjwa”.
Kwa nini mikakati ya mchanganyiko inajadiliwa?
Kwa sababu ya njia nyingi za kipathojeni zinazojimarisha, inaaminika kwamba kurekebisha lengo moja pekee huenda kusiurejeshe mfumo mzima katika hali ya kawaida. Kwa hiyo, mapitio yanapendekeza kwamba mbinu zinazolenga kwa pamoja vinundu kadhaa vya pamoja vya kipathojeni, kama mitochondria, lysosome/proteostasis na uvimbe, zinaweza kuwa muhimu baadaye.
Ni tafiti gani zitahitajika baadaye?
Chanzo kinasema hasa kwamba mpangilio wa muda wa matukio ya kipathojeni, utofauti wa aina ndogo za Parkinson na mchango wa kulinganisha wa mifumo ya pembeni dhidi ya mifumo ya mfumo mkuu wa neva bado haujaeleweka kikamilifu. Katika siku zijazo, tafiti za longitudinal, mbinu za multi-omics na uchanganuzi wa systems biology zinatarajiwa kufafanua mahusiano haya vizuri zaidi kwa muda.
Uainishaji bora wa aina ndogo za ugonjwa, maendeleo ya biomarker na uainishaji wa wagonjwa unaotegemea utaratibu unaweza kuweka msingi wa mbinu za precision medicine. Hata hivyo, chanzo kinaweka wazi kwamba haya bado ni malengo ya utafiti wa baadaye.
Mbinu na Matokeo ya Utafiti
Utafiti huu ni wa aina gani?
Utafiti huu ni mapitio ya kisayansi yaliyochapishwa kama Review. Hautozi sampuli mpya ya wagonjwa, kohorti ya wanyama, jaribio la utamaduni wa seli wala seti mpya ya data ya omics. Jukumu la kisayansi la makala ni kusanisi taarifa kutoka tafiti tofauti za kijeni, molekuli, seli, majaribio na kliniki ndani ya mfumo wa pamoja wa pathogenesis ya Parkinson.
Je, ni mapitio ya kimfumo au meta-analysis?
Chanzo hakiripoti mchoro wa mtiririko wa PRISMA, itifaki ya kimfumo ya utafutaji wa hifadhidata, tarehe za utafutaji, mkakati wa maneno muhimu, vigezo vya kujumuisha/kuondoa, upimaji wa ubora wa tafiti, tathmini ya risk-of-bias au hesabu ya meta-analytic effect size. Kwa hiyo, makala ya Verianla haiiti chanzo hiki mapitio ya kimfumo wala meta-analysis.
Pengo la fasihi katika mapitio ni lipi?
Hoja ya kuanzia ya waandishi ni kwamba, ingawa mapitio mengi ya awali yalichunguza mifumo kama α-synuclein, mitochondria, lysosome au uvimbe katika Parkinson chini ya mada tofauti, ushahidi unaoongezeka unaonyesha kuwa michakato hii imeunganishwa sana. Makala haya yanalenga kueleza mifumo hiyo si kama silos tofauti bali kama mfumo wa mrejesho wa pande mbili.
Vyanzo vya ushahidi katika mapitio ni vya aina gani?
Marejeo yanajumuisha tabaka tofauti za ushahidi, kama tafiti za genetic association na genomics, biolojia ya α-synuclein, modeli za wanyama za majaribio, tafiti za mifumo ya seli, modeli za seli za dopamini za binadamu, tafiti za lysosome na mitophagy, tafiti za multi-omics, mihimili ya viungo vya pembeni–ubongo, tafiti za biopsy ya ngozi na tafiti za kitabibu. Utofauti huu ni nguvu ya usanisi wa kina; hata hivyo, metodolojia za tafiti si sawa.
Je, chanzo kina uchanganuzi mpya wa takwimu?
Hapana. Makala haitoi p-value mpya, confidence interval, effect size, regression model au meta-analytic pooled estimate. Chanzo hakina formula au mlinganyo wa kihisabati. Kwa hiyo, Verianla haiongezi hesabu za takwimu au hisabati ambazo hazipo katika chanzo.
Matokeo makuu ya usanisi wa mapitio
- Agregesheni ya α-synuclein ni mojawapo ya vipengele vya kati vya patholojia ya Parkinson, lakini peke yake haiwezi kueleza ugonjwa wote.
- Uhusiano wa GBA1/GCase–α-synuclein unaweza kuunda kiungo cha kipathojeni cha pande mbili kati ya metaboli ya lipidi za lysosome na agregesheni ya protini.
- Protini kama ATP13A2 na VPS35 zinaunga mkono umuhimu wa homeostasis ya lysosome na endosome katika pathogenesis ya Parkinson.
- Njia ya PINK1–Parkin ni utaratibu mkuu wa udhibiti wa ubora katika usafishaji wa mitochondria zilizoharibika kupitia mitophagy.
- Kupotea kwa utendaji wa PINK1 au PRKN kunaweza kuongeza mkusanyiko wa mitochondria zilizoharibika na ROS.
- DJ-1 ni muhimu kwa ulinzi wa redox na ustahimilivu wa mitochondria dhidi ya msongo.
- Msongo wa kioksidishaji unaweza kuwa matokeo ya hitilafu ya mitochondria na lysosome na pia kichocheo cha upstream cha agregesheni ya α-synuclein na uvimbe.
- Kutokuwiana kwa chuma na peroxidation ya lipidi kunaweza kuongeza mzigo wa kioksidishaji wa neuroni za dopamini.
- Hitilafu za sinapsi na vesicular trafficking ni miongoni mwa matukio ya mapema ya kipatholojia yanayoweza kutokea kabla ya upotevu dhahiri wa neuroni.
- LRRK2, SYNJ1, DNAJC6 na VPS35 zinaunga mkono umuhimu wa mifumo ya usafirishaji wa sinapsi/endosome katika pathogenesis ya Parkinson.
- Uamilishaji wa microglia na inflammasome ya NLRP3 vinaweza kuchangia mizunguko sugu ya mrejesho wa neuroinflammation.
- Mhimili wa utumbo–ubongo ni eneo muhimu la utafiti wa pembeni; njia zinazohusishwa na ini, wengu na ngozi pia ni vidhibiti vya ziada vinavyoendelea kuchunguzwa.
- Sifa za pamoja za kipatholojia za aina tofauti za kijeni za Parkinson zinaweza kuelezwa kwa sehemu na kukutana kwa jeni tofauti katika mitandao ileile ya seli.
Hitimisho zinazoungwa mkono na utafiti
- Ugonjwa wa Parkinson unahusishwa na mifumo mingi ya seli iliyounganishwa.
- Kuna mahusiano ya pande mbili kati ya α-synuclein, mitochondria, lysosome, autophagy, synaptic trafficking, usawaziko wa redox na uvimbe.
- Jeni zinazohusishwa na Parkinson zinaweza kukutana katika mifumo ya pamoja ya udhibiti wa ubora wa seli hata kama zinaathiri protini tofauti.
- Sifa maalum za kifiziolojia za neuroni za dopamini zinaweza kuzifanya seli hizi kuwa dhaifu kwa hitilafu za nishati na proteostasis.
- Viungo vya pembeni na kinga ya mfumo mzima ni tabaka za ziada zinazopaswa kuzingatiwa katika utafiti wa Parkinson.
- Utafiti wa tiba zinazorekebisha ugonjwa unaelekea kulenga vinundu vya pamoja vya kipathojeni badala ya utaratibu mmoja pekee.
Hitimisho ambazo utafiti hauungi mkono
- Sababu moja na ya uhakika ya ugonjwa wa Parkinson haijabainishwa.
- Haijaonyeshwa kwamba patholojia ya α-synuclein huanza kwenye utumbo katika visa vyote vya Parkinson.
- Haijaonyeshwa kwamba mihimili ya ini, wengu au ngozi ni mifumo ya kuanza yenye sababu kwa wagonjwa wote.
- Haijaonyeshwa kwamba variant moja ya jeni peke yake inaeleza pathogenesis yote ya Parkinson.
- Mapitio hayajaribu usahihi wa uhakika wa biomarker mpya katika utambuzi wa kliniki.
- Ufanisi wa kliniki unaorekebisha ugonjwa wa chaperone za GCase, vidhibiti vya TFEB/mTOR, vizuizi vya LRRK2 au antibodi za α-synuclein haujathibitishwa katika mapitio haya.
- Makala haya hayaonyeshi kwamba kuingilia microbiota ya utumbo huzuia au kutibu ugonjwa wa Parkinson.
- Mapitio haya si jaribio jipya la kliniki la randomized controlled.
- Mapitio hayatoi meta-analysis mpya wala makadirio mapya ya kiasi cha hatari.
Nguvu za mapitio
Nguvu kuu ya mapitio ni kwamba hayawekei pathogenesis ya Parkinson kikomo kwa molekuli au organelle moja. Hatari ya kijeni, agregesheni ya protini, udhibiti wa ubora wa organelle, nishati ya seli, usafirishaji wa sinapsi, usawaziko wa redox, mwitikio wa kinga na mifumo ya viungo vya pembeni zimeunganishwa katika mfumo mmoja.
Nguvu ya pili ni kutoa mfumo wa kimfumo unaoeleza jinsi aina za kifamilia na sporadic za Parkinson zinavyoweza kukutana katika vinundu vya pamoja vya kipatholojia.
Nguvu ya tatu ni kwamba inapounganisha biolojia ya ndani ya seli na malengo ya kitabibu, haiweki utafiti wa tiba za baadaye juu ya “lengo la kimiujiza” moja.
Vikwazo vikuu vya mapitio
Kizuizi cha kwanza: Chanzo hakitoi metodolojia ya mapitio ya kimfumo. Kwa kuwa haijaripotiwa fasihi ilichaguliwa kutoka hifadhidata zipi, kwa maneno gani ya utafutaji na kwa vigezo gani vya kujumuisha/kuondoa, uwezo wa kurudia uchaguzi na upeo wa tafiti hauko katika kiwango cha systematic review.
Kizuizi cha pili: Ushahidi uliounganishwa unatoka katika viwango tofauti vya ushahidi kama tafiti za kijeni, modeli za wanyama, majaribio ya seli, tafiti za tishu/biopsy ya binadamu na utafiti wa kliniki. Kila matokeo hayana nguvu sawa ya ushahidi wa moja kwa moja wa kliniki.
Kizuizi cha tatu: Mpangilio halisi wa matukio ya kipathojeni kwa muda bado haujathibitishwa. Kwa mgonjwa fulani, tukio la kwanza linalotawala linaweza kuwa hitilafu ya mitochondria, agregesheni ya α-synuclein, upungufu wa lysosome au uvimbe.
Kizuizi cha nne: Ugonjwa wa Parkinson una heterogeneity. Uzito wa kulinganisha wa mifumo ileile unaweza kutofautiana katika aina ndogo tofauti za kijeni, kliniki na kipatholojia.
Kizuizi cha tano: Mchango wa kulinganisha wa mihimili ya viungo vya pembeni–ubongo kwa mifumo ya kati haujaeleweka kikamilifu.
Kizuizi cha sita: Uhalali wa kimfumo wa malengo ya kitabibu haumaanishi kwamba ufanisi wa kliniki wa kurekebisha ugonjwa umethibitishwa.
Mwelekeo wa utafiti wa baadaye
Chanzo kinaona tafiti za longitudinal za wagonjwa, ujumuishaji wa data za multi-omics, systems biology, uainishaji wa kina zaidi wa aina ndogo za ugonjwa na uchunguzi wa mahusiano ya mifumo ya pembeni na ya kati kwa muda kama maeneo ya kipaumbele katika siku zijazo.
Mbinu hii inaweza kuweka msingi wa modeli za precision-medicine ambapo biomarker zinaweza kutumika si kwa utambuzi pekee bali pia kwa uainishaji wa wagonjwa, ufuatiliaji wa shughuli ya ugonjwa na kufuatilia mwitikio wa tiba.
Maelezo ya Chanzo na Mbinu
Kichwa asili: Integrated Mechanisms Driving Parkinson’s Disease Pathogenesis.
Waandishi na mpangilio: Ayesha Kashif, In Sik Kim.
Mchango sawa: Chanzo hakina tamko la mchango sawa.
Mwandishi wa mawasiliano: In Sik Kim.
Taasisi 1: School of Medicine, The University of Notre Dame Australia, Sydney 2010, Australia.
Taasisi 2: Department of Senior Healthcare, Graduate School, Eulji University, Uijeongbu 11759, Korea.
Taasisi 3: Department of Biomedical Laboratory Science, College of Health Science, Eulji University, Uijeongbu 11759, Korea.
Jarida: Biomedical Science Letters.
Shirika la kisayansi linalochapisha: The Korean Society for Biomedical Laboratory Sciences.
Juzuu / toleo / kurasa: 32(2), 133–142.
DOI: 10.15616/BSL.2026.32.2.133.
Kipindi cha uchapishaji: Toleo la Juni 2026.
Received: 2 Juni 2026.
Revised: 15 Juni 2026.
Accepted: 17 Juni 2026.
Aina ya chanzo: Review / mapitio ya kisayansi.
Hali ya peer review: Ni mapitio ya jarida yaliyochapishwa na mchakato wa uchapishaji wa Received–Revised–Accepted umeripotiwa. PDF ya chanzo haitoi lebo tofauti ya “peer-reviewed”.
Hali ya preprint: Chanzo kilichotolewa si preprint, bali ni PDF ya jarida iliyochapishwa.
Leseni: Creative Commons Attribution Non-Commercial. Kwa kuwa PDF iliyotolewa haionyeshi wazi nambari ya toleo la leseni, Verianla haitungi nambari ya toleo.
eISSN: 2288-7415.
ORCID: Ayesha Kashif — 0000-0002-2891-044X; In Sik Kim — 0000-0001-6072-8990.
Acknowledgement: None.
Funding: None.
Mgongano wa maslahi: Waandishi hawakuripoti mgongano wa maslahi unaoweza kuhusiana na makala.
Michango ya waandishi: Conceptualization: Ayesha Kashif; Supervision: In Sik Kim; Writing – original draft: Ayesha Kashif.
Upatikanaji wa data: Chanzo hakina Data Availability Statement tofauti. Kwa kuwa hii ni makala ya review, hakuna seti mpya ya data asilia ya majaribio inayoripotiwa.
Marejeo: Mapitio yanategemea marejeo 32 ya kibibliografia.
Hali ya mapitio ya kimfumo: Kwa kuwa PRISMA, itifaki ya utafutaji wa kimfumo, vigezo vya kujumuisha/kuondoa, risk-of-bias au meta-analysis havijaripotiwa, haijawekewa lebo kama mapitio ya kimfumo.
Hali ya formula/takwimu: Chanzo hakina mlinganyo wa kihisabati, modeli mpya ya takwimu, p-value mpya au meta-analytic effect size. Verianla haijaunda formula ambayo haipo katika chanzo.
Vinundu vikuu vya kijeni: SNCA, LRRK2, GBA1, PINK1, PRKN, DJ-1, VPS35 na ATP13A2.
Michakato mikuu ya kipathojeni: agregesheni ya α-synuclein; hitilafu ya lysosome; upungufu wa autophagy na mitophagy; kupotea kwa utendaji wa mitochondria; msongo wa kioksidishaji na kutokuwiana kwa redox; hitilafu za synaptic na endosomal trafficking; neuroinflammation.
Mifumo ya pembeni: Mhimili wa utumbo–ubongo; mahusiano yanayoendelea kuchunguzwa ya ini–ubongo, wengu–ubongo na ngozi–ubongo.
Maeneo ya utafiti wa kitabibu: GCase/lysosome, autophagy inayopatanishwa na TFEB na mTOR, PINK1–Parkin na udhibiti wa ubora wa mitochondria, kinase ya LRRK2, agregesheni/usambazaji wa α-synuclein, signalization ya microglia na inflammasome, microbiota ya utumbo.
Mpaka muhimu wa kliniki: Mapitio hayaonyeshi ufanisi wa dawa mpya wala mafanikio ya matibabu kwa wagonjwa. Mbinu za kitabibu zimetathminiwa kama mielekeo ya utafiti katika fasihi.
Mpaka muhimu wa sababu: Ingawa mifumo iliyounganishwa ina usaidizi mkubwa wa kibiolojia na wa majaribio, haijaonyeshwa kwamba tukio lilelile ndilo sababu ya kwanza kwa kila mgonjwa wa Parkinson au kwamba mifumo yote huendelea kwa mpangilio uleule.
Acha maoni
Anwani yako ya barua pepe haitachapishwa. Sehemu za lazima zimewekewa alama ya *