


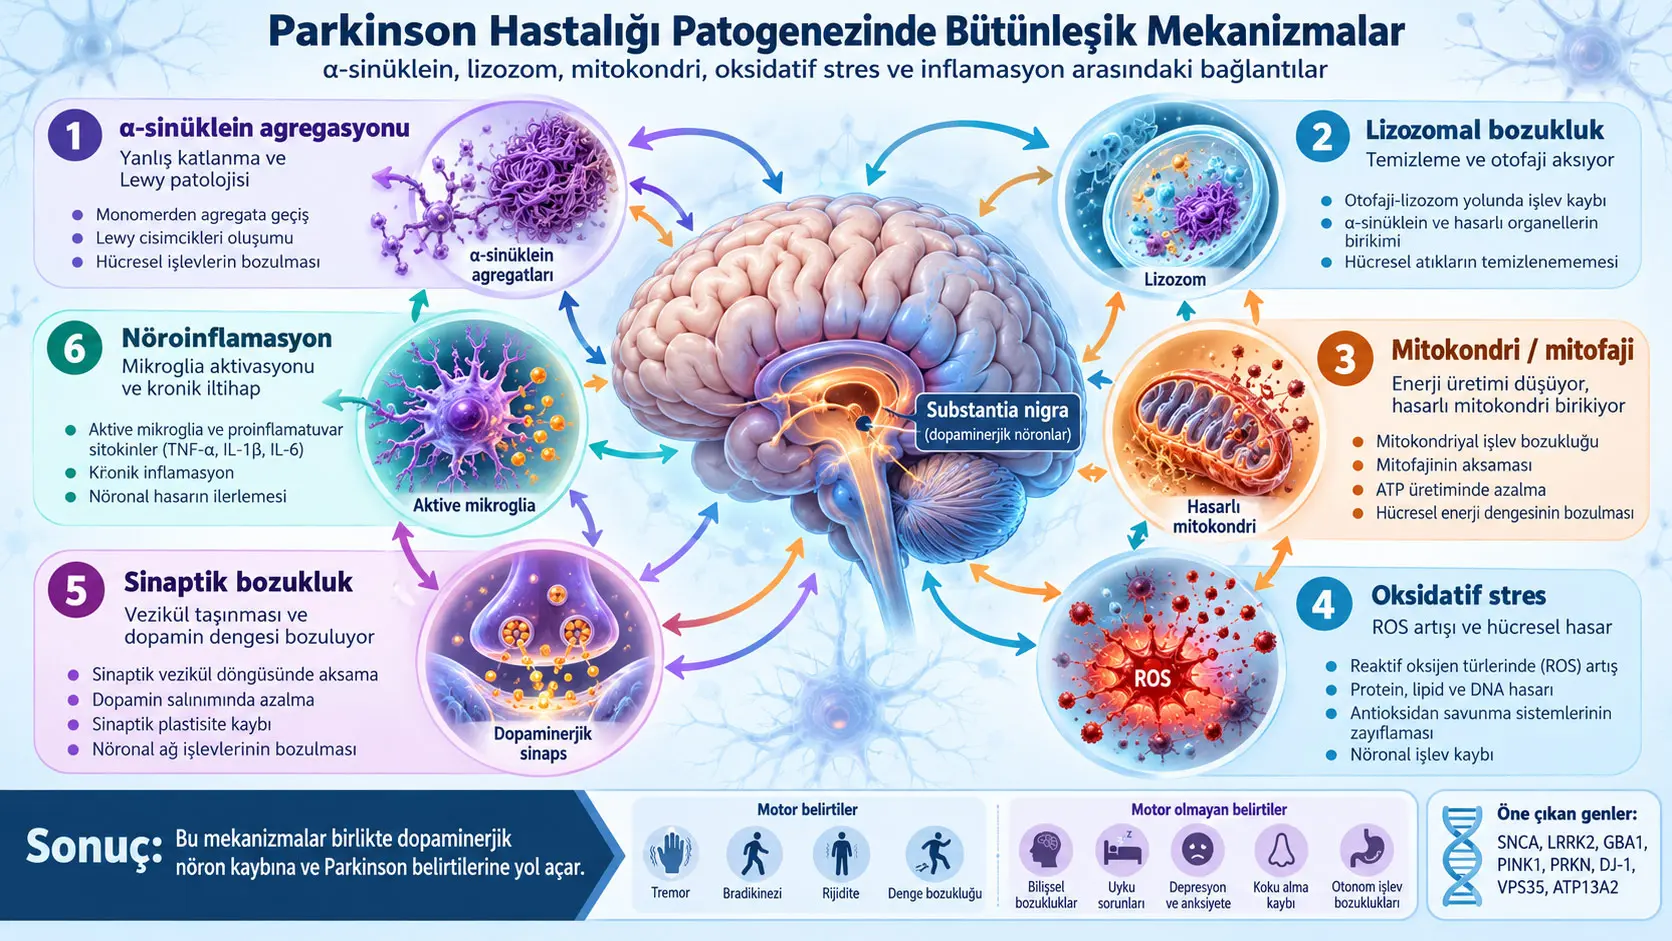
Parkinson hastalığı (Parkinson’s disease, PD), substantia nigra pars compacta bölgesindeki dopaminerjik nöronların ilerleyici kaybı ve Lewy cisimcikleri ile Lewy nöritlerinde agregatlaşmış α-sinüklein birikimiyle karakterize edilen ilerleyici bir nörodejeneratif hastalıktır. Bu kaynak yeni bir deney veya klinik tedavi çalışması değil, Parkinson patogenezini açıklayan genetik ve hücresel mekanizmaları bir araya getiren bir derlemedir. Derlemenin ana görüşü, Parkinson hastalığının tek bir moleküler bozukluktan değil; α-sinüklein agregasyonu, lizozomal bozukluk, otofaji ve mitofaji kusuru, mitokondriyal işlev kaybı, oksidatif stres, sinaptik ve veziküler taşıma bozukluğu ile kronik nöroinflamasyonun birbirini güçlendirdiği çok katmanlı bir hücresel ağdan ortaya çıktığıdır.
Kaynak Parkinson hastalığını yalnız hareket bozukluğu olarak değerlendirmemektedir. Bradikinezi, rijidite, istirahat tremoru ve postüral instabilite gibi motor belirtilerin yanında bilişsel bozulma, otonom işlev bozukluğu, uyku bozuklukları, depresyon, koku kaybı ve gastrointestinal belirtiler gibi motor olmayan bulgular da hastalık tablosunun parçasıdır. Derleme, bazı motor olmayan belirtilerin belirgin motor bozukluklardan yıllar önce başlayabildiğini vurgulayarak patolojik sürecin klinik tanıdan çok daha önce başlayabileceğine dikkat çekmektedir.
Genetik düzeyde SNCA, LRRK2, GBA1, PINK1, PRKN, DJ-1, VPS35 ve ATP13A2 gibi Parkinson ile ilişkili genler farklı proteinleri kodlasa da etkileri çoğu zaman ortak hücresel sistemlerde birleşmektedir. Bu sistemler mitokondri kalite kontrolü, lizozomal degradasyon, otofaji, sinaptik vezikül döngüsü, endozomal taşıma, redoks dengesi ve protein kalite kontrolünü içerir. Derleme bu genleri birbirinden bağımsız “Parkinson genleri” olarak sıralamak yerine, bozulduklarında aynı patojenik ağın farklı noktalarını zayıflatan biyolojik düğümler olarak ele almaktadır.
α-sinüklein bu ağın merkezindeki proteinlerden biridir. Normal koşullarda presinaptik bölgede bulunan α-sinüklein, sinaptik veziküllerin kümelenmesi, SNARE kompleksinin düzenlenmesi ve nörotransmiter salınımı gibi işlevlere katkı sağlar. Patolojik koşullarda ise proteinin konformasyonu değişebilir; oligomerler, protofibriller ve fibriller oluşabilir ve bunlar sonunda Lewy patolojisinin parçası haline gelebilir. Oksidatif stres, mitokondri bozukluğu, lipid metabolizması değişiklikleri, dopamin oksidasyonu ve yetersiz lizozomal temizleme α-sinüklein agregasyonunu kolaylaştırabilir.
Lizozomal sistem ile α-sinüklein arasındaki ilişki çift yönlüdür. Örneğin GBA1 işlev kaybına bağlı glucocerebrosidase (GCase) aktivite azalması glucosylceramide ve ilişkili sfingolipidlerin birikimine yol açabilir; bu ortam α-sinüklein oligomerizasyonunu kolaylaştırabilir. Biriken α-sinüklein ise GCase taşınmasını ve lizozomal olgunlaşmayı bozarak yeni bir kısır döngü oluşturabilir. Bu nedenle lizozomal bozukluk yalnız α-sinüklein birikiminin sonucu değil, aynı zamanda agregasyonu artırabilecek bir upstream mekanizma olarak değerlendirilir.
Mitokondriyal kalite kontrolünde PINK1–Parkin yolu özellikle önemlidir. Sağlıklı mitokondride PINK1 proteini içeri alınır ve hızla parçalanır. Mitokondri membran potansiyelini kaybettiğinde PINK1 dış mitokondri membranında birikir, ubiquitini fosforile eder ve Parkin'i bölgeye çeker. Aktive Parkin dış mitokondri membran proteinlerini ubikitinler ve hasarlı mitokondrinin mitofaji yoluyla seçici olarak uzaklaştırılmasını destekler. PINK1 veya PRKN mutasyonları bu kalite kontrol döngüsünü bozduğunda hasarlı mitokondriler birikebilir, ATP üretimi azalabilir, kalsiyum dengesi bozulabilir ve reaktif oksijen türleri artabilir.
Oksidatif stres aynı ağın hem sonucu hem de sürücüsüdür. Hasarlı mitokondriler ROS üretimini artırabilir; ROS proteinlere, membran lipidlerine, nükleik asitlere ve mitokondri bileşenlerine zarar verebilir. Oksidatif hasar α-sinükleinin yanlış katlanmasını ve agregasyonunu kolaylaştırırken, agregatlaşmış α-sinüklein da mitokondriyal solunumu ve membran bütünlüğünü bozabilir. Böylece oksidatif stres ile protein agregasyonu birbirini kuvvetlendiren geri besleme döngüsü oluşturur.
Derleme demir dengesizliğini de oksidatif stres ağına dahil etmektedir. Substantia nigra'daki artmış demir, Fenton kimyası üzerinden oldukça reaktif hidroksil radikallerinin oluşumunu destekleyebilir. Bu mekanizma lipid peroksidasyonu, protein oksidasyonu ve mitokondriyal hasarı artırabilecek ek bir oksidatif yük oluşturabilir.
Nöroinflamasyon da patolojinin pasif sonucu olarak görülmemektedir. Aktive mikroglia ve astroglia proinflamatuvar sitokinler, ROS, nitrik oksit ve inflammazomla ilişkili mediyatörler salgılayabilir. Yanlış katlanmış α-sinüklein NLRP3 inflammazomu dahil innate immune yolları uyarabilir. Hasarlı mitokondrilerden salınan mitokondriyal DNA gibi damage-associated molecular patterns da mikroglial aktivasyonu artırabilir. Kronik inflamasyon daha fazla oksidatif stres ve mitokondri bozukluğu oluşturarak yine pozitif geri besleme yaratır.
Derleme yalnız merkezi sinir sistemiyle sınırlı değildir. Bağırsak–beyin ekseni en ayrıntılı tartışılan periferik mekanizmadır; intestinal geçirgenlik, bağırsak mikrobiyotası, periferik bağışıklık ve enterik sinir sistemindeki α-sinüklein patolojisi bu çerçevede değerlendirilir. Kaynak ayrıca karaciğer–beyin, dalak–beyin ve deri–beyin ilişkilerini gelişmekte olan araştırma alanları olarak tartışmaktadır. Bunlar kesin ve tüm hastalarda geçerli başlangıç mekanizmaları olarak değil, merkezi patolojiyle etkileşebilecek periferik modülatörler olarak ele alınmalıdır.
Bu derlemenin terapötik mesajı “tek hedefli bir tedavi bulundu” değildir. GCase aktivitesinin artırılması, otofaji ve lizozomal işlevin güçlendirilmesi, PINK1–Parkin mitofajisinin desteklenmesi, LRRK2 kinaz aktivitesinin inhibisyonu, α-sinüklein agregasyonu veya yayılımının hedeflenmesi, mikroglial/inflammazom aktivitesinin azaltılması ve bağırsak mikrobiyotasının modülasyonu gibi birçok yaklaşım araştırılmaktadır. Ancak kaynak bunları klinik olarak kanıtlanmış hastalık-modifiye edici standart tedaviler olarak sunmamaktadır.
Parkinson hastalığında temel patolojik yapı nedir?
Parkinson hastalığının klasik nöropatolojik özelliklerinden biri substantia nigra pars compacta bölgesindeki dopaminerjik nöronların ilerleyici kaybıdır. Bu nöronlar striatuma dopamin sağlayan nigrostriatal sistemin temel parçalarındandır. Dopamin kaybı hareketin başlatılması ve düzenlenmesinde görev alan bazal gangliyon devrelerinin işleyişini bozarak motor belirtilere katkıda bulunur.
İkinci temel özellik Lewy cisimcikleri ve Lewy nöritleri içinde agregatlaşmış α-sinüklein bulunmasıdır. Lewy cisimcikleri nöron gövdesindeki, Lewy nöritleri ise nöronal uzantılardaki patolojik protein birikimleri olarak düşünülebilir. Ancak derlemenin ana yaklaşımı bu iki patolojik özelliği hastalığın bütün açıklaması olarak görmemektir; bunların altında ve çevresinde çok sayıda hücresel kalite kontrol sistemi bulunmaktadır.
Dopaminerjik nöronlar neden özellikle kırılgandır?
Kaynak substantia nigra dopaminerjik nöronlarının uzun ve geniş aksonal dallanmaya, çok sayıda sinaptik terminale, yüksek enerji gereksinimine, kalsiyuma bağımlı otonom pacemaking aktivitesine ve dopamin metabolizmasına bağlı sürekli oksidatif yüke sahip olduğunu vurgulamaktadır. Bu özellikler mitokondri işlevine, protein kalite kontrolüne ve hücre içi taşıma sistemlerine olağanüstü bağımlılık yaratır.
Bu nedenle mitokondri, lizozom veya veziküler taşıma sistemlerinden yalnız birindeki küçük ve kronik bozukluk bile yıllar içinde hücresel yükün birikmesine katkıda bulunabilir. Derleme seçici nöronal duyarlılığı bu birbirine eklenen fizyolojik yüklerle açıklamaktadır.
Parkinson Hastalığında α-Sinüklein Neden Merkezîdir?
α-sinüklein, normalde presinaptik vezikül organizasyonu ve nörotransmiter salınımına katkıda bulunan ancak yanlış katlandığında oligomer, protofibril ve fibril oluşturabilen bir proteindir; Parkinson patogenezinde merkezî olmasının nedeni, agregasyonunun mitokondri, lizozom, otofaji ve sinaptik taşıma sistemlerini bozabilmesi ve bu sistemlerdeki bozuklukların da α-sinüklein agregasyonunu daha da artırabilmesidir.
α-sinükleinin normal görevi nedir?
α-sinüklein ağırlıklı olarak presinaptik bölgede bulunan dinamik bir proteindir. Monomerik ve multimerik durumlar arasında geçiş yapabilir ve sinaptik veziküllerin kümelenmesi, membranlarla etkileşim, SNARE kompleksinin kurulması ve nörotransmiter salınımının düzenlenmesi gibi süreçlere katkı sağlar.
SNARE kompleksi nedir?
SNARE kompleksi, hücre içi membranların ve özellikle sinaptik veziküllerin hedef membranla birleşmesini sağlayan protein makinesidir. Sinir terminalinde nörotransmiter taşıyan vezikülün hücre membranıyla kaynaşması ve içeriğini sinaptik aralığa salması bu tip membran-füzyon mekanizmalarına dayanır. α-sinükleinin fizyolojik işlevlerinden biri bu veziküler sistemin düzenlenmesine katkı sağlamaktır.
Oligomer, protofibril ve fibril ne demektir?
Oligomer, az sayıda α-sinüklein molekülünün bir araya geldiği ara agregat yapıdır. Protofibril, oligomerlerden daha organize ve uzamış ara yapıları; fibril ise daha uzun ve düzenli filamentöz agregatları ifade eder. Bu terimler aynı proteinin agregasyon sürecindeki farklı yapısal durumlarını anlatır.
Kaynak, farklı sinükleinopatilerden elde edilen α-sinüklein fibrillerinde cryo-electron microscopy ile yapısal çeşitlilik gözlendiğini ve bu farklılıkların klinik çeşitliliğin olası nedenlerinden biri olabileceğini aktarmaktadır. Derleme bu yapısal farklılıkları tek başına klinik fenotipi belirleyen kanıtlanmış neden olarak sunmamaktadır.
“Prion-benzeri yayılım” ne anlama gelir?
Prion-benzeri yayılım ifadesi, yanlış katlanmış α-sinüklein türlerinin bir nörondan diğerine aktarılabilmesi ve alıcı hücrede yeni α-sinüklein agregasyonunu tetikleyebilmesi fikrini tanımlar. Bu kullanım Parkinson hastalığının klasik bulaşıcı prion hastalığı olduğu anlamına gelmez; benzetme protein yanlış katlanmasının hücreler arasında şablon benzeri biçimde yayılabilmesi mekanizmasına yöneliktir.
Membran lipidleri α-sinükleini nasıl etkileyebilir?
α-sinüklein özellikle yüksek eğrilikli fosfolipid membranlarla etkileşebilir. Membran bileşiminin veya hücresel lipid metabolizmasının değişmesi proteinin membranla etkileşim dengesini bozabilir ve oligomerizasyon/fibrilizasyon eğilimini etkileyebilir. Böylece lipid homeostazı ile protein agregasyonu arasında doğrudan hücresel bağlantı oluşur.
Proteostaz nedir?
Proteostaz, hücrenin proteinlerin sentezlenmesi, doğru katlanması, taşınması, kalite kontrolü ve gerektiğinde parçalanması arasındaki dengeyi korumasıdır. Parkinson patogenezinde proteostaz bozulduğunda yanlış katlanmış ve hasarlı proteinlerin temizlenmesi yetersiz kalabilir; α-sinüklein birikimi de protein kalite kontrol sistemlerinin yükünü daha fazla artırabilir.
Lizozomun görevi nedir?
Lizozom, hücre içinde proteinleri, lipidleri ve hasarlı organelleri parçalayan asidik degradasyon organelidir. Uzun ömürlü ve bölünmeyen nöronlar hasarlı protein ve organelleri sürekli temizlemek zorunda olduğundan lizozomal sistemdeki kronik bozukluklara özellikle duyarlıdır.
Otofaji nedir?
Otofaji, hücrenin kendi sitoplazmik materyalini lizozomal degradasyona yönlendirdiği kalite kontrol sistemlerinin genel adıdır. Hasarlı protein agregatlarının ve organellerin uzaklaştırılması için gereklidir. Otofajik akış yalnız otofagozom oluşmasını değil, taşımanın ve lizozomla birleşmenin tamamlanmasını da kapsar.
Şaperon-aracılı otofaji nedir?
Chaperone-mediated autophagy, belirli sitozolik proteinlerin şaperon proteinleri tarafından tanınarak lizozomal membrana taşındığı seçici degradasyon yoludur. Patolojik α-sinüklein türleri lysosome-associated membrane protein 2A (LAMP2A) ile üretken olmayan biçimde etkileşerek bu yolu engelleyebilir ve yanlış katlanmış proteinlerin temizlenmesini azaltabilir.
GBA1 ve GCase neden önemlidir?
GBA1, lysosomal glucocerebrosidase yani GCase enzimiyle ilişkili gendir. Derleme GBA1 mutasyonlarını Parkinson hastalığı için en güçlü genetik risk faktörlerinden biri olarak tanımlamaktadır. GCase aktivitesi azaldığında glucosylceramide ve ilişkili sphingolipidlerin lizozomal metabolizması bozulabilir.
Bu lipidlerin birikmesi α-sinüklein oligomerizasyonunu ve fibrilizasyonunu kolaylaştırabilir. Buna karşılık biriken α-sinüklein GCase'in hücre içi taşınmasını ve lizozom olgunlaşmasını bozabilir. Böylece GBA1/GCase–α-sinüklein ilişkisi çift yönlü bir patojenik döngü oluşturur.
ATP13A2 ne yapar?
ATP13A2 lizozomal iyon ve poliamin homeostazı, lizozomal asidifikasyon ve otofajik degradasyonla ilişkili bir proteindir. ATP13A2 işlev kaybı lizozomun kimyasal ortamını ve temizleme kapasitesini bozarak oksidatif strese ve hücresel hasara duyarlılığı artırabilir.
VPS35 ve retromer sistemi nedir?
VPS35, retromer olarak adlandırılan endozomal geri-dönüşüm kompleksinin önemli bileşenlerinden biridir. Retromer, endozomlardan belirli proteinlerin doğru hücresel hedeflere geri taşınmasına katkı sağlar. VPS35 bozuklukları endozomal sorting'i, lizozomal enzim taşınmasını ve otofajiyle ilişkili yolları etkileyebilir.
PINK1–Parkin Yolu Hasarlı Mitokondrileri Nasıl Temizler?
PINK1–Parkin yolu, membran potansiyelini kaybetmiş mitokondrileri tanıyıp ubikitin tabanlı sinyaller aracılığıyla mitofajiye yönlendiren bir mitokondri kalite kontrol sistemidir; sağlıklı mitokondride hızla parçalanan PINK1, hasarlı mitokondrinin dış membranında birikerek ubiquitini fosforile eder, Parkin'i aktive eder ve hasarlı organelin seçici olarak uzaklaştırılmasını kolaylaştırır.
Mitofaji nedir?
Mitofaji, otofajinin özellikle hasarlı veya işlevsiz mitokondrileri hedef alan seçici biçimidir. Amaç, düşük ATP üreten ve aşırı ROS oluşturan mitokondrilerin hücre içinde birikmesini engellemektir.
PINK1 normal mitokondride ne olur?
Mitokondri membran potansiyeli sağlıklı olduğunda PINK1 mitokondri içine alınır ve hızlı biçimde parçalanır. Bu nedenle dış mitokondri membranında yüksek PINK1 birikimi oluşmaz.
Hasarlı mitokondride ne değişir?
Mitokondri membran potansiyelini kaybettiğinde PINK1'in normal içeri alınması bozulur ve protein dış mitokondri membranında birikir. PINK1 burada ubiquitini fosforile eder ve sitozolik Parkin'in hasarlı mitokondriye toplanmasını destekler.
Parkin ne yapar?
PRKN tarafından kodlanan Parkin, bir E3 ubiquitin ligazdır. Aktive olduğunda dış mitokondri membranındaki proteinleri ubikitinleyerek hücrenin kalite kontrol sistemine “bu mitokondri hasarlı” sinyali verir. Böylece organel otofajik temizleme sistemine yönlendirilebilir.
PINK1 veya PRKN bozulursa ne olur?
PINK1 veya PRKN mutasyonları mitofaji verimliliğini azaltabilir. İşlevsiz mitokondriler biriktikçe oksidatif fosforilasyon zayıflayabilir, ATP üretimi azalabilir, ROS üretimi artabilir ve kalsiyum homeostazı bozulabilir. Hasarlı mitokondriler ayrıca pro-apoptotik sinyaller ve inflamasyonu uyarabilecek mitokondriyal bileşenler salabilir.
DJ-1'in rolü nedir?
DJ-1 hücresel antioksidan savunma ve mitokondriyal redoks düzenlenmesinde rol alan bir proteindir. DJ-1 işlev kaybı hücrenin oksidatif strese karşı tampon kapasitesini azaltabilir ve mitokondriyal hasara duyarlılığı artırabilir.
Oksidatif stres nedir?
Oksidatif stres, hücrede oluşan reaktif oksijen türlerinin antioksidan savunma kapasitesini aşması durumudur. ROS tamamen zararlı veya tamamen istenmeyen moleküller değildir; düşük düzeylerde hücresel sinyalleşmede görev yapabilirler. Sorun, üretim ve temizleme arasındaki denge bozulduğunda ortaya çıkar.
Parkinson hastalığında ROS neden artabilir?
Mitokondriyal elektron taşıma zinciri bozukluğu, dopamin oksidasyonu, demir dengesizliği, çevresel toksinler ve kronik inflamatuvar hücre aktivasyonu ROS yükünü artırabilecek mekanizmalardır. Rotenone ve paraquat gibi çevresel toksinler de derlemede mitokondriyal solunumu ve redoks dengesini bozabilecek örnekler olarak tartışılmaktadır.
Lipid peroksidasyonu nedir?
Lipid peroksidasyonu, özellikle çoklu doymamış membran lipidlerinin reaktif oksijen türleri tarafından oksidatif zincir reaksiyonlarına uğratılmasıdır. Bu süreç membran bütünlüğünü, veziküler dinamiği ve hücresel sinyal sistemlerini bozabilir. Derleme lipid peroksidasyonunu oksidatif stresin hücresel sonuçlarından biri olarak ele almaktadır.
Demir ve Fenton kimyası neden önemlidir?
Serbest veya uygun olmayan biçimde düzenlenmiş demir, hidrojen peroksit gibi oksidanlarla reaksiyona girerek çok yüksek reaktiviteye sahip hidroksil radikallerinin oluşmasını kolaylaştırabilir. Bu reaksiyon ağı Fenton kimyası olarak bilinir. Kaynak, substantia nigra'daki demir birikimini oksidatif hasarı ve mitokondriyal bozukluğu artırabilecek mekanizmalardan biri olarak değerlendirmektedir.
Sinaptik bozukluk neden erken olabilir?
Nöronun tamamen ölmesinden önce sinaptik iletişim bozulabilir. α-sinüklein normal sinaptik vezikül organizasyonunda görev aldığı için protein agregasyonu vezikül clustering, docking, recycling ve nörotransmiter salınımını etkileyebilir. Dopaminin vezikül dışında sitozolde daha fazla kalması dopamin oksidasyonunu artırarak yeni oksidatif yük oluşturabilir.
LRRK2 ne yapar?
LRRK2, çok sayıda hücresel hedefi fosforile edebilen bir kinazdır ve sinaptik vezikül endositozu, sitoskeletal organizasyon, endozomal ve lizozomal membran trafiğinin düzenlenmesinde rol alır. Hastalıkla ilişkili aşırı LRRK2 kinaz aktivitesi vezikül recycling ve endolizozomal homeostazı bozabilir.
SYNJ1 ve DNAJC6 neden önemlidir?
SYNJ1 phosphoinositide metabolizması ve sinaptik vezikül endositozunda görev yapar. DNAJC6 ise clathrin kaplı veziküllerin uncoating süreciyle ilişkilidir. Bu proteinlerin bozulması sinaptik vezikül geri dönüşümünün farklı aşamalarını aksatabilir.
Nöroinflamasyon nedir?
Nöroinflamasyon, merkezi sinir sistemindeki bağışıklık ve glial hücrelerin inflamatuvar sinyal yollarının kronik veya düzensiz biçimde aktive olmasıdır. Mikroglia beynin başlıca yerleşik bağışıklık hücreleridir; astroglia ise nöronal çevrenin metabolik ve yapısal düzenlenmesinde rol oynayan glial hücrelerdir.
NLRP3 inflammazomu nedir?
NLRP3 inflammazomu hücresel tehlike sinyallerini algılayarak inflamatuvar yanıtın aktivasyonuna katkıda bulunan çok proteinli innate immune kompleksidir. Kaynak yanlış katlanmış α-sinükleinin NLRP3 dahil innate immune yolları aktive edebildiğini ve kronik mikroglial yanıtı destekleyebildiğini aktarmaktadır.
DAMP nedir?
Damage-associated molecular patterns (DAMP'ler), enfeksiyon olmadan hücresel hasarın bağışıklık sistemi tarafından algılanmasını sağlayabilen endojen moleküler sinyallerdir. Hasarlı mitokondrilerden salınan mitokondriyal DNA ve diğer mitokondri bileşenleri bu tür tehlike sinyalleri olarak davranabilir.
Bağırsak–beyin ekseni nasıl ele alınıyor?
Derleme bağırsak mikrobiyotasındaki değişikliklerin intestinal geçirgenliği ve periferik immün aktivasyonu etkileyebileceğini; enterik sinir sisteminde α-sinüklein birikimini kolaylaştırabileceğini tartışmaktadır. “Body-first” modelde periferik bölgede oluşan patolojik α-sinüklein türlerinin vagus siniri boyunca beyin sapına ve ilişkili merkezi bölgelere ilerleyebileceği düşünülmektedir.
Bu model bütün Parkinson hastalarının hastalığının bağırsakta başladığını kanıtlamaz. Kaynak bunu belirli bir hastalık gelişim modeli olarak sunmaktadır.
Karaciğer–beyin ekseni nedir?
Karaciğer metabolik ve inflamatuvar sinyaller aracılığıyla sistemik bağışıklığı ve oksidatif stresi etkileyebilir. Derleme karaciğer işlev bozukluğunun, özellikle metabolik hastalıklarla birlikte olduğunda, mikroglial aktivasyon ve α-sinüklein patolojisiyle ilişkili olabileceğine dair gelişmekte olan kanıtları tartışmaktadır.
Dalak–beyin ekseni neden tartışılıyor?
Dalak periferik bağışıklık hücrelerinin ve sitokin ortamının düzenlenmesinde önemli organdır. Deneysel modellerde splenic immune-cell activation ve sitokin düzensizliğinin merkezi nöroinflamatuvar yanıtları güçlendirebildiği bildirilmiştir. Derleme bu nedenle dalağı Parkinson'daki sistemik inflamasyon ağının olası modülatörlerinden biri olarak ele almaktadır.
Deri neden Parkinson biyobelirteci araştırmalarında önem kazanıyor?
Periferik kutanöz sinir liflerinde α-sinüklein birikiminin gösterilmesi, deri biyopsilerinin sistemik synucleinopathy için erişilebilir bir biyobelirteç kaynağı olabileceği fikrini desteklemektedir. Derleme bunu gelişmekte olan bir biyobelirteç alanı olarak sunar; tek başına standart ve kesin Parkinson tanı testi olarak tanımlamaz.
Parkinson Hastalığında Mekanizmalar Neden Birbirini Besleyen Bir Ağ Olarak Ele Alınır?
Çünkü lizozomal temizleme bozukluğu α-sinüklein ve hasarlı mitokondri birikimini artırabilir; hasarlı mitokondriler ROS üretimini yükseltebilir; ROS α-sinüklein yanlış katlanmasını ve lizozomal hasarı artırabilir; agregatlaşmış α-sinüklein mitokondri ve sinaptik taşıma sistemlerini bozabilir; kronik inflamasyon ise oksidatif hasarı yeniden artırabilir. Bu karşılıklı ilişkiler tek yönlü doğrusal zincir yerine kendi kendini güçlendiren patojenik geri besleme ağı oluşturur.
Multi-omics ne anlama gelir?
Multi-omics, aynı biyolojik problemi genomik, transkriptomik, proteomik, metabolomik veya diğer geniş ölçekli moleküler veri katmanlarını birlikte değerlendirerek inceleme yaklaşımıdır. Derleme Parkinson dokuları ve deneysel modellerindeki multi-omics çalışmalarının proteostaz, mitokondri metabolizması, otofaji, lipid homeostazı ve sinaptik işlev bozukluklarının aynı anda ortaya çıkabildiğini desteklediğini belirtmektedir.
Neden farklı genetik nedenler benzer Parkinson patolojisine yol açabilir?
Çünkü farklı mutasyonlar farklı proteinleri etkilese de bu proteinler aynı temel hücresel ağlarda birleşebilir. GBA1 daha çok lizozomal metabolizma, PINK1/PRKN mitokondri kalite kontrolü, LRRK2 veziküler trafficking ve SNCA α-sinüklein biyolojisiyle ilişkilidir; fakat bu sistemlerden birinin bozulması diğer sistemlerde ikincil stres yaratabilir. Bu yakınsama, genetik olarak farklı Parkinson biçimlerinde neden benzer nörodejeneratif özelliklerin görülebileceğini açıklamaya yardımcı olur.
Derlemede gen–mekanizma ilişkileri nasıl özetleniyor?
| Hücresel sistem | Öne çıkan gen/proteinler | Bozulduğunda temel sorun | Diğer yollarla bağlantısı |
|---|---|---|---|
| α-sinüklein proteostazı | SNCA | Yanlış katlanma, oligomerizasyon, fibril ve Lewy patolojisi | Mitokondri, lizozom, otofaji ve sinaptik vezikül sistemlerini etkileyebilir |
| Lizozomal işlev | GBA1, ATP13A2, VPS35 | Degradasyon, lipid homeostazı ve enzim taşınmasının bozulması | α-sinüklein birikimini ve mitokondri kalite kontrolünü etkiler |
| Mitokondri kalite kontrolü | PINK1, PRKN, DJ-1 | Mitofaji azalması, ROS artışı, solunum ve enerji sorunları | Oksidatif stres, inflamasyon ve protein agregasyonunu güçlendirebilir |
| Sinaptik vezikül sistemi | LRRK2, SYNJ1, DNAJC6 | Endositoz, uncoating, recycling ve nörotransmiter salınım bozukluğu | Dopamin homeostazı ve oksidatif yük etkilenebilir |
| Endozomal trafficking | VPS35, LRRK2 | Retromer ve membran taşınmasının bozulması | Lizozomal enzim dağıtımı ve sinaptik proteinlerin sürdürülmesi etkilenebilir |
| Redoks savunması | DJ-1, PRKN | ROS tamponlama kapasitesinin azalması ve oksidatif hasar | Mitokondri, lipidler ve α-sinüklein agregasyonu etkilenebilir |
| Nöroinflamasyon | NLRP3 inflammazomu, mikroglial aktivasyon | Kronik sitokin ve inflamatuvar mediyatör üretimi | ROS ve mitokondri bozukluğunu artırarak nöronal hasarı güçlendirebilir |
Terapötik hedefler hangi gruplarda toplanıyor?
| Hedef alanı | Kaynakta tartışılan yaklaşım | Biyolojik gerekçe | Yorum sınırı |
|---|---|---|---|
| Lizozom / GCase | GCase aktivitesini artıran küçük moleküllü şaperonlar | Lizozomal degradasyonu iyileştirmek ve α-sinüklein yükünü azaltmak | Derleme bunları kesin hastalık-modifiye edici standart olarak göstermiyor |
| Otofaji | TFEB aktivatörleri ve mTOR sinyal modülatörleri | Agregat protein ve hasarlı organel temizliğini artırmak | Araştırma aşamasındaki mekanistik yaklaşımlar |
| Mitokondri | PINK1–Parkin, mitofaji, mitokondriyal biyogenez ve ROS hedefleme | Enerji üretimi ve kalite kontrolünü korumak | Kaynak çeşitli deneysel yaklaşımları sentezler; yeni klinik etkililik deneyi yapmaz |
| LRRK2 | LRRK2 kinaz inhibitörleri | Veziküler trafficking ve endolizozomal homeostazı iyileştirmek | Klinik sonuç bu derlemede kanıtlanmamaktadır |
| α-sinüklein | Agregatlara karşı monoklonal antikorlar ve fibrilizasyonu hedefleyen küçük moleküller | Ekstrasellüler tohumlanmayı, yayılımı veya agregasyonu azaltmak | Aktif araştırma alanıdır |
| Nöroinflamasyon | Mikroglial aktivasyon ve inflammazom sinyallemesini hedefleme | Progresyonla ilişkili inflamatuvar nörotoksisiteyi azaltmak | Derleme tedavi standardı ilan etmemektedir |
| Bağırsak mikrobiyotası | Diyet, probiyotik ve microbiota-directed yaklaşımlar | Periferik immün/metabolik sinyallemeyi modüle etmek | Keşfedilmekte olan bir tedavi araştırma alanıdır |
Bu Derleme Yeni Bir Parkinson Tedavisinin Etkili Olduğunu Gösteriyor mu?
Hayır. Bu makale yeni bir ilacı, biyolojik ürünü veya kombinasyon tedavisini kontrollü klinik deneyde test etmemektedir; terapötik bölüm mevcut mekanistik ve deneysel literatürü sentezleyerek GCase, otofaji, mitofaji, LRRK2, α-sinüklein, inflamasyon ve mikrobiyota gibi araştırma hedeflerini tartışmaktadır. Bu nedenle “umut verici biyolojik hedef” ile “hastalığın seyrini hastalarda kanıtlanmış biçimde değiştiren tedavi” birbirinden ayrılmalıdır.
Neden kombinasyon stratejileri tartışılıyor?
Birbirini güçlendiren çoklu patojenik yollar nedeniyle yalnız tek hedefi düzeltmenin bütün sistemi normalleştirmeyebileceği düşünülmektedir. Derleme bu nedenle mitokondri, lizozom/proteostaz ve inflamasyon gibi birden fazla ortak patojenik düğümü birlikte hedefleyen yaklaşımların gelecekte önemli olabileceğini öne sürmektedir.
Gelecekte hangi araştırmalara ihtiyaç var?
Kaynak özellikle patojenik olayların zamansal sırasının, Parkinson alt tiplerinin heterojenliğinin ve periferik mekanizmalar ile merkezi sinir sistemi mekanizmalarının göreli katkısının henüz tam çözülmediğini belirtmektedir. Gelecekte longitudinal çalışmalar, multi-omics yaklaşımları ve systems biology analizlerinin bu ilişkileri zaman içinde daha iyi tanımlaması beklenmektedir.
Daha iyi hastalık alt-tiplemesi, biyobelirteç geliştirilmesi ve mekanizma-temelli hasta sınıflandırması precision medicine yaklaşımlarının temelini oluşturabilir. Ancak kaynak bunların henüz geleceğe dönük araştırma hedefleri olduğunu açık biçimde korumaktadır.
Çalışmanın Yöntemi ve Bulguları
Bu çalışma hangi araştırma türüdür?
Bu çalışma Review olarak yayımlanmış bir bilimsel derlemedir. Yeni hasta örneklemi, hayvan kohortu, hücre kültürü deneyi veya yeni omics veri seti üretmemektedir. Makalenin bilimsel görevi farklı genetik, moleküler, hücresel, deneysel ve klinik araştırmalardan gelen bilgileri ortak Parkinson patogenezi çerçevesinde sentezlemektir.
Sistematik derleme veya meta-analiz midir?
Kaynakta PRISMA akış diyagramı, sistematik veritabanı arama protokolü, arama tarihleri, anahtar kelime stratejisi, dahil etme/dışlama kriterleri, çalışma kalite puanlaması, risk-of-bias değerlendirmesi veya meta-analitik etki büyüklüğü hesabı raporlanmamaktadır. Bu nedenle Verianla makalesi kaynağı sistematik derleme veya meta-analiz olarak adlandırmamaktadır.
Derlemenin literatür boşluğu nedir?
Yazarların çıkış noktası, önceki birçok derlemenin Parkinson'daki α-sinüklein, mitokondri, lizozom veya inflamasyon gibi mekanizmaları ayrı başlıklar altında incelemesine karşılık giderek artan kanıtların bu süreçlerin yoğun biçimde birbirine bağlı olduğunu göstermesidir. Bu makale mekanizmaları ayrı silolar halinde değil, karşılıklı geri besleme sistemi olarak açıklamayı hedeflemektedir.
Derlemenin kanıt kaynakları hangi türlerden oluşuyor?
Kaynakça genetik association ve genomik çalışmalar, α-sinüklein biyolojisi, deneysel hayvan modelleri, hücresel mekanizma çalışmaları, insan dopaminerjik hücre modelleri, lizozom ve mitofaji çalışmaları, multi-omics araştırmaları, periferik organ–beyin eksenleri, deri biyopsisi araştırmaları ve terapötik araştırmalar gibi farklı kanıt katmanlarından oluşmaktadır. Bu çeşitlilik bütüncül sentezin güçlü yönüdür; ancak çalışmaların metodolojileri aynı değildir.
Kaynakta yeni istatistiksel analiz var mı?
Hayır. Makale yeni p-değeri, confidence interval, effect size, regression modeli veya meta-analitik pooled estimate üretmemektedir. Kaynakta matematiksel formül veya denklem bulunmamaktadır. Verianla bu nedenle kaynağa ait olmayan istatistiksel veya matematiksel hesap eklememektedir.
Derlemenin ana sentez bulguları
- α-sinüklein agregasyonu Parkinson patolojisinin merkezî bileşenlerinden biridir fakat tek başına bütün hastalığı açıklamaz.
- GBA1/GCase–α-sinüklein ilişkisi lizozomal lipid metabolizması ile protein agregasyonu arasında çift yönlü patojenik bağ oluşturabilir.
- ATP13A2 ve VPS35 gibi proteinler lizozomal ve endozomal homeostazın Parkinson patogenezindeki önemini destekler.
- PINK1–Parkin yolu hasarlı mitokondrilerin mitofajiyle temizlenmesinde merkezî kalite kontrol mekanizmasıdır.
- PINK1 veya PRKN işlev kaybı hasarlı mitokondri ve ROS birikimini artırabilir.
- DJ-1 redoks savunması ve mitokondriyal stres direnci açısından önemlidir.
- Oksidatif stres hem mitokondri ve lizozom bozukluğunun sonucu hem de α-sinüklein agregasyonu ve inflamasyonun upstream güçlendiricisi olabilir.
- Demir dengesizliği ve lipid peroksidasyonu dopaminerjik nöronların oksidatif yükünü artırabilir.
- Sinaptik ve veziküler trafficking bozuklukları belirgin nöron kaybından önce ortaya çıkabilecek erken patolojik olaylardandır.
- LRRK2, SYNJ1, DNAJC6 ve VPS35 sinaptik/endosomal taşıma sistemlerinin Parkinson patogenezindeki önemini destekler.
- Mikroglial aktivasyon ve NLRP3 inflammazomu kronik nöroinflamatuvar geri beslemelere katkıda bulunabilir.
- Bağırsak–beyin ekseni önemli periferik araştırma alanıdır; karaciğer, dalak ve deri ile ilişkili yollar da gelişmekte olan ek modülatörlerdir.
- Farklı genetik Parkinson biçimlerinin ortak patolojik özellikleri, farklı genlerin aynı hücresel ağlarda yakınsamasıyla kısmen açıklanabilir.
Çalışmanın desteklediği sonuçlar
- Parkinson hastalığı çoklu ve birbirine bağlı hücresel mekanizmalarla ilişkilidir.
- α-sinüklein, mitokondri, lizozom, otofaji, sinaptik trafficking, redoks dengesi ve inflamasyon arasında çift yönlü ilişkiler bulunmaktadır.
- Parkinson ile ilişkili genler farklı proteinleri etkilese bile ortak hücresel kalite kontrol sistemlerinde yakınsama gösterebilir.
- Dopaminerjik nöronların özel fizyolojik özellikleri bu hücreleri enerji ve proteostaz bozukluklarına karşı kırılgan hale getirebilir.
- Periferik organlar ve sistemik bağışıklık Parkinson araştırmalarında dikkate alınması gereken ek katmanlardır.
- Hastalık-modifiye edici araştırmalar tek bir mekanizmanın ötesinde ortak patojenik düğümleri hedeflemeye yönelmektedir.
Çalışmanın desteklemediği sonuçlar
- Parkinson hastalığının tek ve kesin nedeni belirlenmiş değildir.
- Bütün Parkinson vakalarının α-sinüklein patolojisinin bağırsakta başladığı gösterilmemiştir.
- Karaciğer, dalak veya deri eksenlerinin bütün hastalarda nedensel başlangıç mekanizması olduğu gösterilmemiştir.
- Bir gen varyantının tek başına bütün Parkinson patogenezini açıkladığı gösterilmemiştir.
- Derleme yeni bir biyobelirtecin klinik tanıda kesin doğruluğunu test etmemektedir.
- GCase şaperonları, TFEB/mTOR modülatörleri, LRRK2 inhibitörleri veya α-sinüklein antikorlarının bu derlemede hastalık-modifiye edici klinik etkinliği kanıtlanmamaktadır.
- Bağırsak mikrobiyotası müdahalesinin Parkinson hastalığını önlediği veya tedavi ettiği bu makalede gösterilmemiştir.
- Derleme yeni randomize kontrollü klinik çalışma değildir.
- Derleme yeni meta-analiz veya yeni nicel risk tahmini sunmamaktadır.
Derlemenin güçlü yönleri
Derlemenin temel güçlü yönü Parkinson patogenezini tek bir molekül veya organelle sınırlamamasıdır. Genetik risk, protein agregasyonu, organel kalite kontrolü, hücresel enerji, sinaptik taşıma, redoks dengesi, bağışıklık yanıtı ve periferik organ sistemleri aynı çerçevede ilişkilendirilmiştir.
İkinci güçlü yön, ailevi ve sporadik Parkinson biçimlerinin ortak patolojik düğümlerde nasıl yakınsayabileceğine açıklayıcı bir mekanistik çerçeve sunmasıdır.
Üçüncü güçlü yön, hücre içi biyoloji ile terapötik hedefleri birbirine bağlarken gelecekteki tedavi araştırmalarını tek bir “mucize hedef” üzerine kurmamasıdır.
Derlemenin temel sınırlılıkları
Birinci sınırlılık: Kaynak sistematik derleme metodolojisi sunmamaktadır. Literatürün hangi veritabanlarından, hangi arama terimleriyle ve hangi dahil etme/dışlama kriterleriyle seçildiği raporlanmadığından çalışma seçimi ve kapsamının tekrarlanabilirliği sistematik review düzeyinde değildir.
İkinci sınırlılık: Bir araya getirilen kanıtlar genetik çalışmalar, hayvan modelleri, hücresel deneyler, insan doku/biyopsi çalışmaları ve klinik araştırmalar gibi farklı kanıt seviyelerinden gelmektedir. Her bulgu aynı doğrudan klinik kanıt gücüne sahip değildir.
Üçüncü sınırlılık: Patojenik olayların zaman içindeki gerçek sırası henüz kesin değildir. Mitokondri bozukluğunun mı, α-sinüklein agregasyonunun mı, lizozomal yetersizliğin mi veya inflamasyonun mı belirli bir hastada ilk baskın olay olduğu değişebilir.
Dördüncü sınırlılık: Parkinson hastalığı heterojendir. Farklı genetik, klinik ve patolojik alt tiplerde aynı mekanizmaların göreli ağırlığı farklı olabilir.
Beşinci sınırlılık: Periferik organ–beyin eksenlerinin merkezi mekanizmalarla göreli katkısı tam olarak çözülmemiştir.
Altıncı sınırlılık: Terapötik hedeflerin mekanistik olarak makul olması, klinik hastalık-modifiye edici etkinliğin kanıtlandığı anlamına gelmez.
Gelecek araştırma yönleri
Kaynak gelecekte longitudinal hasta çalışmaları, multi-omics veri entegrasyonu, systems biology, hastalık alt tiplerinin daha ayrıntılı sınıflandırılması ve periferik-merkezi mekanizmaların zaman içindeki ilişkilerinin araştırılmasını öncelikli alanlar olarak görmektedir.
Bu yaklaşım, biyobelirteçlerin yalnız tanı amacıyla değil; hasta sınıflandırması, hastalık aktivitesinin izlenmesi ve tedavi yanıtının takip edilmesi için kullanılabileceği precision-medicine modellerine zemin hazırlayabilir.
Kaynak ve Yöntem Notu
Özgün başlık: Integrated Mechanisms Driving Parkinson’s Disease Pathogenesis.
Yazarlar ve sıra: Ayesha Kashif, In Sik Kim.
Eş katkı: Kaynakta eşit katkı bildirimi bulunmamaktadır.
Sorumlu yazar: In Sik Kim.
Kurum 1: School of Medicine, The University of Notre Dame Australia, Sydney 2010, Australia.
Kurum 2: Department of Senior Healthcare, Graduate School, Eulji University, Uijeongbu 11759, Korea.
Kurum 3: Department of Biomedical Laboratory Science, College of Health Science, Eulji University, Uijeongbu 11759, Korea.
Dergi: Biomedical Science Letters.
Yayımlayan bilimsel kuruluş: The Korean Society for Biomedical Laboratory Sciences.
Cilt / sayı / sayfalar: 32(2), 133–142.
DOI: 10.15616/BSL.2026.32.2.133.
Yayın dönemi: Haziran 2026 sayısı.
Received: 2 Haziran 2026.
Revised: 15 Haziran 2026.
Accepted: 17 Haziran 2026.
Kaynak türü: Review / bilimsel derleme.
Hakemlik durumu: Yayımlanmış dergi derlemesidir ve Received–Revised–Accepted yayın süreci raporlanmıştır. Kaynak PDF ayrıca ayrı bir “peer-reviewed” etiketi vermemektedir.
Preprint durumu: Sağlanan kaynak preprint değil, yayımlanmış dergi PDF'sidir.
Lisans: Creative Commons Attribution Non-Commercial. Sağlanan PDF lisansın sürüm numarasını açıkça yazmadığından Verianla sürüm numarası uydurmamaktadır.
eISSN: 2288-7415.
ORCID: Ayesha Kashif — 0000-0002-2891-044X; In Sik Kim — 0000-0001-6072-8990.
Acknowledgement: None.
Funding: None.
Çıkar çatışması: Yazarlar makaleyle ilgili potansiyel çıkar çatışması bildirmemiştir.
Yazar katkıları: Conceptualization: Ayesha Kashif; Supervision: In Sik Kim; Writing – original draft: Ayesha Kashif.
Veri erişilebilirliği: Kaynakta ayrı bir Data Availability Statement bulunmamaktadır. Bu bir review makalesi olduğundan yeni özgün deney veri seti raporlanmamaktadır.
Kaynakça: Derleme 32 bibliyografik kaynağa dayanmaktadır.
Sistematik derleme durumu: PRISMA, sistematik arama protokolü, dahil etme/dışlama kriterleri, risk-of-bias veya meta-analiz raporlanmadığı için sistematik derleme olarak etiketlenmemiştir.
Formül/istatistik durumu: Kaynakta matematiksel denklem, yeni istatistiksel model, yeni p-değeri veya meta-analitik etki büyüklüğü bulunmamaktadır. Verianla kaynakta olmayan formül üretmemiştir.
Temel genetik düğümler: SNCA, LRRK2, GBA1, PINK1, PRKN, DJ-1, VPS35 ve ATP13A2.
Temel patojenik süreçler: α-sinüklein agregasyonu; lizozomal bozukluk; otofaji ve mitofaji yetersizliği; mitokondriyal işlev kaybı; oksidatif stres ve redoks dengesizliği; sinaptik ve endozomal trafficking bozuklukları; nöroinflamasyon.
Periferik mekanizmalar: Bağırsak–beyin ekseni; gelişmekte olan karaciğer–beyin, dalak–beyin ve deri–beyin ilişkileri.
Terapötik araştırma alanları: GCase/lizozom, TFEB ve mTOR aracılı otofaji, PINK1–Parkin ve mitokondri kalite kontrolü, LRRK2 kinaz, α-sinüklein agregasyonu/yayılımı, mikroglial ve inflammazom sinyalleme, bağırsak mikrobiyotası.
Kritik klinik sınır: Derleme yeni ilaç etkinliği veya hasta tedavi başarısı göstermemektedir. Terapötik yaklaşımlar literatürdeki araştırma yönleri olarak değerlendirilmiştir.
Kritik nedensellik sınırı: Birbirine bağlı mekanizmalar güçlü biyolojik ve deneysel destek taşısa da her Parkinson hastasında aynı olayın ilk neden olduğu veya bütün mekanizmaların aynı sırada ilerlediği gösterilmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir