


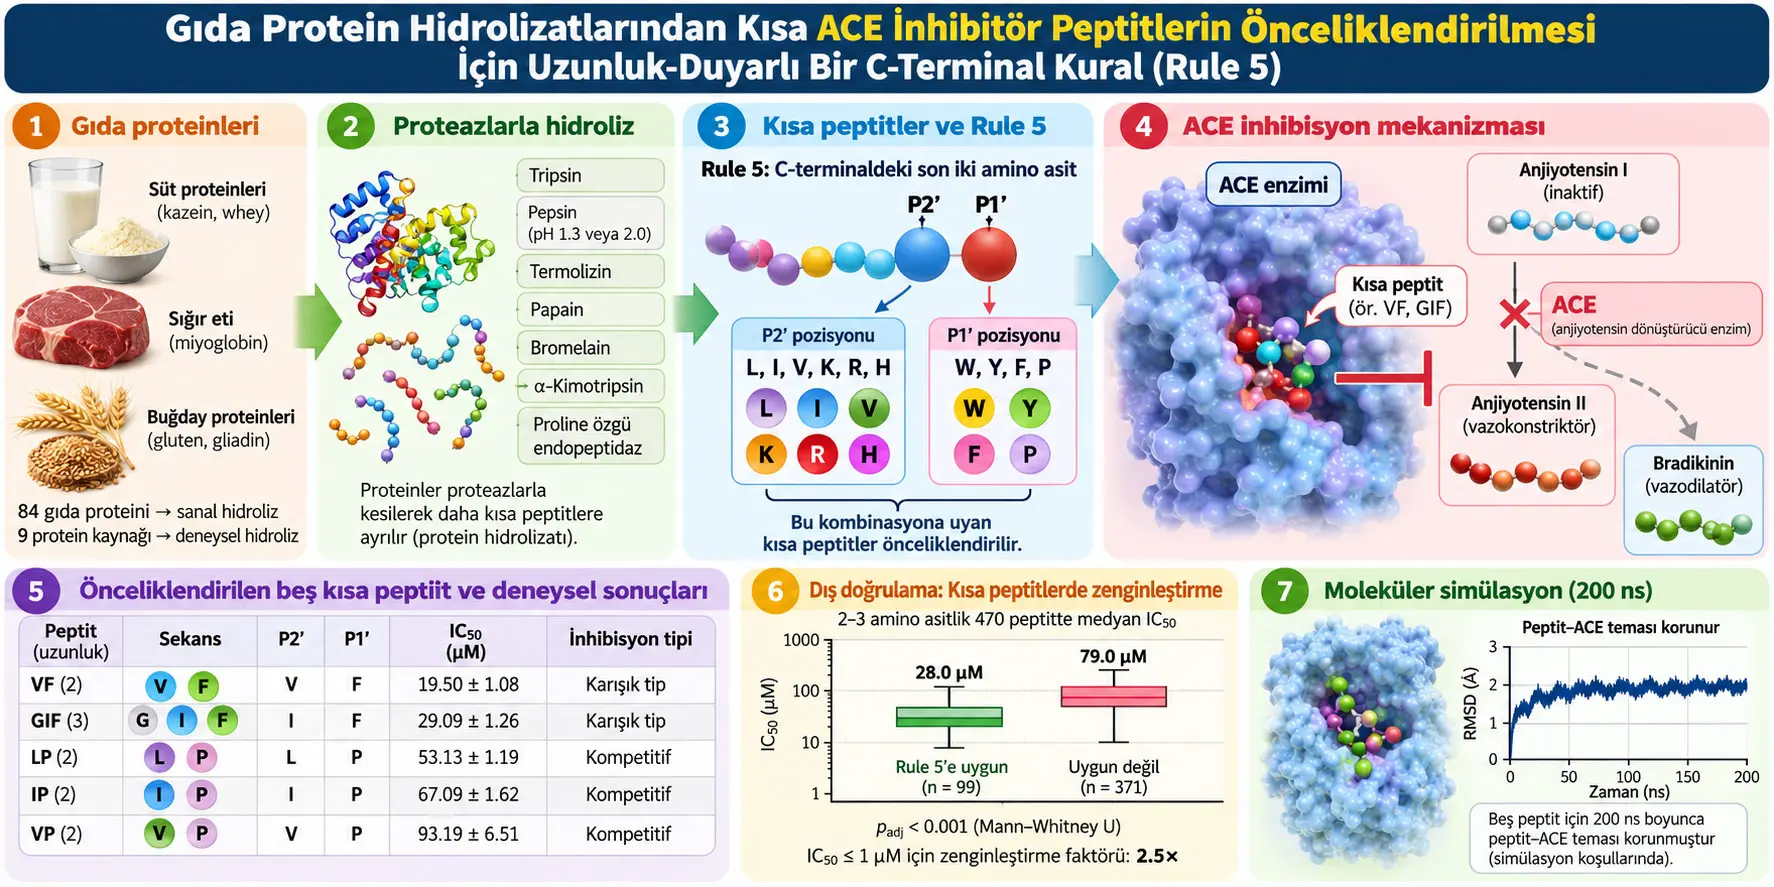
Anjiyotensin dönüştürücü enzim, İngilizce adıyla angiotensin-converting enzyme (ACE), kan basıncının düzenlenmesinde rol oynayan ve bazı kısa peptitler tarafından inhibe edilebilen bir enzimdir. Bu çalışma, gıda proteinlerinin proteazlarla hidrolizinden oluşabilecek ACE inhibitör peptit adaylarını daha deney yapılmadan önce önceliklendirmek amacıyla uzunluk-duyarlı bir C-terminal tarama kuralı geliştirmiştir. Araştırmacıların “Rule 5” olarak adlandırdığı kural, peptidin son amino asidi olan P1′ konumunda W, Y, F veya P; sondan ikinci amino asit olan P2′ konumunda ise L, I, V, K, R veya H bulunmasını arar. Kural 24 protein–proteaz hidrolizatında geliştirilmiş, daha sonra 16 ticari protein hidrolizatında bağımsız olarak değerlendirilmiş ve 1429 nicel ACE inhibitör peptit içeren dış veri kümesiyle peptit uzunluğuna göre sınanmıştır.
Rule 5’in 24 hidrolizatlık geliştirme kümesindeki frekansı ACE inhibisyonuyla r = 0.711, p < 0.001, \( \log_{10}(1/IC_{50}) \) ile r = 0.741, p < 0.001 korelasyon göstermiştir. Ancak Rule 3 ile ACE inhibisyonu korelasyonu arasındaki sayısal fark Steiger Z-testinde anlamlı değildir; dolayısıyla “Rule 5, Rule 3’ten istatistiksel olarak kesin biçimde üstündür” sonucu çıkarılamaz. Bağımsız 16 ticari hidrolizatta Rule 5 frekansı ACE inhibisyonuyla r = 0.608, \( \log_{10}(1/IC_{50}) \) ile r = 0.581 düzeyinde ilişki göstermiştir.
VF, GIF, LP, IP ve VP adlı beş kısa peptit; sanal proteolizde üretilme tahmini, Rule 5’e uyum ve deneysel hidrolizatların düşük-kütle MALDI bölgesinde bunlarla ilişkilendirilebilecek sinyal bulunması ölçütlerinin kesişiminden seçilmiştir. Bağımsız olarak sentezlenen beş peptidin tamamı ACE’yi inhibe etmiş; IC50 değerleri 19.50–93.19 µM arasında bulunmuştur. VF ve GIF karışık tip, LP, IP ve VP ise kompetitif inhibisyon sergilemiştir.
Çalışmanın en önemli sınırı peptit uzunluğudur. 1429 ACE inhibitör peptit birlikte değerlendirildiğinde Rule 5’e uyan ve uymayan peptitlerin IC50 dağılımları arasında anlamlı fark görülmemiştir. Buna karşılık yalnız 2–3 amino asitlik 470 peptit ele alındığında Rule 5’e uyanların medyan IC50 değeri 28.0 µM, uymayanlarınki 79.0 µM olmuş ve fark çoklu test düzeltmesinden sonra da anlamlı kalmıştır. Bu nedenle Rule 5, tüm uzunluklardaki ACE inhibitör peptitleri tahmin eden evrensel bir model değil; özellikle dipeptit ve tripeptitler için aday havuzunu zenginleştiren bir ilk geçiş önceliklendirme filtresidir.
Çalışma bir antihipertansif ilaç etkinliği veya klinik tedavi çalışması değildir. İnsanlarda kan basıncı düşüşü, gastrointestinal dayanıklılık, bağırsaktan gerçek emilim, gıda matriksi içindeki davranış ve in vivo antihipertansif etki bu araştırmada test edilmemiştir.
Detaylı Açıklama
ACE neden önemlidir?
ACE, renin–anjiyotensin sistemi içinde anjiyotensin I’in vazokonstriktör anjiyotensin II’ye dönüşümüne katkı sağlayan ve aynı zamanda vazodilatör bradikinini parçalayan bir enzimdir. Bu nedenle ACE aktivitesinin azaltılması kan basıncı düzenlenmesi açısından farmakolojik olarak önemli bir hedeftir. Bununla birlikte bu çalışma, gıdadan elde edilen peptitlerin insanlarda antihipertansif tedavi yerine kullanılabileceğini göstermemektedir. Araştırmanın konusu, ACE inhibisyonu gösterebilecek kısa peptitlerin laboratuvar ve hesaplamalı yöntemlerle daha verimli biçimde seçilebilmesidir.
Protein hidrolizatı ve ACE inhibitör peptit nedir?
Bir protein, proteaz adı verilen protein-parçalayıcı enzimlerle kesildiğinde daha kısa peptit parçalarına ayrılır. Bu parçaların karışımına protein hidrolizatı denir. Oluşan peptitlerin tamamı aynı biyolojik özelliğe sahip değildir. Bazı sekanslar ACE’ye bağlanarak enzimin aktivitesini azaltabilir; bunlar ACE inhibitör peptitler olarak adlandırılır.
Pratik sorun şudur: bir proteinin enzimatik hidrolizi yüzlerce farklı peptit oluşturabilir. Her peptidi tek tek ayırmak, tanımlamak, sentezlemek ve IC50 ölçmek zaman ve kaynak gerektirir. Çalışmanın temel sorusu bu yüzden “Protein–proteaz kombinasyonlarından hangileri, kısa ACE inhibitör peptit oluşturma bakımından önce incelenmelidir?” şeklindedir.
Rule 5 Nedir ve Hangi Peptitlerde Kullanılmalıdır?
Rule 5, peptidin C-terminalindeki son iki amino asit konumunu kullanan basit bir önceliklendirme filtresidir: P1′ konumu W, Y, F veya P; P2′ konumu L, I, V, K, R veya H olduğunda peptit kurala uygun kabul edilir. Dış doğrulama, bu filtrenin anlamlı zenginleştirme gücünün esas olarak 2–3 amino asitlik dipeptit ve tripeptitlerde bulunduğunu göstermiştir; daha uzun peptitlere evrensel biçimde uygulanmamalıdır.
Rule 5’in açık gösterimi
| Peptitteki konum | Çalışmadaki anlamı | Rule 5 için kabul edilen amino asitler |
|---|---|---|
| P1′ | C-terminal, yani peptidin son amino asidi | W, Y, F, P |
| P2′ | C-terminalden bir önceki amino asit | L, I, V, K, R, H |
Tek harfli amino asit kodlarının açılımı şöyledir: W = triptofan, Y = tirozin, F = fenilalanin, P = prolin, L = lösin, I = izolösin, V = valin, K = lizin, R = arjinin ve H = histidin.
P1′ ve P2′ adlandırmasında önemli nomenklatür ayrımı
Bu çalışmada P1′ terimi ACE inhibitör peptit QSAR literatüründeki kullanım doğrultusunda peptidin doğrudan C-terminal amino asidi için, P2′ ise sondan ikinci amino asit için kullanılmıştır. Yazarlar bunun özgün Schechter–Berger proteaz kesim nomenklatüründeki P1′ tanımıyla aynı olmadığını açıkça belirtmektedir. Bu nedenle makaledeki P1′ ve P2′ işaretleri okunurken mutlaka bu çalışmanın kendi operasyonel tanımı kullanılmalıdır.
Rule 5 nasıl türetildi?
Araştırmacılar önce daha önce yayımlanmış dört yapı–aktivite yaklaşımındaki C-terminal tercihlerinin ortak noktalarını karşılaştırmıştır. Dört modelin ortak P1′ çekirdeği W, Y, F ve P olarak belirlenmiştir. Rule 3’ün P2′ kümesi ise L, I, V, K, R, H, W, Y ve F amino asitlerini içeriyordu.
Rule 5 oluşturulurken Rule 3’ün P2′ kümesindeki aromatik W, Y ve F çıkarılmış ve P2′ kümesi L, I, V, K, R ve H ile sınırlandırılmıştır. Yazarlar bu işlemi hem 24 hidrolizatlık geliştirme kümesindeki ampirik performansa hem de ACE S2′ alt cebinin yapısal özelliklerine dayanan bir model sadeleştirme adımı olarak sunmaktadır. Rule 5, S2′ bağlanmasının “tek ve kesin doğru biyokimyasal yasası” olarak ileri sürülmemektedir.
Neden peptit uzunluğu kritik?
Dipeptit ve tripeptitlerde C-terminaldeki iki amino asit toplam sekansın çok büyük bölümünü oluşturur. Örneğin bir dipeptitte P1′ ve P2′ zaten peptidin tamamıdır. Bir tripeptitte ise üç amino asidin ikisini tarif eder. Buna karşılık 8 veya 12 amino asitlik bir peptitte aynı iki terminal amino asit tüm yapının yalnız küçük bir bölümünü temsil eder. Geri kalan amino asitler konformasyonu, sterik hacmi, elektrostatik etkileşimleri ve enzime temas biçimini değiştirebilir.
Bu nedenle çalışmanın “uzunluk-duyarlı” olması yalnız istatistiksel bir ayrıntı değildir; Rule 5’in ne zaman anlamlı bilgi taşıdığını belirleyen ana bilimsel sınırdır.
Araştırmanın genel iş akışı
| Aşama | Ne yapıldı? | Bilimsel görevi |
|---|---|---|
| 1 | Dört yayımlanmış C-terminal yapı–aktivite kuralı karşılaştırıldı. | Ortak amino asit tercihlerini belirlemek. |
| 2 | 84 gıda proteini sekiz proteolitik koşulda BIOPEP-UWM ile sanal olarak hidrolize edildi. | Protein–proteaz aday uzayını taramak. |
| 3 | 24 protein–proteaz kombinasyonu düşük, orta ve yüksek P1′ frekans tabakalarından seçildi. | Rule 5’in türetildiği geliştirme kümesini oluşturmak. |
| 4 | 16 ticari protein hidrolizatı bağımsız değerlendirmede kullanıldı. | Kuralın geliştirme kümesi dışındaki hidrolizatlarda yönünü koruyup korumadığını test etmek. |
| 5 | VF, GIF, LP, IP ve VP seçildi, sentezlendi ve ACE inhibisyonu ölçüldü. | Önceliklendirilen adayların gerçekten ACE inhibisyonu gösterebildiğini biyokimyasal olarak sınamak. |
| 6 | 1429 nicel ACE inhibitör peptit uzunluklara göre dış benchmark analizine alındı. | Rule 5’in uygulanabilirlik alanını belirlemek. |
| 7 | Docking ve beş aday için 200 ns moleküler dinamik simülasyonu yapıldı. | Deneysel sonucu kanıtlamak değil, kısa peptitlerin yapısal davranışını destekleyici biçimde yorumlamak. |
IC50 Nedir ve Düşük IC50 Ne Anlama Gelir?
IC50, bir inhibitörün ölçülen enzim aktivitesini belirli deney koşullarında %50 azaltmak için gereken konsantrasyondur. Aynı deney sistemi içinde daha düşük IC50, daha az maddeyle aynı %50 inhibisyon düzeyine ulaşıldığı için daha yüksek inhibitör güç anlamına gelir; ancak farklı deney yöntemleri, substratlar veya reaksiyon koşullarında ölçülen IC50 değerleri doğrudan aynı kabul edilmemelidir.
\(\log_{10}(1/IC_{50})\) neden kullanılmış?
IC50 küçüldükçe inhibitör güç artar. Araştırmacılar korelasyon analizinde ayrıca \(1/IC_{50}\) kullanarak bu yönü tersine çevirmiştir: daha güçlü inhibitörde \(1/IC_{50}\) büyür. Ardından \(\log_{10}\) dönüşümü, geniş aralıktaki değerleri daha sıkıştırılmış bir ölçeğe taşır. Böylece yüksek Rule 5 frekansının artan inhibitör güçle pozitif korelasyon göstermesi daha doğrudan yorumlanabilir.
Kaynak, IC50 değerlerini inhibisyon–konsantrasyon verisine Hill denklemiyle doğrusal olmayan regresyon uygulayarak hesaplamıştır; ancak yayımlanan ana metinde kullanılan Hill fonksiyonunun tam parametrik cebirsel biçimi ayrıca yazılmadığı için burada kaynakta bulunmayan bir “özgün Hill denklemi” oluşturulmamaktadır.
Korelasyon neyi gösterir, neyi göstermez?
Pearson korelasyon katsayısı \(r\), iki nicel değişkenin doğrusal birlikte değişimini ölçer. \(r=1\) kusursuz pozitif doğrusal ilişkiyi, \(r=0\) doğrusal ilişki bulunmamasını, \(r=-1\) ise kusursuz negatif doğrusal ilişkiyi ifade eder. Ancak korelasyon nedensellik değildir. Rule 5 frekansı ile ACE inhibisyonunun birlikte artması, tek başına her Rule 5 peptidinin hidrolizat etkinliğine aynı oranda neden olduğunu kanıtlamaz.
Gerçek hidrolizatta bir peptidin ne kadar üretildiği; proteinin katlanması, kesim bölgelerine enzimin erişimi, hidroliz kinetiği, ürün inhibisyonu, peptit kararlılığı ve işlem koşulları gibi faktörlerden etkilenebilir. Rule 5 frekansı bu gerçek peptit bolluğunu ölçmez; yapısal olarak uygun sekansların teorik üretim potansiyelini temsil eder.
Çalışmanın söylediği
- Rule 5 frekansı, geliştirme kümesinde ACE inhibitör performansıyla güçlü pozitif ilişki göstermiştir.
- İlişkinin yönü 16 ticari hidrolizattan oluşan ayrı değerlendirme kümesinde de korunmuştur.
- Önceliklendirilen beş sentetik kısa peptidin tamamı laboratuvar ACE testinde inhibisyon göstermiştir.
- Dış peptit veri tabanında Rule 5, 2–3 amino asitlik peptitlerde daha güçlü inhibitörleri zenginleştirmiştir.
- Peptit uzunluğu arttıkça C-terminal iki-konum bilgisinin ayırt edici değeri hızla azalmıştır.
Çalışmanın söylemediği
- Rule 5’e uyan her peptidin güçlü ACE inhibitörü olduğu söylenemez.
- Rule 5 uzun peptitler için evrensel bir sınıflandırıcı değildir.
- Docking skoru gerçek bağlanma serbest enerjisi değildir.
- 200 ns boyunca temasın korunması, termodinamik bağlanma kararlılığını kanıtlamaz.
- MALDI düşük-kütle sinyalleri, hidrolizatta VF, GIF, LP, IP ve VP sekanslarının her birinin kesin tanımlandığını göstermez.
- Çalışma insanlarda kan basıncını düşürdüğünü göstermemiştir.
- Gastrointestinal sindirim dayanıklılığı, bağırsak emilim hızı ve fonksiyonel gıda içindeki gerçek biyoyararlanım ölçülmemiştir.
Çalışmanın Yöntemi ve Bulguları
1. Kullanılan proteinler ve proteazlar
Deneysel hidroliz için dokuz protein kaynağı kullanılmıştır: β-laktoglobulin A, κ-kazein, α-laktalbumin, laktoferrin, miyoglobin, gliadin, gluten, sığır eti ve yüksek proteinli süt tozu.
Hidrolizde yedi proteolitik enzim kullanılmıştır: tripsin, pepsin, termolizin, papain, bromelain, α-kimotripsin ve proline özgü endopeptidaz. Pepsin iki farklı pH koşulunda değerlendirildiği için sanal taramada toplam sekiz proteolitik koşul oluşmuştur.
2. Sanal hidroliz ve 672 protein–enzim kombinasyonu
BIOPEP-UWM’deki gıda proteinleri arasından ticari erişilebilirlik ölçütleriyle 84 protein başlangıç havuzuna alınmıştır. Her protein sekiz proteolitik koşul altında sanal olarak parçalanmış ve toplam:
\(84 \times 8 = 672\)
protein–enzim kombinasyonu değerlendirilmiştir.
Bunların 591’i, yani %87.9’u en az bir P1′-uygun peptit parçası üretmiştir. Kalan 81 kombinasyon %12.1’lik “Zero” sınıfına girmiştir.
Denklem 1: P1′ frekansı
\[ \mathrm{P1^\prime\ frequency}(\%)= \frac{N_{\mathrm{P1^\prime\in\{W,Y,F,P\}\ olan\ peptitler}}} {N_{\mathrm{toplam\ peptit\ parçası,\ uzunluk\geq2}}} \times100 \]
Bu formül neyi hesaplar? Sanal hidrolizde oluşması öngörülen en az iki amino asitlik peptitlerin ne kadarının W, Y, F veya P ile sonlandığını hesaplar.
Pay: P1′ konumunda W, Y, F veya P bulunan peptitlerin sayısıdır.
Payda: En az iki amino asit içeren tüm sanal peptit parçalarının sayısıdır.
Neden tek amino asitler dışlanmıştır? Tek amino asitlik bir ürünün P2′ konumu bulunmadığından iki-konumlu C-terminal kuralı uygulanamaz.
Birim: Sonuç yüzde olarak verilir ve boyutsuzdur.
P1′ frekans tabakaları
| Sınıf | P1′ frekans aralığı | Kombinasyon sayısı |
|---|---|---|
| High | %32.84–100 | 197 |
| Medium | %13.08–32.58 | 197 |
| Low | %0.36–13.01 | 197 |
| Zero | Kesim yok veya yalnız tek amino asitlik ürünler | 81 |
Rule geliştirme kümesi için High, Medium ve Low tabakalarının her birinden sekiz kombinasyon alınarak toplam 24 protein–proteaz kombinasyonu seçilmiştir.
3. Rule 5 frekansı
Her sanal protein–enzim kombinasyonu için Rule k frekansı kaynakta Denklem (2) ile tanımlanmıştır:
\[ \mathrm{Rule\ k\ frequency}(\%)= \frac{N_{\mathrm{rule\ k}}}{N_{\mathrm{total}}}\times100 \]
\(N_{\mathrm{rule\ k}}\), ilgili kuralın amino asit koşullarını sağlayan en az iki amino asitlik peptit sayısını; \(N_{\mathrm{total}}\) ise sanal hidrolizde oluşan en az iki amino asitlik toplam peptit sayısını gösterir.
Rule 5 için uygun bir peptit hem:
- \(\mathrm{P1^\prime}\in\{W,Y,F,P\}\)
- hem de \(\mathrm{P2^\prime}\in\{L,I,V,K,R,H\}\)
koşullarını birlikte sağlamalıdır.
4. Deneysel protein hidrolizi
Proteinler damıtılmış deiyonize suda %4 (w/v) düzeyinde çözülmüş veya disperse edilmiştir. Her protein–proteaz kombinasyonu için üç bağımsız hidroliz partisi hazırlanmış; parti başına 1 g protein ve %3 (w/w) enzim/substrat oranı kullanılmıştır.
| Proteaz | pH | Sıcaklık |
|---|---|---|
| Tripsin | 8.0 | 37 °C |
| Papain | 6.2 | 50 °C |
| Termolizin | 8.0 | 70 °C |
| Pepsin | 1.3 veya 2.0 | 37 °C |
| Bromelain | 8.0 | 50 °C |
| α-Kimotripsin | 8.0 | 37 °C |
| Proline özgü endopeptidaz | 7.0 | 35 °C |
Hidroliz, TNBS yöntemiyle serbest amino grupları takip edilerek hidroliz derecesinin plato yaptığı noktaya kadar sürdürülmüştür. Protein–proteaz kombinasyonuna bağlı olarak sonlanma süresi 0.33–4.0 saat arasında değişmiştir. pH gerektiğinde 1 M NaOH veya 1 M HCl ile hedef değerde tutulmuştur. Hidroliz sonrasında örnekler 100 °C’de 15 dakika ısıyla inaktive edilmiş, 12,100 × g’de 10 dakika ve 4 °C’de santrifüj edilmiş, liyofilize edilmiş ve −20 °C’de saklanmıştır.
Denklem 3: Hidroliz derecesi
\[ DH(\%)= \frac{L_t-L_0}{L_{\max}-L_0}\times100 \]
\(DH\): Hidroliz derecesidir.
\(L_t\): Hidrolizin \(t\) anındaki serbest amino grup miktarıdır.
\(L_0\): Başlangıçtaki serbest amino grup miktarıdır.
\(L_{\max}\): Tam asit hidrolizinden sonra ölçülen toplam serbest amino grup miktarıdır. Kaynakta tam hidroliz için 6 N HCl, 110 °C ve 24 saat koşulu kullanılmıştır.
Bu oran, protein zincirlerindeki peptit bağlarının ne ölçüde açıldığını dolaylı biçimde gösterir. Ancak çalışmanın önemli bulgularından biri, yüksek DH’nin otomatik olarak yüksek ACE inhibisyonu anlamına gelmemesidir. 24 kombinasyonda son DH yaklaşık %0.34–34.25 arasında değişmiş; bazı yüksek DH’li termolizin hidrolizatları orta düzeyde ACE inhibisyonu gösterirken bazı düşük DH’li proline özgü endopeptidaz hidrolizatları güçlü inhibisyon göstermiştir. Dolayısıyla yalnız “ne kadar çok kesildiği” değil, “hangi peptit sekanslarının oluştuğu” önemlidir.
5. ACE inhibisyon deneyi
ACE aktivitesi FAPGG, yani N-[3-(2-furyl)acryloyl]-Phe-Gly-Gly substratıyla ölçülmüştür. FAPGG son konsantrasyonu 0.5 mM’dir. Tavşan akciğerinden ACE kuyu başına 2 mU olarak kullanılmıştır.
- 20 µL test örneği
- 20 µL ACE
- 160 µL FAPGG çözeltisi
- Toplam reaksiyon hacmi: 200 µL
- Ön inkübasyon: 37 °C’de 10 dakika
- Tampon: 80 mM HEPES-NaOH, pH 8.3, 300 mM NaCl
- Ölçüm: 340 nm’de 20 dakika boyunca sürekli reaksiyon hızı
- Pozitif kontrol: 1 nM kaptopril
Denklem 4: ACE inhibisyon yüzdesi
\[ \mathrm{ACE\ inhibition}(\%)= \frac{\mathrm{Slope}_{blank}-\mathrm{Slope}_{sample}} {\mathrm{Slope}_{blank}}\times100 \]
\(\mathrm{Slope}_{blank}\): kaynak denkleminde “blank” olarak tanımlanan referans reaksiyon eğimidir.
\(\mathrm{Slope}_{sample}\): test örneğinin bulunduğu reaksiyonun absorbans değişim hızıdır.
FAPGG hidrolizinin hızı ACE aktivitesini temsil eder. Numune ACE’yi inhibe ettikçe substrat dönüşüm hızı azalır ve hesaplanan inhibisyon yüzdesi yükselir.
IC50 değerleri farklı örnek konsantrasyonlarında elde edilen inhibisyon–konsantrasyon verisine doğrusal olmayan Hill regresyonu uygulanarak hesaplanmıştır. Hidrolizat sonuçları üç bağımsız hidroliz partisinden, sentezlenmiş peptit sonuçları üç bağımsız deney tekrarından verilmiştir.
6. 24 hidrolizatlık geliştirme kümesinin sonuçları
0.5 mg mL−1 hidrolizat konsantrasyonunda ACE inhibisyonu %7.8 ile %96.3 arasında değişmiştir. En yüksek değer miyoglobin/proline özgü oligopeptidaz kombinasyonunda %96.3; en düşük değer κ-kazein/stem bromelain kombinasyonunda %7.8 olarak raporlanmıştır.
IC50 değerleri 0.03–2.75 mg mL−1 arasında değişmiştir. P1′ frekansı tek başına ACE inhibisyonuyla \(r=0.550, p=0.005\), \( \log_{10}(1/IC_{50}) \) ile \(r=0.503, p<0.05\) korelasyon göstermiştir.
İki-konumlu kurallar karşılaştırıldığında Rule 3 için korelasyonlar ACE inhibisyonunda \(r=0.691\), \( \log_{10}(1/IC_{50}) \) için \(r=0.704\) bulunmuştur. Rule 5 için değerler sırasıyla:
- ACE inhibisyonu: \(r=0.711, p<0.001\)
- \(\log_{10}(1/IC_{50})\): \(r=0.741, p<0.001\)
Rule 5’in ACE inhibisyonundaki \(r=0.711\) değeri Rule 3’ün \(r=0.691\) değerinden sayısal olarak yüksektir; fakat iki bağımlı korelasyonu karşılaştıran Steiger Z-testinde \(Z=0.42, p=0.674\) bulunmuştur. Bu nedenle geliştirme kümesinde Rule 5’in Rule 3’e karşı istatistiksel üstünlüğü kanıtlanmış değildir. Rule 5’in seçilmesi performans, sadelik ve sonraki bağımsız testlerin birlikte değerlendirilmesine dayanmaktadır.
7. 16 ticari hidrolizatla bağımsız değerlendirme
Dört ticari protein kaynağı — süt proteini, sığır proteini, buğday gluteni ve buğday gliadini — dört proteazla değerlendirilerek 16 kombinasyon oluşturulmuştur. Ticari proteinlerin farklı alt birim oranları bulunduğundan Rule 5 frekansı bileşime göre ağırlıklandırılmıştır.
Ağırlıklı frekans kaynakta şu mantıkla hesaplanmıştır:
\[ \mathrm{Ağırlıklı\ Rule\ 5\ frekansı} = \sum_i \left( \frac{\%\mathrm{alt\ birim}_i} {\sum \%\mathrm{alt\ birim}} \times \mathrm{Rule\ 5\ frekansı}_i \right) \]
| Protein | Enzim | Ağırlıklı Rule 5 frekansı (%) | ACE inhibisyonu (%) | IC50 (mg mL−1) |
|---|---|---|---|---|
| Süt proteini | Termolizin | 6.36 | 61.7 ± 0.5 | 0.39 ± 0.01 |
| Süt proteini | Pepsin, pH > 2 | 5.98 | 28.4 ± 1.4 | 0.92 ± 0.03 |
| Süt proteini | Papain | 5.28 | 9.4 ± 0.6 | 2.78 ± 0.05 |
| Süt proteini | Kimotripsin | 10.02 | 88.7 ± 0.2 | 0.18 ± 0.00 |
| Sığır proteini | Termolizin | 0.90 | 20.4 ± 1.4 | 1.26 ± 0.03 |
| Sığır proteini | Pepsin, pH > 2 | 4.34 | 15.9 ± 1.2 | 1.43 ± 0.02 |
| Sığır proteini | Papain | 2.88 | 18.7 ± 1.3 | 1.33 ± 0.01 |
| Sığır proteini | Kimotripsin | 5.46 | 78.6 ± 0.2 | 0.28 ± 0.00 |
| Buğday gluteni | Termolizin | 7.01 | 37.9 ± 0.7 | 0.68 ± 0.01 |
| Buğday gluteni | Pepsin, pH > 2 | 4.71 | 68.7 ± 0.5 | 0.36 ± 0.00 |
| Buğday gluteni | Papain | 4.81 | 11.8 ± 1.0 | 2.34 ± 0.04 |
| Buğday gluteni | Kimotripsin | 5.80 | 39.7 ± 0.8 | 0.67 ± 0.01 |
| Buğday gliadini | Termolizin | 7.10 | 47.6 ± 0.3 | 0.53 ± 0.01 |
| Buğday gliadini | Pepsin, pH > 2 | 3.24 | 25.7 ± 1.6 | 0.94 ± 0.01 |
| Buğday gliadini | Papain | 5.02 | 17.1 ± 0.5 | 1.36 ± 0.01 |
| Buğday gliadini | Kimotripsin | 4.73 | 30.1 ± 1.3 | 0.77 ± 0.01 |
Bu 16 kombinasyonda ağırlıklı Rule 5 frekansının ACE inhibisyonuyla korelasyonu r = 0.608, p < 0.05; \( \log_{10}(1/IC_{50}) \) ile korelasyonu r = 0.581, p < 0.05 olarak bulunmuştur.
Bu küme Rule 5’in amino asit tanımını değiştirmek için kullanılmadığı için araştırmadaki temel bağımsız hidrolizat değerlendirmesidir. Bununla birlikte 16 gözlem dört protein ve dört enzimin faktöriyel kombinasyonlarından oluştuğundan noktalar bütünüyle birbirinden bağımsız değildir. Protein kaynağı ve proteaz kimliği kontrol edildiğinde \( \log_{10}(1/IC_{50}) \) için kısmi korelasyon \(r=0.518, p=0.040\), serbestlik derecesi 8 olarak raporlanmıştır; yazarlar küçük örneklem nedeniyle istatistiksel gücün sınırlı olduğunu belirtmektedir.
8. MALDI-TOF/TOF taraması ve neden “kesin tanımlama” denmiyor?
24 hidrolizat MALDI-TOF/TOF ile incelenmiştir. Tam tarama aralığı m/z 200–2000’dir. Yüksek yoğunluklu iyonların bir bölümü CID-MS/MS analizine alınmış ve sekans atamaları sanal hidroliz tahminleriyle karşılaştırılmıştır.
VF, GIF, LP, IP ve VP beşlisi üç koşulun kesişiminde seçilmiştir:
- İlgili proteazla sanal hidrolizde oluşacağının tahmin edilmesi,
- Rule 5’e uyması,
- deneysel hidrolizatta peptitle ilişkilendirilebilecek düşük-kütle MALDI özelliği bulunması.
Ancak düşük m/z bölgesindeki matris girişimi ve kütle doğruluğu sınırlaması nedeniyle bu sinyaller kesin sekans tanımlaması olarak kabul edilmemiştir. Özellikle LP ve IP aynı elementel bileşime ve aynı öncül kütleye sahip izomerlerdir. Lösin ve izolösin izobarik olduğundan yalnız MALDI-TOF kütlesiyle birbirinden kesin olarak ayrılamamıştır.
Bu nedenle sonraki ACE inhibisyon değerleri hidrolizatta hangi izomerin kesin olarak bulunduğunu kanıtlamaz; bunlar bağımsız sentezlenmiş ve kimliği doğrulanmış peptitlerin biyokimyasal aktiviteleridir.
9. Beş sentezlenmiş peptidin ACE inhibitör gücü
| Peptit | P2′ | P1′ | IC50 (µM) | İnhibisyon tipi | Ki (µM) | Ki′ (µM) |
|---|---|---|---|---|---|---|
| VF | V | F | 19.50 ± 1.08 | Karışık tip | 11.2 ± 0.9 | 30.2 ± 2.1 |
| GIF | I | F | 29.09 ± 1.26 | Karışık tip | 16.8 ± 1.4 | 37.7 ± 2.8 |
| LP | L | P | 53.13 ± 1.19 | Kompetitif | 30.5 ± 2.6 | — |
| IP | I | P | 67.09 ± 1.62 | Kompetitif | 40.7 ± 3.2 | — |
| VP | V | P | 93.19 ± 6.51 | Kompetitif | 51.1 ± 4.5 | — |
Bu beş peptit içinde en düşük IC50 VF’de, en yüksek IC50 VP’de ölçülmüştür. Ancak beş örnekten hareketle “F ile biten bütün peptitler karışık tip, P ile biten bütün peptitler kompetitiftir” şeklinde evrensel bir mekanizma kurulamaz. Yazarlar da örneklemin küçük ve yapısal olarak kısıtlı olduğunu açıkça belirtmektedir.
10. Lineweaver–Burk analizi nasıl okunur?
Kaynakta başlangıç hızları 0.1, 0.2, 0.5, 0.75, 1.0, 1.5, 2.0, 3.0 ve 4.0 mM FAPGG konsantrasyonlarında; 0, 10, 25 ve 50 µM inhibitör varlığında ölçülmüştür.
Çalışmanın bulgusu olmayan, yalnız yöntemi açıklamak için verilen standart Lineweaver–Burk ilişkisi şöyledir:
\[ \frac{1}{V} = \frac{K_m}{V_{\max}} \frac{1}{[S]} + \frac{1}{V_{\max}} \]
Burada \(V\) başlangıç reaksiyon hızını, \([S]\) substrat konsantrasyonunu, \(K_m\) Michaelis sabitini ve \(V_{\max}\) maksimum reaksiyon hızını ifade eder.
Grafikte:
- y-kesişimi \(1/V_{\max}\),
- eğim \(K_m/V_{\max}\) olur.
LP, IP ve VP’de farklı inhibitör konsantrasyonlarına ait doğrular y-ekseninde aynı noktaya yaklaşmış; bu durum \(V_{\max}\)’ın yaklaşık korunup görünür \(K_m\)’nin değiştiği kompetitif inhibisyon modeliyle uyumlu bulunmuştur.
VF ve GIF’de doğrular ikinci bölgede kesişmiş; hem görünür \(K_m\) hem \(V_{\max}\) değiştiği için karışık tip inhibisyon modeli tercih edilmiştir. VF için \(K_i^\prime/K_i=2.7\), GIF için 2.2 bulunması, bu iki peptidin serbest ACE’ye daha yüksek afinite göstermesine karşın enzim–substrat kompleksine de bağlanabildiği modelle uyumludur.
11. Dış doğrulama: 1429 ACE inhibitör peptit
Rule 5’in geliştirme ve hidrolizat deneyleri dışındaki genellenebilirliğini değerlendirmek için AHTPDB, BIOPEP-UWM ve Milk Bioactive Peptide Database kaynaklarından nicel IC50 değeri bulunan 1429 benzersiz ACE inhibitör peptit birleştirilmiştir.
Veri kürasyonunda sayısal IC50 bulunmayan kayıtların çıkarılması, birimlerin µM’ye standardize edilmesi, molekül ağırlığı bilinmeden mg mL−1 veya mM verilen kayıtların dışlanması ve yinelenen sekansların birleştirilmesi gibi 12 basamaklı kalite kontrol uygulanmıştır.
Peptit uzunluğunun alt ve üst sınırları değiştirilerek toplam 87 uzunluk penceresi sınanmış; Rule 5’e uyan ve uymayan grupların IC50 dağılımları Mann–Whitney U testiyle karşılaştırılmış ve çoklu karşılaştırmalar Benjamini–Hochberg yanlış keşif oranı düzeltmesine tabi tutulmuştur.
Mann–Whitney ve \(p_{adj}\) neyi anlatır?
Mann–Whitney U testi iki grubun dağılımlarının konumunu parametrik normal dağılım varsayımına bağlı kalmadan karşılaştırır. Burada temel soru “Rule 5’e uyan peptitlerin IC50 değerleri, uymayanlardan sistematik olarak daha düşük mü?” sorusudur.
87 farklı uzunluk penceresi test edildiği için yalnız ham p değerlerine bakmak yalancı pozitif riskini artırır. Benjamini–Hochberg düzeltmesi bu çoklu test yükünü dikkate alır. \(p_{adj}\), bu düzeltmeden sonraki anlamlılık değeridir.
12. Rule 5’in gerçek uygulanabilirlik sınırı
| Peptit uzunluğu | Örnek sayısı | Temel sonuç | İstatistiksel yorum |
|---|---|---|---|
| Tüm uzunluklar | 1429 | Medyan IC50: Rule 5 uygun 44.3 µM; uygun olmayan 59.9 µM | p > 0.05; anlamlı ayrım yok |
| 2–3 aa | 470 | Medyan IC50: 28.0 µM ve 79.0 µM | z = −4.259; \(p_{adj}<0.001\) |
| 2–4 aa | 631 | Zenginleşme zayıflıyor | z = −2.991; \(p_{adj}=0.081\), düzeltmeden sonra anlamlı değil |
| 2–5 aa | Kaynakta pencere analizi | Zenginleşme daha da zayıflıyor | z = −1.946; p > 0.05 |
| ≥7 aa içeren bazı pencereler | Uzunluk penceresine bağlı | İlişkinin yönü tersine dönebiliyor | C-terminal motif tek başına yetersiz |
Bu sonuç, Rule 5’in ≤3 amino asit uygulanabilirlik sınırını tanımlayan en güçlü dış kanıttır.
Potansiyel daireselliği kontrol etmek için Wu ve arkadaşlarının önceki eğitim verisiyle çakışan 155 peptit çıkarıldığında bile 2–3 amino asitlik gruptaki zenginleşme \(z=-3.006, p=0.003\) ile korunmuştur. Buna karşılık 2–4 amino asit penceresi bu çıkarma sonrasında anlamlılığını korumamıştır.
13. Zenginleştirme faktörü nedir?
Çalışmadaki zenginleştirme faktörü şu mantıktadır:
\[ EF= \frac{\mathrm{Rule\ 5\ sonrasında\ güçlü\ peptit\ oranı}} {\mathrm{Filtrelenmemiş\ kümedeki\ güçlü\ peptit\ oranı}} \]
EF = 1 ise filtre güçlü peptit oranını değiştirmez. EF > 1 ise filtre, aday havuzunda güçlü peptitlerin oranını artırır.
| Potens eşiği | Filtre öncesi oran | Rule 5 sonrası oran | Zenginleştirme faktörü |
|---|---|---|---|
| IC50 ≤ 1 µM | %3.6 | %9.1 | 2.5× |
| IC50 ≤ 5 µM | %14.0 | %26.3 | 1.9× |
| IC50 ≤ 10 µM | %21.9 | %35.4 | 1.6× |
| IC50 ≤ 50 µM | %46.8 | %64.4 | 1.4× |
| IC50 ≤ 100 µM | %57.7 | %69.7 | 1.2× |
Rule 5, 470 kısa peptidin 99’unu seçmiştir; bu toplam havuzun yaklaşık %21.1’idir. Böylece adayların yaklaşık beşte birine odaklanırken özellikle çok güçlü, submikromolar inhibitörlerin oranını 2.5 kat artırmıştır. Bu bir “başarı garantisi” değildir; deneysel olarak test edilecek aday havuzunu daha verimli hale getiren bir ön filtreleme etkisidir.
14. Moleküler docking
Docking AutoDock Vina v1.2.7 ile insan testiküler ACE’nin C-domain kristal yapısı üzerinde gerçekleştirilmiştir. Kullanılan yapı PDB 1O86’dır. Kristal yapıdaki lisinopril ve su molekülleri çıkarılmış; katalitik Zn2+ iyonu ile iki klorür iyonu korunmuştur.
Peptitler üç bölgede değerlendirilmiştir:
- Site 1: katalitik Zn2+ bağlanma bölgesi,
- Site 2: CL1 distal cebi,
- Site 3: CL2 proksimal cebi.
Buradaki değerler “bağlanma enerjisi” diye kesin termodinamik sonuç olarak değil, docking skoru olarak yorumlanmalıdır.
Site 1’de 16 uzun karşılaştırma peptidi −35.1 ile −45.2 kJ mol−1, beş kısa Rule 5 adayı ise −24.3 ile −31.0 kJ mol−1 arasında skor vermiştir. Uzun peptitlerin daha fazla temas kurabilmesi bu farkın olası açıklamasıdır.
Site 2’de 16 uzun peptidin skorları +10.9 ile +493.1 kJ mol−1 arasında olumsuzken, beş kısa peptit −12.6 ile −23.4 kJ mol−1 arasında elverişli skorlar vermiştir. Bu bulgu dar CL1 ilişkili kanalın kısa peptitlere geometrik olarak daha uygun olabileceğini düşündürür.
Ancak burada önemli bir karıştırıcı vardır: Rule 5 grubundaki bütün peptitler 2–3 amino asit, karşılaştırma grubundaki bütün peptitler 5–13 amino asittir. Bu nedenle “fark Rule 5 motifinden kaynaklanıyor” ile “fark peptit uzunluğundan kaynaklanıyor” etkileri birbirinden ayrıştırılamaz.
15. Uzunluğa normalize docking skoru
Uzun peptitlerin daha fazla atom ve potansiyel temas sayesinde doğal enerji avantajına sahip olmasını azaltmak için en iyi docking skoru amino asit sayısına bölünmüştür.
Kısa adaylarda ortalama değer −12.6 ± 1.8 kJ mol−1 rezidü−1, uzun peptitlerde −5.9 ± 1.5 kJ mol−1 rezidü−1 olarak bulunmuş ve fark p < 0.001 olmuştur.
Bununla birlikte yazarlar bu sonucu Rule 5 motifine özgü tamamlayıcılığın kanıtı olarak görmemektedir. Metrik peptit uzunluğuyla kuvvetli biçimde bağlantılı olduğundan öncelikle kısa peptitlerin birim rezidü başına daha verimli paketlenmesini betimlemektedir.
16. Moleküler dinamik simülasyonu
VF, GIF, LP, IP ve VP–ACE komplekslerinin her biri 200 ns boyunca all-atom moleküler dinamik simülasyonuna alınmıştır.
| Parametre | Kaynakta kullanılan değer |
|---|---|
| Yazılım | GROMACS 2025.2 |
| Kuvvet alanı | AMBER ff99SB-ILDN |
| Su modeli | TIP3P |
| Sıcaklık | 300 K |
| Basınç | 1 bar |
| İyonik ortam | 0.15 M Na+/Cl− |
| Enerji minimizasyonu | Steepest descent, 50,000 adım |
| NVT dengeleme | 100 ps |
| NPT dengeleme | 100 ps |
| Üretim simülasyonu | 200 ns |
| Zaman adımı | 2 fs |
| Elektrostatik yöntem | PME, 1.2 nm cutoff |
| Yörünge kayıt aralığı | 100 ps |
ACE omurga RMSD değeri ilk yaklaşık 20 ns içinde dengelenmiş ve 20–200 ns analiz döneminde peptit kompleksine bağlı olarak yaklaşık 1.67 ± 0.09 ile 2.09 ± 0.17 Å aralığında kalmıştır.
ACE ile peptit ağır atomları arasındaki minimum mesafe beş peptitte 2.66–2.71 Å aralığında; beş sistemin ortalaması 2.70 ± 0.02 Å olarak raporlanmıştır. 200 ns içinde tam ayrışma olayı görülmemiştir.
Fakat bu ne anlama gelmez? Minimum atom mesafesinin korunması bağlanma serbest enerjisini, aynı docking pozunun 200 ns boyunca geometrik olarak değişmeden kaldığını, gerçek biyolojik residence time’ı veya deneydeki inhibisyon mekanizmasını kanıtlamaz. Simülasyon yalnız seçilen başlangıç pozlarından itibaren peptit–protein temasının korunduğunu göstermektedir.
17. Çalışmanın temel sınırlılıkları
- BIOPEP-UWM sanal hidrolizi erişilebilir kesim bölgelerinde teorik tam kesim varsayar; gerçek protein katlanması ve proteaz erişilebilirliği daha karmaşıktır.
- Rule 5, 24 hidrolizatlık geliştirme kümesi içinde rafine edilmiştir.
- 16 ticari hidrolizat ve 1429 peptitlik veri tabanı bağımsız destek sağlar; yine de başka protein sistemlerinde ek doğrulama gereklidir.
- Rule 5 frekansı peptitlerin gerçek hidrolizattaki nicel bolluğunu ölçmez.
- Düşük-kütle MALDI özellikleri beş aday sekansı kesin olarak tanımlamamıştır.
- LP ve IP yalnız kullanılan MALDI kütle bilgisiyle izomerik olarak ayırt edilememiştir.
- Docking analizinde peptit uzunluğu ile Rule 5 uyumu birbirine karışmıştır.
- MD simülasyonları dock edilmiş başlangıç pozlarından başlamış ve bağlanma serbest enerjisi hesaplamamıştır.
- Gastrointestinal stabilite deneysel olarak ölçülmemiştir.
- Bağırsak taşıma hızı veya gerçek biyoyararlanım ölçülmemiştir.
- Gıda matriksi etkileri değerlendirilmemiştir.
- Hayvanlarda antihipertansif etkinlik gösterilmemiştir.
- İnsan klinik etkinliği gösterilmemiştir.
18. Bilimsel sonuç nasıl doğru okunmalıdır?
Bu araştırmanın güçlü sonucu “iki amino asitlik terminal motif kan basıncını düşürür” değildir. Daha doğru sonuç şudur: kısa, özellikle iki ve üç amino asitlik ACE inhibitör peptit adayları söz konusu olduğunda, belirli P1′ ve P2′ amino asit kombinasyonlarını taşıyan sekansların önceliklendirilmesi, deneysel tarama havuzunda daha güçlü inhibitörlerin oranını artırabilir.
Bu çerçevede Rule 5’in değeri, pahalı ve uzun fraksiyonlama–tanımlama–sentez–enzim kinetiği zincirinden önce aday sayısını azaltabilmesidir. Kural nihai biyokimyasal doğrulamanın yerine geçmez; hangi adayların önce test edilmeye değer olduğuna ilişkin şeffaf ve kolay yorumlanabilir bir filtre sağlar.
Kaynak ve Yöntem Notu
Özgün başlık: A Length-Aware C-Terminal Rule for Prioritizing Short ACE-Inhibitory Peptides from Food Protein Hydrolysates
Yazarlar: Mei-Ling Li; Ying-Jang Lai; Pei-Yu Wu; Jen-Chieh Li; Shang-Ming Huang; Kuo-Chiang Hsu.
Eşit katkı: Mei-Ling Li ve Ying-Jang Lai.
Sorumlu yazarlar: Shang-Ming Huang ve Kuo-Chiang Hsu.
Kurumlar: Department of Nutrition, China Medical University, Taichung, Taiwan; Department of Food Science, National Quemoy University, Kinmen, Taiwan; Department of Food Nutrition and Health Biotechnology, Asia University, Taichung, Taiwan.
Dergi: Foods.
Yayınevi: MDPI.
Cilt / sayı / makale numarası: 15(15), 2764.
DOI: 10.3390/foods15152764
Gönderim: 16 Temmuz 2026.
Revizyon: 31 Temmuz 2026.
Kabul: 5 Ağustos 2026.
Yayın: 6 Ağustos 2026.
Kaynak türü: Özgün araştırma makalesi.
Hakemlik: Hakemli yayımlanmış makale; yayınevinin açık hakem değerlendirme kaydı bulunmaktadır.
Lisans: Creative Commons Attribution (CC BY).
Çalışma türü: Sanal protein hidrolizi, deneysel protein hidrolizi, in vitro ACE inhibisyon testi, MALDI-TOF/TOF taraması, sentetik peptit doğrulaması, enzim kinetiği, dış peptit veri tabanı benchmark analizi, moleküler docking ve moleküler dinamik simülasyonunun birleştirildiği deneysel-hesaplamalı çalışma.
İnsan/klinik çalışma: Hayır.
Hayvan antihipertansif etkinlik çalışması: Hayır.
Kurumsal etik kurul: Makalede “Not applicable” olarak bildirilmiştir.
Veri erişilebilirliği: Çalışmada oluşturulan veri kümesi Zenodo’da DOI 10.5281/zenodo.21708604 altında açık olarak bildirilmiştir; ek materyaller ayrıca yayınevi üzerinden sunulmuştur.
Finansman: Taiwan National Science and Technology Council, MOST 105-2320-B-039-036-MY3; China Medical University, CMU114-S-37.
Çıkar çatışması: Yazarlar çıkar çatışması bildirmemiştir.
Yazar katkıları: Mei-Ling Li yöntem, doğrulama ve ilk taslak; Ying-Jang Lai yöntem, doğrulama ve veri kürasyonu; Pei-Yu Wu kaynaklar, biçimsel analiz ve veri kürasyonu; Jen-Chieh Li araştırma, yöntem ve veri kürasyonu; Shang-Ming Huang denetim ve gözden geçirme/düzenleme; Kuo-Chiang Hsu kavramsallaştırma, denetim, gözden geçirme/düzenleme ve finansman görevlerini üstlenmiştir.
Yapay zekâ kullanım bildirimi: Yazarlar çalışma hazırlanırken ChatGPT (OpenAI, GPT-5.5) ve Claude (Anthropic, Claude Opus 4.6) araçlarını yalnız dil açıklığı ve okunabilirliği geliştirmek amacıyla kullandıklarını; özgün verilerin üretilmesi veya yorumlanması, şekillerin üretilmesi ya da bilimsel sonuçların çıkarılması için kullanmadıklarını bildirmiştir. Nihai içeriğin yazarlar tarafından gözden geçirildiği ve sorumluluğun yazarlara ait olduğu belirtilmiştir.
Kaynak içi raporlama notu: BIOPEP-UWM yöntem açıklamasında sanal hidroliz veritabanı için “13 Aralık 2023’te erişildi” ifadesi bulunurken hemen devamında 773 gıda proteini sekansı için “Ekim–Aralık 2024’te erişildi” ifadesi yer almaktadır. Bu iki ifade kaynakta birlikte bulunduğu için Verianla tarafından tek bir tarihe dönüştürülmemiştir.
Nomenklatür notu: Makalenin operasyonel tanımında P1′ peptidin C-terminal amino asidi, P2′ sondan ikinci amino asididir. Yazarlar bu kullanımın özgün Schechter–Berger proteaz-kesim P1′ tanımından farklı olduğunu açıkça belirtmektedir. Bu makalede Rule 5 açıklamaları araştırmacıların ACE-QSAR temelli operasyonel tanımına göre yapılmıştır.
Temel yöntemsel yorum sınırı: Rule 5, gerçek hidrolizattaki peptit konsantrasyonunu ölçmez; yapısal motif oluşturma potansiyelini tahmin eder. Rule 5’in bağımsız dış benchmark ile desteklenen güçlü uygulanabilirlik alanı 2–3 amino asitlik peptitlerdir. Daha uzun peptitlerde terminal motif bilgisi tek başına güvenilir değildir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir