


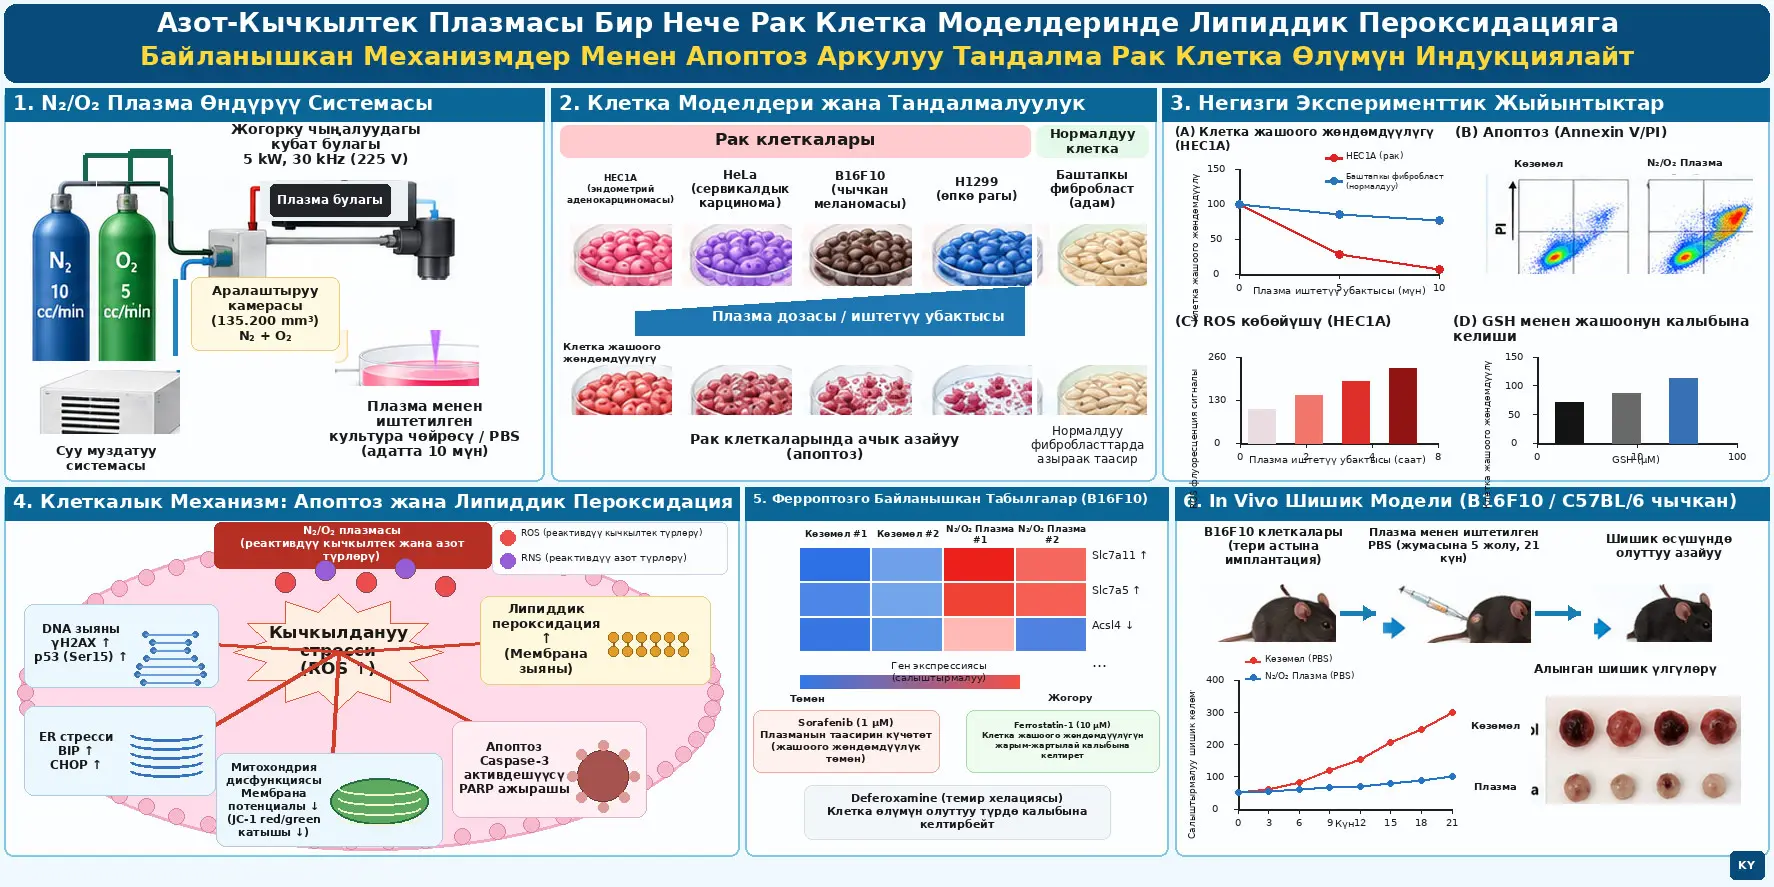
Азот-кычкылтек плазмасы (N₂/O₂ plasma), көзөмөлдөнгөн азот жана кычкылтек газ агымынан электрдик плазма түзүп, реактивдүү кычкылтек жана азот түрлөрүн пайда кылууга багытталган физикалык плазма ыкмасы. Бул изилдөө N₂/O₂ плазмасы менен иштетилген чөйрөлөрдүн эндометрий аденокарциномасы HEC1A, сервикалдык карцинома HeLa, чычкан меланомасы B16F10 жана адамдын майда клеткалуу эмес өпкө рагы H1299 моделдериндеги таасирин; нормалдуу көзөмөл катары адамдын баштапкы фибробласттарын жана ошондой эле B16F10/C57BL/6 чычкан шишик моделин колдонуп изилдеген. Булактын негизги жыйынтыгы — N₂/O₂ плазмасы изилденген рак моделдеринде кычкылдануу стрессин күчөтүп, негизинен апоптозду активдештирет жана муну липиддик пероксидацияга байланышкан кычкылдануучу мембрана зыяны коштойт.
Ин vitro тажрыйбаларда клеткалар түздөн-түз плазма агымынын астында кармалган эмес. Булакта культура чөйрөсү плазма менен иштетилип, андан кийин клеткаларга колдонулганы айтылат. Демейки ыкмада культура чөйрөсү N₂/O₂ плазмасы менен 10 мүнөт иштетилип, клеткалар бул чөйрөдө 24 саат инкубацияланган; айрым сүрөттөрдө 0, 5 же 10 мүнөттүк плазма иштетүүлөрү жана ар башка инкубация убакыттары да колдонулган.
HEC1A клеткаларында плазманын деңгээли жогорулаган сайын клетка жашоого жөндөмдүүлүгү азайган, ал эми адамдын баштапкы фибробласттарында ушундай ачык жоготуу байкалган эмес. H1299 клеткаларында реактивдүү азот түрлөрүнүн таасирин чектөө үчүн колдонулган 1 µM carboxy-PTIO N₂/O₂ плазмасынын цитотоксикалык таасирин азайткан. Бирок изилдөө белгилүү бир гана нормалдуу клетка түрү менен салыштырган; натыйжа бардык нормалдуу ткандар плазмага туруктуу же ыкма адамдар үчүн коопсуз дегенди билдирбейт.
Апоптоз Annexin V/propidium iodide агымдык цитометриясы, про-апоптотикалык Bax жана Bak1 гендеринин жогорулашы, анти-апоптотикалык Bcl-2, Bcl-xl жана Figure 2деги Bcl-w деңгээлинин төмөндөшү, PARP жана caspase-3 ажырашы, γH2AX көбөйүшү, p53 Ser15 фосфорлануусу, ER стресс көрсөткүчтөрү BIP жана CHOP жогорулашы жана JC-1 менен өлчөнгөн митохондрия мембрана потенциалынын жоголушу менен колдоого алынган.
Клетка ичиндеги реактивдүү кычкылтек түрлөрү (ROS) N₂/O₂ плазмасынан кийин убакыт өткөн сайын көбөйгөн. Glutathione (GSH) менен ROS жүгү азайтылганда клетка жашоого жөндөмдүүлүгүнүн дозага жараша калыбына келиши кычкылдануу стресси клетка өлүмүндө жөн гана коштоочу белги эмес, маанилүү upstream түрткү берүүчү фактор экенин колдойт. Бирок изилдөө пайда болгон бардык конкреттүү кычкылтек жана азот түрлөрүн өз-өзүнчө аныктаган эмес жана айрыкча азоттон келип чыккан реактивдүү түрлөрдүн салыштырмалуу салымын толук чечкен эмес.
RNA-seq жана функционалдык тажрыйбалар ферроптозго байланышкан гендерде өзгөрүү жана липиддик пероксидациянын көбөйүшүн көрсөткөн. Ferrostatin-1 клетка жашоого жөндөмдүүлүгүн жарым-жартылай калыбына келтирген, sorafenib болсо плазма цитотоксикалуулугун күчөткөн. Ал эми темир хелатору deferoxamine клетка өлүмүн же липиддик пероксидацияны олуттуу азайткан эмес. Slc7a11 жана Slc7a5 жогорулап, Acsl4 төмөндөгөн. Ошондуктан булак клетка өлүмүн классикалык темирге көз каранды ферроптоз катары эмес, үстөм апоптозду коштогон кычкылдануу стресси жана липиддик-пероксидацияга байланышкан цитотоксикалуулук катары чечмелейт.
Чычкан тажрыйбасында ургаачы C57BL/6 чычкандарында B16F10 меланома клеткалары менен түзүлгөн шишиктердин өсүшү плазма менен иштетилген PBS берилген топто көзөмөлгө салыштырмалуу азайган. Бирок системалык колдонуу, орган деңгээлиндеги гистопатология, нормалдуу ткандарды салыштыруу жана кеңири токсикалуулук анализи жүргүзүлгөн эмес. Ошондуктан бул изилдөө адамдарда рак дарылоосунун натыйжалуулугун же коопсуздугун далилдебейт.
Плазма деген эмне?
Плазма — газ молекулалары энергия алып, электрондор, иондор жана ар түрдүү реактивдүү түрлөр бар жогорку энергиялуу абалга өткөн физикалык чөйрө. Биомедициналык плазма изилдөөлөрүндө максат жогорку температураны гана түзүү эмес; клеткалар менен өз ара аракеттене ала турган реактивдүү кычкылтек түрлөрүн (reactive oxygen species, ROS), реактивдүү азот түрлөрүн (reactive nitrogen species, RNS), электр талааларын жана башка физика-химиялык компоненттерди көзөмөлдөнгөн түрдө түзүү.
Бул макаланын эксперименттик түзүлүшүндө азот жана кычкылтек өзүнчө mass-flow controller системалары аркылуу берилип, аралаштыруу камерасында бириктирилип, жогорку чыңалуудагы плазма булагында иштетилет. Булак чыгыш газынын температурасын же так атмосфералык басым маанисин билдирбегендиктен Verianla бул түзмөк үчүн булакта жок температура же басым маанисин чыгарбайт.
Эмне үчүн азот менен кычкылтек бирге колдонулган?
Авторлордун изилдөө негиздемеси — гелий же аргон сыяктуу инерттүү газдарга негизделген системаларда реактивдүү түрлөрдүн химиясы айланадагы абанын аралашуусуна жана тар кошумча газ шарттарына сезгич болушу мүмкүн; мындан тышкары инерттүү газдар нарк жана камсыздоо жагынан кемчилик жаратышы мүмкүн. N₂/O₂ аралашмасы оңой жеткиликтүү газдардан реактивдүү кычкылтек жана азот түрлөрүн бирге түзүү жана химиялык курамды көзөмөлдөө мүмкүнчүлүгү жагынан бааланган.
Ошентсе да изилдөө N₂/O₂ аралашмасы бардык альтернативдүү газ аралашмаларынан натыйжалуураак, арзаныраак же клиникалык жактан артык экенин түз салыштырмалуу түрдө көрсөткөн эмес.
Плазма түзүлүшү кантип иштейт?
Реактивдүү кычкылтек жана азот түрлөрү эмнени билдирет?
ROS, кычкылтек камтыган жогорку реактивдүү молекулалар менен радикалдардын жалпы аталышы. RNS болсо азот камтыган реактивдүү түрлөрдү камтыйт. Бул молекулалар төмөн жана жөнгө салынган деңгээлдерде клеткалык сигнал берүүгө салым кошо алат, бирок ашыкча пайда болгондо белокторду, липиддерди жана нуклеин кислоталарын кычкылдануу жолу менен өзгөртө алат.
Булак реактивдүү азот түрлөрүн Griess Reagent негизиндеги Nitrite Assay Kit менен баалап, абсорбансты 540 nmде өлчөгөн. Figure 1 муну “nitric oxide concentration” катары берет. Ошондуктан Verianla бул өлчөөнү бардык конкреттүү RNS түрлөрүнүн сандык химиялык профили катары түз чечмелебейт.
Азот-Кычкылтек Плазмасы Рак Клеткаларын Кантип Өлтүрөт?
Изилдөө колдогон негизги механизм — N₂/O₂ плазмасы түзгөн реактивдүү түрлөр клеткалык редокс тең салмагын бузуп; бул ROS көбөйүшүн, DNA зыянын, ER стрессин, митохондрия мембрана потенциалынын жоголушун жана липиддик пероксидацияга байланышкан мембрана зыянын козгоп, бул стресс жолдору негизинен каспазага көз каранды апоптотикалык клетка өлүмүндө биригет.
c-PTIO тажрыйбасы эмнени көрсөтөт?
Carboxy-PTIO бул изилдөөдө NO менен байланышкан реактивдүү түрлөрдүн таасирин чектөө үчүн колдонулган scavenger. H1299 клеткаларында 1 µM c-PTIO N₂/O₂ плазмасы менен байкалган клетка жашоого жөндөмдүүлүгүнүн жоголушун азайткан. Бул натыйжа газдан келип чыккан реактивдүү азот түрлөрүнүн биологиялык таасирде роль ойной турганын колдойт.
Бирок c-PTIO кийлигишүүсү “бардык цитотоксикалуулук NO тарабынан гана пайда болот” деген жыйынтыкты көрсөтпөйт. Изилдөөнүн кийинки тажрыйбалары клетка ичиндеги ROS да борбордук роль ойной турганын көрсөтөт.
Эмне үчүн ROS upstream түрткү берүүчү фактор деп эсептелет?
HEC1A клеткаларында ROS флуоресценция сигналы N₂/O₂ плазмасынан кийин убакыт өткөн сайын көбөйгөн. Бул корреляция гана механизм үчүн жетишсиз болгондуктан изилдөөчүлөр glutathione (GSH) менен кийлигишүү жүргүзүшкөн. Figure 3Bде 10 жана 100 µM GSH колдонулганда клетка жашоого жөндөмдүүлүгү дозага жараша көбөйгөн.
Эгер биологиялык аралык баскычты бөгөттөө же тазалоо downstream натыйжаны азайтса, бул аралык баскычтын механизмде функционалдык ролун колдойт. Ошондуктан GSH натыйжасы ROS клетка өлүмүн жөн гана коштогон белги эмес, цитотоксикалуулукка салым кошкон upstream фактор экенин көрсөтөт.
γH2AX эмнени көрсөтөт?
H2AX DNA зыянына жооп берүүдө фосфорлана ала турган гистон белогу. Анын фосфорланган формасы γH2AX, айрыкча DNA үзүлүүлөрү жана DNA damage response активдешүүсү үчүн кеңири колдонулган көрсөткүч. N₂/O₂ плазмасынан кийин γH2AX көбөйүшү клеткаларда DNA зыянына жооп активдешкенин колдогон.
p53 Ser15 фосфорлануусу эмне үчүн өлчөнгөн?
p53 DNA зыяны жана клеткалык стресс шартында клетка циклинин токтошу же апоптотикалык жооптун жөнгө салынышына катышкан шишик басуучу белок. Ser15 аймагындагы фосфорлануу DNA damage response менен байланышкан активдешүү көрсөткүчтөрүнүн бири. Изилдөөдө p53 Ser15 фосфорлануусу көбөйүп, γH2AX табылгасы менен бирге DNA зыяны/стресс жообун колдогон.
BIP жана CHOP эмнени көрсөтөт?
BIP, эндоплазмалык ретикулумдагы белок бүктөлүү жүгү жана unfolded protein response менен байланышкан шаперондордун бири. CHOP болсо узак же күчтүү ER стресс учурунда апоптотикалык программага салым кошо ала турган стресс-жооп транскрипция фактору. Эки белоктун тең көбөйүшү N₂/O₂ плазмасы ER протеостазын бузганын колдогон табылгалардын бири.
PARP жана caspase-3 ажырашы эмне үчүн маанилүү?
Caspase-3 апоптотикалык аткаруучу каспазалардын бири. Активдешкен caspase-3 көптөгөн клеткалык буталарды кесет; PARP да ошол буталардын бири. Cleaved caspase-3 жана cleaved PARP көрүнүшү клетка жөн гана стресс астында эмес, апоптотикалык аткаруу механизми активдешкенин колдогон биохимиялык далил.
Митохондрия мембрана потенциалы кантип өлчөндү?
HeLa клеткаларында JC-1 флуоресценттик боёгу жана holotomography негизиндеги тирүү клетка сүрөттөө колдонулган. Дени сак поляризацияланган митохондрияларда JC-1 көбүрөөк кызыл aggregate сигналын түзөт, ал эми мембрана потенциалы төмөндөгөндө жашыл monomer сигналы көбөйөт.
N₂/O₂ плазмасынан кийин кызыл/жашыл флуоресценция катышы азайып, JC-1 monomerлеринин салыштырмалуу үлүшү көбөйгөн. Бул натыйжа митохондриялык деполяризацияны жана intrinsic апоптотикалык жолдун ишке киришин колдойт.
Methods бөлүмүндө JC-1 концентрациясы 1 mM деп басылган. Бул маани Verianla тарабынан башка бирдикке үнсүз өзгөртүлгөн эмес; булакта жазылган түрүндө сакталган.
Липиддик Пероксидация Бул Изилдөөдө Ферроптоздун Далилиби?
Жок. Липиддик пероксидация көбөйүп, ferrostatin-1 клетка өлүмүн жарым-жартылай азайткан; бирок темир хелациясы натыйжаны калыбына келтирген эмес, ошондой эле Slc7a11/Slc7a5 көбөйүшү жана Acsl4 азайышы каноникалык ферроптозго караганда коргоочу редокс адаптациясына көбүрөөк ишарат кылган. Булактын жыйынтыгы классикалык темирге көз каранды ферроптоз эмес, апоптозду коштогон липиддик-пероксидацияга байланышкан кычкылдануучу цитотоксикалуулук.
Ферроптоз деген эмне?
Ферроптоз — темирге көз каранды липиддик пероксидация аныктоочу болгон жөнгө салынган клетка өлүмүнүн түрү. Ал апоптоздон айырмаланган молекулалык жана морфологиялык өзгөчөлүктөргө ээ. Ошондуктан клеткада липиддик пероксидациянын көбөйүшү өзүнчө эле ферроптоз диагнозу үчүн жетиштүү эмес.
RNA-seq эмне үчүн ферроптоз мүмкүнчүлүгүн күн тартибине чыгарды?
B16F10 клеткаларында жүргүзүлгөн transcriptomic profiling апоптотикалык сигнал жолдору жана кычкылдануу стресс жооптору менен катар ферроптозго байланышкан ген топторунда да өзгөрүү көрсөткөн. Volcano plot-та булак 335 ген олуттуу түрдө upregulated, 206 ген downregulated болгонун көрсөтөт.
Ферроптозго байланышкан тандалган гендерден Slc7a11 жана Slc7a5 көбөйүп, Acsl4 азайган. Авторлор өзгөчө бул көрүнүш canonical ferroptosis активдүү жүрүп жатканынан көрө кычкылдануу жүгүнө каршы redox-regulatory жана anti-ferroptotic адаптацияны көрсөтөрүн белгилешет.
Slc7a11 эмне үчүн маанилүү?
Slc7a11 cystine/glutamate antiporter системасынын маанилүү компоненттеринин бири жана клетканын glutathione синтези үчүн керектүү cystineди ичке алуусуна салым кошот. Анын көбөйүшү клетканын кычкылдануу жүгүн буферлөө үчүн antioxidant мүмкүнчүлүгүн сактоого аракет кылган стресс-адаптация жообуна шайкеш болушу мүмкүн.
Acsl4 эмне үчүн маанилүү?
ACSL4 көп каныкпаган май кислоталарынын мембрана липиддерине кошулушунда роль ойногон жана көптөгөн ферроптоз моделдеринде ферроптоз сезгичтиги менен байланышкан фермент. Изилдөөдө Acsl4 mRNAсынын азайышы авторлордун canonical ferroptosis ордуна коргоочу/anti-ferroptotic адаптация чечмелөөсүн колдогон факторлордун бири.
Sorafenib жана ferrostatin-1 тажрыйбалары эмнени көрсөтөт?
Булак sorafenibти бул тажрыйбада ферроптозду күчөтүүчү модулятор катары колдонгон. 1 µM sorafenib N₂/O₂ плазмасы менен бирге колдонулганда B16F10 клеткаларындагы цитотоксикалуулук көбөйгөн.
10 µM ferrostatin-1 болсо N₂/O₂ плазмасы менен азайган клетка жашоого жөндөмдүүлүгүн жарым-жартылай калыбына келтирген. Ferrostatin-1 липиддик пероксидацияны бөгөттөгөн ферроптоз ингибитору болгондуктан бул натыйжа липиддик пероксидация клетка өлүмүнүн жүгүнө салым кошорун колдойт.
Бирок “жарым-жартылай калыбына келүү” плазманын бардык таасири ферроптоз аркылуу ишке ашпаганын да көрсөтөт.
Deferoxamine тажрыйбасы эмне үчүн критикалык?
Deferoxamine (DFO) темирди байланыштырган хелатор. Эгер байкалган клетка өлүмү классикалык темирге көз каранды ферроптоз менен түшүндүрүлсө, темир хелациясы клетка өлүмүн жана липиддик пероксидацияны азайтышы күтүлмөк. Булак DFO муну олуттуу түрдө жасабаганын билдирет.
Ошондуктан авторлор липиддик пероксидация бар экенин кабыл алышса да, натыйжаны классикалык iron-dependent ferroptosis катары классификациялашпайт.
Апоптоз менен липиддик пероксидация бир убакта болушу мүмкүнбү?
Ооба. Клетка өлүм механизмдери дайыма бири-биринен толугу менен бөлүнгөн эмес. Күчтүү кычкылдануу стресси липид мембраналарын, DNAны, белок бүктөлүү системаларын жана митохондрияны бир убакта таасирленте алат. Бул изилдөөнүн далилдери үстөм аткаруу механизми апоптоз экенин; липиддик пероксидация болсо кошумча кычкылдануучу зыян катмарын түзөрүн колдойт.
Бул Изилдөө Адамдарда Рак Дарылоосунун Далилиби?
Жок. Изилдөөдө адам рак клетка линиялары жана чычкан меланома allograft модели колдонулган, бирок адам бейтаптарда N₂/O₂ плазма дарылоосу колдонулган эмес; клиникалык шишик жообу, доза, ткандын өтүмдүүлүгү, системалык коопсуздук, орган токсикалуулугу же узак мөөнөттүү натыйжалуулук бааланган эмес.
Чычкан тажрыйбасы кантип жүргүзүлдү?
Жетилген ургаачы C57BL/6 чычкандары ар бир топто n=9 болуп колдонулган. 1 × 10⁶ B16F10 чычкан меланома клеткасы муздак PBS менен Corning Matrigelдин 1:1 аралашмасында даярдалып, чычкандардын flank аймагына тери астына сайылган.
Шишиктер болжол менен 50 mm³ге жеткенде чычкандар дарылоо топторуна рандомизацияланган. Көзөмөл чычкандарына 100 µL PBS, тажрыйба тобуна 100 µL плазма менен иштетилген PBS берилген. Колдонуу жумасына беш жолу, жалпы 15 дарылоо болуп, 21 күн уланган.
Булактын Methods бөлүмү бул колдонмолорду “subcutaneous injections” деп жазса, Abstract жана Discussion “intratumoral administration” деген терминди колдонот. Булак бул терминологиялык айырманы түшүндүрбөгөндүктөн Verianla колдонмонун так анатомиялык ордун алардын бирин тандап кайра аныктабайт.
Дарылоонун аягында шишиктер алынган жана плазма менен иштетилген PBS алган топто шишик өлчөмү көзөмөлгө салыштырмалуу олуттуу төмөн болгон.
Бирок изилдөө нормалдуу органдардын гистопатологиясын, системалык токсикалуулукту же нормалдуу-ткань/шишик тандалмалуулугун in vivo салыштырган эмес. Мындан тышкары, колдонмо локалдуу болгондуктан системалык таасирленүү чектелген.
Allograft менен xenograft ортосунда кандай айырма бар?
Syngeneic allograft, бир түрдөгү жана генетикалык жактан шайкеш жаныбар менен шишик клеткасы колдонулган шишик модели. Бул изилдөөдө B16F10 чычкан меланома клеткасы, C57BL/6 да чычкан болгондуктан Methods бөлүмү системаны syngeneic murine melanoma/allograft деп аныктайт.
Xenograft болсо ар башка түрлөрдүн ортосунда көчүрүлгөн клетка же ткандарды билдирет; мисалы, адамдын шишик клеткасын чычканга берүү. Figure 1F түшүндүрмөсүндө B16F10/C57BL/6 тажрыйбасын “xenograft” деп аташы Methods аныктамасына туура келбейт. Article in Press версиясындагы бул терминологиялык шайкешсиздик Verianla тарабынан үнсүз оңдолгон эмес.
Изилдөөнүн Ыкмасы жана Жыйынтыктары
Плазма өндүрүү системасынын техникалык параметрлери
| Параметр | Булак мааниси | Илимий ролу |
|---|---|---|
| Электрод жайгашуусу | Эки параллелдүү металл электрод | Плазма түзүүчү электр талаасын камсыз кылуу |
| Диэлектрик | Бир электрод керамикалык диэлектрик менен капталган | Плазма түзүлүшүн колдогон электрдик түзүлүш |
| Кубат булагы | 5 kW, 30 kHz жогорку чыңалуудагы кубат булагы | Плазма өндүрүү |
| Муздатуу | Айланма суу менен муздатуу системасы | Иштөө температурасын сактоо |
| Аралаштыруу камерасы | 135.200 mm³ | N₂ жана O₂ агымдарын аралаштыруу |
| N₂ агымы | 10 cc/min | Азот компоненти |
| O₂ агымы | 5 cc/min | Кычкылтек компоненти |
| Чыңалуу мааниси | 225 V | Булак бул маанини flow-controller сүйлөмүндө берет; анын 5 kW/30 kHz кубат системасы менен так байланышын өзүнчө түшүндүрбөйт |
| Культура чөйрөсүн плазма менен иштетүү | Демейки 10 мүнөт | Плазма менен активдештирилген чөйрөнү даярдоо |
| Клетка инкубациясы | Демейки 24 саат | Биологиялык таасирди баалоо |
Изилдөөдө колдонулган клетка моделдери
| Клетка | Келип чыгышы | Изилдөөдөгү негизги колдонулушу |
|---|---|---|
| HEC1A | Адамдын эндометрий аденокарциномасы | Жашоого жөндөмдүүлүк, Annexin V/PI, ROS, DNA зыяны жана ER-стресс механизминин негизги модели |
| HeLa | Адамдын сервикалдык карциномасы | JC-1 митохондрия анализи жана тирүү клеткадагы липиддик-пероксидацияны сүрөттөө |
| B16F10 | Чычкан меланомасы | RNA-seq, ферроптоз/липиддик-пероксидация модуляторлору жана in vivo шишик модели |
| H1299 | Адамдын майда клеткалуу эмес өпкө карциномасы | c-PTIO менен реактивдүү азот түрлөрүнүн ролун баалоо |
| Human primary fibroblasts | Адамдын баштапкы фибробласты | Нормалдуу клетка менен салыштыруу |
Клетка культурасынын шарттары
Бардык клеткалар DMEM чөйрөсүндө %10 fetal bovine serum жана %1 penicillin-streptomycin менен, 37 °Cде жана нымдалган %5 CO₂ инкубатордо өстүрүлгөн.
MTT жашоого жөндөмдүүлүк тести
Клетка жашоого жөндөмдүүлүгү Cell Proliferation Kit I MTT ыкмасы менен бааланган. Клеткалар 96-well plateтерге 1 × 10⁴ клетка/well өлчөмүндө себилип, абсорбанс SpectraMax 190 microplate reader менен 570 nmде өлчөнгөн.
MTT метаболикалык активдүүлүккө негизделген салыштырмалуу клетка жашоого жөндөмдүүлүк көрсөткүчү. Ошондуктан MTT сигналынын азайышы өзүнчө кайсы клетка өлүм формасы болгонун аныктабайт. Ушул себептен булак Annexin V/PI, caspase/PARP жана башка механисттик тажрыйбаларды да колдонгон.
Annexin V жана propidium iodide эмнени айырмалайт?
Annexin V апоптоз учурунда клетка мембранасынын сырткы бетине жылган phosphatidylserineге байланышат. Propidium iodide (PI) болсо мембрана бүтүндүгүн жоготкон клеткаларга кирип, DNAны боёйт.
| Annexin V | PI | Жалпы чечмелөө |
|---|---|---|
| Терс | Терс | Тирүү клетка |
| Оң | Терс | Эрте апоптозго шайкеш |
| Оң | Оң | Кеч апоптоз / өнүккөн мембрана жоготуусу |
| Терс | Оң | Баштапкы некротикалык же оор мембрана зыяндуу клеткаларга шайкеш болушу мүмкүн |
Булак ар бир үлгү үчүн 10.000ден ашык клетканы анализдеп, BD FACSAria III Cell Sorter жана BD FACSDiva v8.0.3 колдонгон.
Article in Press Figure 2Aнын негизги тексти HEC1Aда ачык апоптотикалык көбөйүү, ал эми баштапкы фибробласттарда ушундай тренд жок экенин айтат жана FACS панели бул баяндоо менен шайкеш. Бирок оң жактагы жыйынтык bar graphтын көрүнгөн legend/толтуруу дал келүүсү текст менен толук шайкеш көрүнбөйт. Ошондуктан Verianla Figure 2Aдан жаңы так пайыздык маанилерди чыгарбайт.
Апоптозго байланышкан гендерде эмне өзгөрдү?
B16F10 клеткаларында N₂/O₂ плазмасынан кийин про-апоптотикалык Bax жана Bak1 mRNAлары көбөйгөн. Анти-апоптотикалык Bcl-2 жана Bcl-xl азайган. Figure 2B ошондой эле Bcl-w деңгээлинде да ачык азайууну көрсөтөт.
Булак бул бөлүмдө өзгөчө mRNA деңгээлдери бааланганын жана бул ген өзгөрүүлөрү белок деңгээлинде өзүнчө ырасталышы керек экенин белгилейт.
qRT-PCR жана ΔΔCt ыкмасы
RNA RNeasy Plus Mini Kit менен алынган, Nano-400A менен өлчөнгөн, AccuPower RT PreMix менен cDNAга айландырылган жана AriaMx Real-Time PCR Systemде SYBR Green негизиндеги qPCR жүргүзүлгөн. GAPDH housekeeping gene катары колдонулган.
Булак ген экспрессиясын ΔΔCt ыкмасы менен анализдегенин билдирет. Булак теңдемелерди өзүнчө жазбагандыктан төмөнкү математика ыкманын үйрөтүүчү стандарттык ачылышы; изилдөөнүн жаңы теңдемеси эмес:
\(\Delta Ct = Ct_{\mathrm{hedef}} - Ct_{\mathrm{referans}}\)
\(\Delta\Delta Ct = \Delta Ct_{\mathrm{işlem}} - \Delta Ct_{\mathrm{kontrol}}\)
\(\mathrm{Göreli\ ekspresyon} = 2^{-\Delta\Delta Ct}\)
Формула эмнени эсептейт? Максаттуу ген mRNAсынын housekeeping geneге нормалдаштырылган деңгээлинин көзөмөл шартына салыштырмалуу өзгөрүшүн.
Ct деген эмне? qPCR флуоресценция сигналы белгиленген чектен өткөн cycle саны.
ΔCt эмне кылат? Максаттуу генди ошол эле үлгүдөгү эталон geneге нормалдаштырат.
ΔΔCt эмне кылат? Нормалдаштырылган иштетүү тобун нормалдаштырылган көзөмөл тобу менен салыштырат.
2−ΔΔCt эмне берет? Өлчөмсүз салыштырмалуу эселик өзгөрүүнү.
Чечмелөө чеги: Булак чийки Ct маанилерин таблица түрүндө бербегендиктен Verianla жаңы fold-change маанилерин эсептебейт.
Булакта берилген qPCR primerлер
| Ген | Forward primer | Reverse primer |
|---|---|---|
| Bax | 5′-TTTTTGCTACAGGGTTTCAT-3′ | 5′-CTGTCCAGTTCATCTCCAAT-3′ |
| Bak1 | 5′-ACGACAGAGTTCCAGAAT-3′ | 5′-AGCTGATGCCACTCTTAAT-3′ |
| Bcl-2 | 5′-CCTGGGATGACTGAGTACC-3′ | 5′-CCAGGAGAAATCAAACAGAG-3′ |
| Bcl-xl | 5′-AGAGCTTTGAGCAGGTAGTG-3′ | 5′-CAATACCTGCATCTCCTTGT-3′ |
| Bcl-w | 5′-TGCTGAGAGTGTCAACAAAG-3′ | 5′-CCCGTATAGAGCTGTGAACT-3′ |
| Acsl4 | 5′-CTAGGACCGAAGGACACATA-3′ | 5′-CTAGTCCAGGGATACGTTCA-3′ |
| Slc7a5 | 5′-ACCCTCTCTACCAACCAGAT-3′ | 5′-ATCAGAATTGCTGTGAGCTT-3′ |
| Slc7a11 | 5′-TGGTCCTAAATAGCACGAGT-3′ | 5′-TGTTTGCCCTTTAATTAGCTG-3′ |
| Gapdh | 5′-CCAGTATGACTCCACTCACG-3′ | 5′-GGTGGTGAAGACACCAGTAG-3′ |
Western blot анализи
Клеткалар RIPA buffer менен бузулуп, 15.000 × gде 5 мүнөт центрифугаланган жана белоктор 5-20% gradient же %15 SDS-PAGE гелдеринде ажыратылган. Nitrocellulose мембраналарга өткөрүлгөндөн кийин γH2AX, BIP, CHOP, PARP, caspase-3, p53 жана phospho-p53(Ser15) антителолору колдонулган.
Булак антитело суюлтуусун текстте “1:2-3000” түрүндө басып чыгарган. Бул билдирүү эрте-версия текстинде типографиялык жактан бүдөмүк; Verianla аны үнсүз түрдө 1:2000 же 1:3000 сыяктуу жаңы мааниге өзгөртпөйт.
RNA-seq кантип жүргүзүлдү?
B16F10 клеткаларынан total RNA RNeasy Mini Kit менен алынган; сапаты Agilent 2100 Bioanalyzer жана RNA 6000 Nano LabChip менен текшерилген. Бардык үлгүлөрдө RNA integrity number (RIN) >9 деп билдирилген.
Poly(A)+ mRNA TruSeq Stranded mRNA LT Sample Prep Kit менен бөлүнүп жана фрагментацияланып; секвенирлөө Illumina NovaSeq 6000 платформасында Macrogen тарабынан жүргүзүлгөн.
Methods ар бир шарт үчүн үч биологиялык кайталоо колдонулганын билдирет. Бирок негизги Article in Press Figure 4D heatmapте көрүнгөн саптар Control #1, Control #2, N₂/O₂ Plasma #1 жана N₂/O₂ Plasma #2 түрүндө. Булак үчүнчү кайталоо heatmapте эмне үчүн көрүнбөгөнүн түшүндүрбөйт.
Дифференциалдык ген критерийи кантип аныкталды?
Ар бир ген үчүн Student's t-test колдонулуп, sample label permutation аркылуу T-statistic үчүн empirical null distributions түзүлгөн.
Ген differentially expressed gene (DEG) деп кабыл алынышы үчүн эки шарт бирге талап кылынган:
Adjusted p-value ≤ 0.05
жана
|log₂(fold change)| > 0.428
Булак 0.428 чеги болжол менен 1.35-fold өзгөрүүгө туура келерин жана null log₂ fold-change бөлүштүрүүсүнүн 0.5. жана 99.5. процентилдеринин орточосуна негизделерин билдирет.
log₂(fold-change) эмнени түшүндүрөт?
Fold-change гендин иштетүү тобунда көзөмөлгө салыштырмалуу канчалык өзгөргөнүн билдирет. Log₂ өзгөртүү өсүү менен азаюуну симметриялуу шкалага өткөрөт. Оң log₂ fold-change көбөйүүнү, терс маани азаюуну көрсөтөт.
−log₁₀(P) эмне үчүн volcano plotта колдонулат?
Figure 4Cнин y огу \(-\log_{10}(P)\) өзгөртүүсүн колдонот. P кичирейген сайын −log₁₀(P) чоңоёт; ошондуктан статистикалык жактан кичине P маанилери графикте жогорураак көрүнөт. Бул өзгөртүү жаңы биологиялык чоңдук жаратпайт, P маанилерин графикте окууга ыңгайлуу кылат.
RNA-seqтин негизги көрүнгөн натыйжасы
| DEG классы | Ген саны |
|---|---|
| Upregulated | 335 |
| Downregulated | 206 |
Pathway enrichment анализдери apoptosis, oxidative stress response жана reactive oxygen species response сыяктуу процесстерди алдыга чыгарган. Ferroptosis да enrichment натыйжаларында көрүнгөн; бирок бир гана ген-set байышы клетка ферроптоз менен өлгөнүн далилдебейт. Ошондуктан булак функционалдык sorafenib, ferrostatin-1, липиддик-пероксидация жана DFO тажрыйбаларын да өзүнчө жүргүзгөн.
Holotomography негизиндеги тирүү клетка сүрөттөө
Клеткалар TomoDish ичинде болжол менен %60 confluencyге жеткенде культура чөйрөсү plasma-treated medium менен алмаштырылып, бир саат инкубацияланган. Андан кийин чөйрө Liperfluo же JC-1 камтыган HBSS менен алмаштырылган.
Lipid peroxidation үчүн 1 µmol/L Liperfluo; mitochondrial membrane potential үчүн булакта 1 mM деп жазылган JC-1 колдонулган. 30 мүнөт боёгондон кийин клеткалар Tomocube HT-2H микроскобунда refractive-index негизиндеги holotomography менен сүрөттөлгөн. Флуоресценция интенсивдүүлүктөрү ImageJ2 менен сандык бааланган.
Статистикалык анализ
Маалыматтар кеминде үч өз алдынча тажрыйбадан алынган жана орточо ± стандарттык ката (mean ± SEM) түрүндө берилген. Эки топту салыштырууда two-tailed Student's t-test, көп топту салыштырууда one-way ANOVA жана Tukey post-hoc test колдонулган.
Статистикалык маанилүүлүк чеги P<0.05. Белгилөө системасы *P<0.05, **P<0.01, ***P<0.001 жана N.S.=not significant түрүндө.
Figure 1дин негизги табылгасы
Плазма чыгышы көбөйгөн сайын Griess-негизиндеги NO/RNS сигналы өскөн. HEC1A клетка жашоого жөндөмдүүлүгү плазма дозасы менен төмөндөгөн, ал эми нормалдуу баштапкы фибробласттар булак чечмелөөсүндө салыштырмалуу сакталган. c-PTIO H1299 клеткаларында жашоого жөндөмдүүлүктү калыбына келтириши реактивдүү азот түрлөрүнүн салымын колдогон.
B16F10/C57BL/6 чычкан тажрыйбасында плазма менен иштетилген PBS алган топто шишик өлчөмү көзөмөлгө караганда олуттуу төмөндөгөн. Чийки маалымат таблицасы берилбегендиктен Verianla графиктен жаңы так шишик көлөм маанилерин чыгарбайт.
Figure 2нин негизги табылгасы
Annexin V/PI бөлүштүрүүсү N₂/O₂ плазмасынан кийин HEC1A клеткаларында апоптотикалык популяциянын көбөйүшүнө шайкеш. B16F10 qPCR натыйжаларында Bax жана Bak1 жогорулап, Bcl-2, Bcl-xl жана Figure 2Bде Bcl-w азайган.
Figure 3түн негизги табылгасы
ROS сигналы 0, 2, 4 жана 8 сааттык убакыт чекиттеринде жалпысынан өсүүчү үлгү көрсөткөн. GSH жашоого жөндөмдүүлүктү дозага жараша калыбына келтирген. γH2AX, phospho-p53(Ser15), BIP жана CHOP көбөйүшү; PARP жана caspase-3 ажырашы; JC-1 кызыл/жашыл катышынын азайышы бирге DNA зыянын, ER стрессин, митохондрия дисфункциясын жана апоптотикалык аткаруу механизмин колдойт.
Figure 4түн негизги табылгасы
Transcriptome анализи apoptosis жана oxidative-stress менен байланышкан ген программаларын ырастап; ferroptosis-associated гендерде да өзгөрүү көрсөткөн. Sorafenib плазма цитотоксикалуулугун көбөйтсө, ferrostatin-1 жарым-жартылай rescue берген. HeLa клеткаларында Liperfluo сигналы lipid peroxidation көбөйүшүн көрсөткөн.
Supplementary Figure S2 боюнча негизги текст DFO клетка жашоого жөндөмдүүлүгүн же lipid peroxidationды олуттуу калыбына келтирбегенин билдирет. Supplementary PDF колдонуучу тарабынан өзүнчө берилбегендиктен Verianla бул тажрыйбанын чийки график маанилерин чыгарбайт.
Механизмдин Verianla үчүн өз алдынча кайра түзүлүшү
Изилдөө колдогон жыйынтыктар
- N₂/O₂ плазмасы менен иштетилген чөйрө изилденген рак клеткаларында жашоого жөндөмдүүлүктү азайткан.
- Адамдын баштапкы фибробласттары in vitro салыштырууда рак клеткаларына караганда азыраак таасирленген.
- c-PTIO натыйжасы реактивдүү азот түрлөрүнүн цитотоксикалык таасирге салымын колдойт.
- Клетка ичиндеги ROS көбөйүп, GSH клетка жашоого жөндөмдүүлүгүн жарым-жартылай/дозага жараша калыбына келтирген.
- Annexin V/PI, caspase-3 жана PARP натыйжалары апоптозду колдойт.
- γH2AX жана p53 Ser15 фосфорлануусу DNA damage response активдешүүсүн колдойт.
- BIP жана CHOP көбөйүшү ER-stress/proteostatic-stress жообун колдойт.
- JC-1 натыйжасы митохондрия мембрана потенциалы азайганын көрсөтөт.
- RNA-seq apoptosis жана oxidative-stress программаларын колдогон.
- Ferrostatin-1дин жарым-жартылай rescue таасири жана Liperfluo натыйжасы lipid peroxidation клетка өлүмүнө салым кошорун колдойт.
- DFO натыйжасы калыбына келтирүү бербегени каноникалык iron-dependent ferroptosis чечмелөөсүнө каршы.
- Плазма менен иштетилген PBS чычкан B16F10 шишик моделинде шишик өсүшүн азайткан.
Изилдөө колдобогон жыйынтыктар
- N₂/O₂ плазмасы адам рак бейтаптарында натыйжалуу жана коопсуз дарылоо экени көрсөтүлгөн эмес.
- Бардык рак түрлөрү бирдей сезгичтикке ээ экени көрсөтүлгөн эмес.
- Бардык нормалдуу адам ткандары дарылоодон корголору көрсөтүлгөн эмес.
- In vivo нормалдуу ткань тандалмалуулугу же кеңири системалык токсикалуулук сыналган эмес.
- Системалык вена ичине же ич көңдөйүнө колдонуу натыйжалуулугу көрсөтүлгөн эмес.
- Пайда болгон бардык ROS жана RNS түрлөрүнүн сандык химиялык курамы аныкталган эмес.
- Азоттон келип чыккан конкреттүү реактивдүү түрлөрдүн салыштырмалуу биологиялык салымы толук чечмеленген эмес.
- Lipid peroxidation натыйжасы canonical ferroptosis далили эмес.
- Sorafenib жана ferrostatin-1 натыйжалары бардык өлүм механизми ферроптоз экенин көрсөтпөйт.
- Локалдуу чычкан дарылоосу адамдардагы ткань өтүмдүүлүгүн же клиникалык дозаны аныктабайт.
Изилдөөнүн негизги күчтүү жактары
Изилдөө бир гана рак клетка модели менен чектелген эмес; ар башка ткань келип чыгышындагы эндометрий, сервикалдык, меланома жана өпкө рагы моделдерин бирге баалаган. Бул ыкма N₂/O₂ плазмасына жооп бир гана клетка линиясына мүнөздүү эмес экенин көрсөтүүгө жардам берген.
Экинчи күчтүү жагы — клетка өлүмү MTT жашоого жөндөмдүүлүктүн азайышы менен гана бааланбаганы. Annexin V/PI, апоптотикалык ген экспрессиясы, caspase/PARP ажырашы, DNA damage көрсөткүчтөрү, ER-stress көрсөткүчтөрү жана митохондрия мембрана потенциалы бири-бирин толуктаган өз алдынча далил катмарларын түзгөн.
Үчүнчү күчтүү жагы — кычкылдануу стрессинде ROS көбөйүшү гана көрсөтүлбөстөн, GSH менен rescue кийлигишүүсү да жасалганы. Ошентип ROS менен цитотоксикалуулук ортосундагы функционалдык байланыш күчөтүлгөн.
Төртүнчү күчтүү жагы — ферроптоз чечмелөөсү ferroptosis-related gene set натыйжасына гана калтырылбаганы. Sorafenib, ferrostatin-1, Liperfluo жана DFO тажрыйбалары аркылуу lipid peroxidation менен canonical ferroptosis бири-биринен ажыратылган.
Бешинчи күчтүү жагы — клетка культурасынын натыйжалары B16F10/C57BL/6 чычкан модели менен in vivo шишик өсүшү деңгээлинде кошумча сыналганы.
Изилдөөнүн негизги чектөөлөрү
Биринчи чектөө: Нормалдуу клетка тандалмалуулугу in vitro шартында адамдын баштапкы фибробласттары менен гана бааланган. Ар башка нормалдуу эпителий, эндотелий, иммундук же орган клеткалары системалуу түрдө салыштырылган эмес.
Экинчи чектөө: In vivo тажрыйба локалдуу колдонууга негизделет. Нормалдуу орган гистопатологиясы жана системалык токсикалуулук жүргүзүлбөгөндүктөн физиологиялык коопсуздук чеги аныкталган эмес.
Үчүнчү чектөө: Реактивдүү түрлөрдүн бардык спектри мүнөздөлгөн эмес. NO/RNS үчүн Griess/c-PTIO жана ROS үчүн клеткалык анализ жүргүзүлгөнү менен, конкреттүү nitrogen-derived reactive species түрлөрүнүн ар биринин салымы белгисиз.
Төртүнчү чектөө: Механисттик анализдер бардык клетка моделдеринде бирдей тереңдикте кайталанганы көрсөтүлгөн эмес. Айрым тажрыйбалар HEC1A, айрымдары HeLa, B16F10 же H1299 үстүндө жүргүзүлгөн.
Бешинчи чектөө: Изилдөө клиникалык дозалоону, ткань өтүмдүүлүгүн, pharmacodynamics жана узак мөөнөттүү кайталама колдонмолорду баалаган эмес.
Алтынчы чектөө: Article in Press версиясында терминологиялык/редакциялык шайкешсиздиктер бар: allograft/xenograft, intratumoral/subcutaneous инъекция деген термин, айрым Figure 2 legend көрүнүшү жана Methods-heatmap биологиялык кайталоолорунун көрүнүктүүлүгү сыяктуу нерселер финалдык версткага чейин такталышы мүмкүн.
Жетинчи чектөө: Supplementary Figure S1/S2 учурда жүктөлгөн негизги PDFтин толук илимий визуалдык бөлүгүндө жок болгондуктан, кошумча тажрыйбалардын чийки графиктери бул Verianla макаласында кайра түзүлгөн эмес.
Булак жана Ыкма Жөнүндө Эскертүү
Түпнуска аталышы: Nitrogen-oxygen plasma induces selective cancer cell death via apoptosis with lipid-peroxidation-associated mechanisms across multiple cancer cell models.
Авторлор жана ирети: Bum-Ho Bin, Sofia Brito, Sun Ju Park, Ki Bok Yoon, Hyojin Heo, Hantae Jo, Sehyun Chae, Byung Mook Weon, Sung Kweon Cho, Jiyoon Kim.
Тең салым: Bum-Ho Bin, Sofia Brito жана Sung Kweon Cho.
Жооптуу автор: Jiyoon Kim.
Мекеме 1: Department of Biological Sciences, Ajou University, Suwon, Republic of Korea.
Мекеме 2: The Anti-Aging Lab, Co. Ltd., Suwon, Republic of Korea.
Мекеме 3: Department of Pharmacology, College of Medicine, The Catholic University of Korea, Seoul, Republic of Korea.
Мекеме 4: Korea Research Institute of Bioscience & Biotechnology (KRIBB), Daejeon, Republic of Korea.
Мекеме 5 боюнча булак айырмасы: Article in Press PDF Hantae Jo үчүн Department of Neurosurgery, College of Medicine, The Catholic University of Korea, Seoul деген каттоону берет. Учурдагы Nature библиографиялык барагы болсо Department of Nuclear Medicine, Yonsei University College of Medicine, Seoul деген каттоону көрсөтөт. Бул айырма эрте жеткиликтүүлүк версиясы менен учурдагы жарыя metadataсынын ортосунда ачык сакталган.
Мекеме 6: Department of Smart Health Science and Technology, Kangwon National University, Chuncheon, Republic of Korea.
Мекеме 7: Department of Biotechnology and Bioengineering, College of ACE, Kangwon National University, Chuncheon, Republic of Korea.
Мекеме 8: School of Advanced Materials Science and Engineering, Sungkyunkwan University, Suwon, South Korea.
Мекеме 9: Department of Pharmacology, Ajou University School of Medicine, Suwon, South Korea.
Мекеме 10: Department of Medical Sciences, Graduate School, The Catholic University of Korea, Seoul, South Korea.
Мекеме 11: Institute for Aging and Metabolic Diseases, College of Medicine, The Catholic University of Korea, Seoul, South Korea.
Журнал: Scientific Reports.
Басма: Nature Portfolio / Springer Nature.
DOI: 10.1038/s41598-026-59131-4.
Келип түшкөн дата: 9 май 2025.
Кабыл алынган дата: 18 июнь 2026.
Онлайн жарыяланган дата: 6 июль 2026.
Булак түрү жана рецензия статусу: Рецензиядан өткөн жана кабыл алынган Scientific Reports изилдөө макаласы; учурда жүктөлгөн PDF жана азыркы Nature барагы Article in Press/unedited early-access версиясы катары белгиленген.
Version of Record статусу: Учурдагы расмий барак бул версия акыркы редакциялык процесстерден кийин автоматтык түрдө final Version of Record менен алмаштырыла турганын билдирет; ошондуктан учурдагы PDF final VOR катары белгиленген эмес.
Том / номер / макала номери: Учурдагы Article in Press PDF жана расмий эрте жеткиликтүүлүк библиографиялык көрүнүшүндө акыркы макала номери ачык берилбейт; Verianla бул талааны божомолдогон эмес.
Лицензия: Creative Commons Attribution 4.0 International (CC BY 4.0).
Изилдөө түрү: In vitro клетка культурасы + молекулалык механизм + transcriptomics + in vivo syngeneic murine melanoma шишик модели.
Негизги клетка моделдери: HEC1A, HeLa, B16F10, H1299 жана human primary fibroblasts.
Негизги плазма түзмөгү: TGT, Daejeon, Korea тарабынан берилген custom-built эки параллелдүү электроддуу плазма jet системасы; бир электрод керамикалык диэлектрик менен капталган; 5 kW жана 30 kHz high-voltage power supply; circulating water cooling.
Газ параметрлери: N₂ 10 cc/min, O₂ 5 cc/min; 135.200 mm³ mixing chamber; булак ошол эле сүйлөмдө 225 V маанисин берет, бирок бул маанинин жогорку чыңалуу булагынын параметрлери менен байланышын өзүнчө түшүндүрбөйт.
RNS өлчөөсү: Nitrite Assay Kit / Griess Reagent; абсорбанс 540 nm, SpectraMax 190.
Демейки in vitro плазма колдонмосу: Culture medium 10 мүнөт плазма менен иштетилет; клеткалар көбүнчө 24 саат иштетилет. Figure 1де 0, 5 жана 10 мүнөттүк плазма иштетүү шарттары да өзүнчө бар.
Чычкан модели: Ургаачы C57BL/6, n=9/топ; 1 × 10⁶ B16F10 клеткасы; PBS:Matrigel 1:1; flank subcutaneous tumor establishment; болжол менен 50 mm³де рандомизация.
Чычкан дарылоосу: 100 µL PBS же plasma-treated PBS; жумасына беш жолу, жалпы 15 колдонуу, 21 күн.
Инъекция терминологиясы боюнча эскертүү: Methods “subcutaneous injections”, Abstract жана Discussion болсо “intratumoral administration” деген сөз айкашын колдонот. Булактагы айырма сакталган.
Шишик модели терминологиясы боюнча эскертүү: Methods B16F10/C57BL/6 системасын syngeneic murine melanoma/allograft деп аныктайт; Figure 1F caption “xenograft” сөзүн колдонот. Биологиялык моделдин түзүлүшү allograft аныктамасына шайкеш, бирок Verianla булак текстиндеги шайкешсиздикти жашырбайт.
Жаныбар этикасынын уруксаты: Semyung University Institutional Animal Care and Use Committee, Approval No. smecae 22-08-02; ARRIVE guidelines.
MTT: 1 × 10⁴ клетка/well, 96-well plate, абсорбанс 570 nm.
FACS: >10.000 клетка; Annexin V-FITC/PI apoptosis detection; BD FACSAria III; BD FACSDiva v8.0.3.
Липиддик-пероксидация FACS: 1 µmol/L Liperfluo, 1 саат.
qRT-PCR: RNeasy Plus Mini Kit, AccuPower RT PreMix, SYBR Green, AriaMx Real-Time PCR System; GAPDH эталон; ΔΔCt ыкмасы.
Western blot буталары: γH2AX, BIP, CHOP, PARP, caspase-3, p53 жана phospho-p53(Ser15).
RNA-seq: RIN >9; Poly(A)+ mRNA; TruSeq Stranded mRNA LT Sample Prep Kit; Illumina NovaSeq 6000; Macrogen; булак Methods ар бир шарт үчүн үч биологиялык кайталоо билдирет.
DEG критерийлери: adjusted p≤0.05 жана |log₂ fold-change|>0.428; булак муну болжол менен 1.35-fold чеги катары аныктайт.
Holotomography: Tomocube HT-2H; TomoStudio; ImageJ2; 1 µmol/L Liperfluo же булакта 1 mM деп басылган JC-1.
Ферроптоз модуляторлору: Sorafenib 1 µM; ferrostatin-1 10 µM; DFO концентрациясы негизги PDFтин тиешелүү негизги текстинде так берилген эмес жана Verianla тарабынан ойлоп чыгарылган эмес.
Статистика: Кеминде үч өз алдынча тажрыйба; mean±SEM; two-tailed Student's t-test же one-way ANOVA + Tukey post-hoc; P<0.05.
Негизги өлүм механизми: Апоптоз; oxidative-stress-associated lipid peroxidation кошумча салым берет.
Ферроптоз чеги: Каноникалык iron-dependent ferroptosis колдоого алынбайт; DFO rescue берген эмес, Slc7a11/Slc7a5 көбөйгөн жана Acsl4 азайган.
Data availability: Raw жана processed RNA-seq маалыматтары GEO GSE231561 астында сакталган.
Каржылоо: Ajou University Research Fund; National Research Foundation of Korea Basic Science Research Program, RS-2021-NR060141 жана RS-2024-00405790; Korea Health Technology R&D Project/KHIDI, RS-2025-25459560.
Авторлордун салымы: Sofia Brito жана Bum-Ho Bin изилдөөнү долбоорлогон. Hyojin Heo, Ki Bok Yoon, Hantae Jo жана Sehyun Chae изилдөө жана маалымат чогултууну жүргүзгөн. Sofia Brito, Sun Ju Park жана Sung Kweon Cho formal analysis жана visualization аткарган. Byung Mook Weon методология жана техникалык ресурстарды колдоо көрсөткөн. Jiyoon Kim жана Bum-Ho Bin ресурстарды камсыздоо, supervision жана чечмелөө милдеттерин аткарган. Sofia Brito жана Bum-Ho Bin түпнуска долбоорду жазган; Sun Ju Park, Sung Kweon Cho жана Jiyoon Kim текстти карап чыгып оңдогон.
Кызыкчылыктардын кагылышы: Авторлор competing interests жок экенин билдирген.
Supplementary-material чеги: Негизги PDF Figure S1 жана Figure S2ге шилтеме кылат. Колдонуучу өзүнчө supplementary файл бербегендиктен бул Verianla версиясы негизги PDF бул кошумча тажрыйбалар жөнүндө ачык билдирген натыйжаларды гана колдонот; кошумча сүрөттөрдөн көрүнбөгөн жаңы сандарды чыгарбайт.
Figure 2 эрте-версия эскертүүсү: Figure 2Aнын негизги тексти жана FACS панелдери рак клеткасында күчтүүрөөк apoptosis чечмелөөсүн колдосо да, bar-graph legend/толтуруу көрүнүшү Article in Press басмасында текст менен толук шайкеш көрүнбөйт. Ошондуктан так пайыздык маанилер кайра чыгарылган эмес.
RNA-seq кайталоо эскертүүсү: Methods ар бир шарт үчүн үч биологиялык кайталоону билдирсе да, Figure 4D heatmap көрүнүктүү түрдө эки control жана эки plasma сапты көрсөтөт. Булак бул айырманы түшүндүрбөйт.
Клиникалык чек: Адамдарда дарылоо сыналган эмес. In vivo маалымат локалдуу B16F10/C57BL/6 чычкан моделине тиешелүү; systemic exposure, organ toxicity, normal-tissue histopathology жана human therapeutic efficacy көрсөтүлгөн эмес.
Пикир калтырыңыз
E-mail дарегиңиз жарыяланбайт. Милдеттүү талаалар * менен белгиленген