


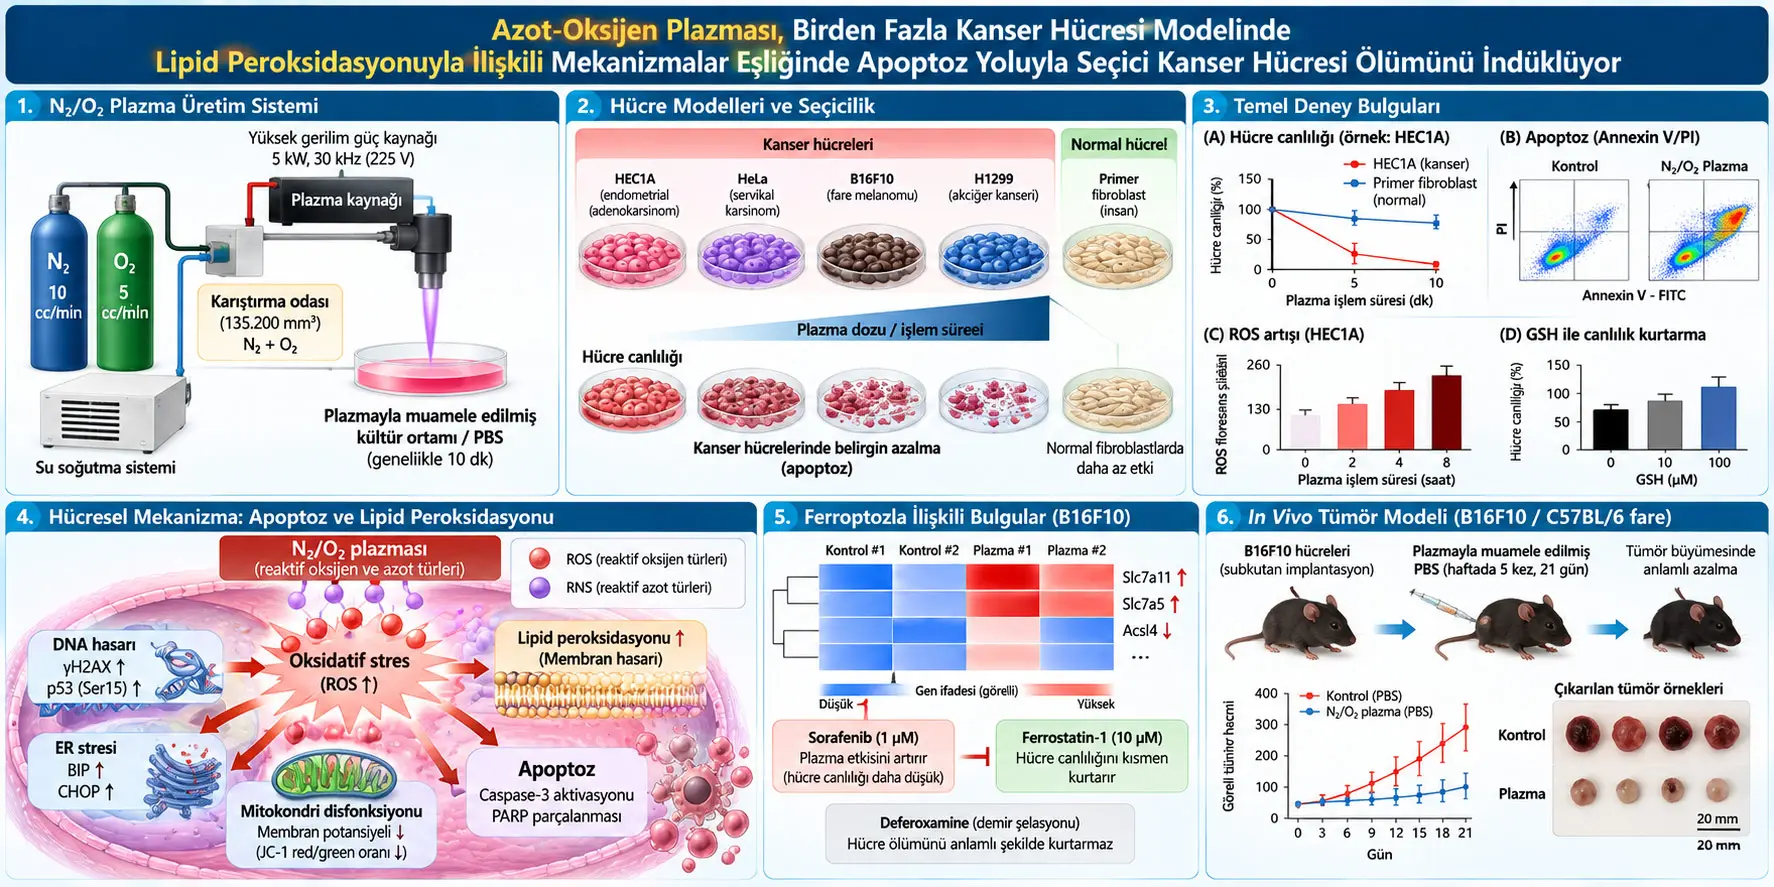
Azot-oksijen plazması (N₂/O₂ plasma), kontrollü azot ve oksijen gaz akışından elektriksel plazma üreterek reaktif oksijen ve azot türleri oluşturmayı amaçlayan fiziksel bir plazma yaklaşımıdır. Bu çalışma, N₂/O₂ plazmasıyla muamele edilmiş ortamların endometrial adenokarsinom HEC1A, servikal karsinom HeLa, fare melanomu B16F10 ve insan küçük hücreli olmayan akciğer kanseri H1299 modellerindeki etkilerini; normal kontrol olarak insan primer fibroblastlarını ve ayrıca B16F10/C57BL/6 fare tümör modelini kullanarak incelemiştir. Kaynağın ana sonucu, N₂/O₂ plazmasının araştırılan kanser modellerinde oksidatif stresi artırarak ağırlıklı olarak apoptozu harekete geçirdiği ve buna lipid peroksidasyonuyla ilişkili oksidatif membran hasarının eşlik ettiğidir.
İn vitro deneylerde hücreler doğrudan plazma jetinin altında tutulmamıştır. Kaynakta kültür ortamının plazmayla muamele edildiği ve daha sonra hücrelere uygulandığı belirtilmektedir. Varsayılan yöntemde kültür ortamı N₂/O₂ plazmasıyla 10 dakika işlenmiş, hücreler bu ortamla 24 saat inkübe edilmiştir; bazı şekillerde 0, 5 veya 10 dakikalık plazma işlemleri ve farklı inkübasyon süreleri ayrıca kullanılmıştır.
HEC1A hücrelerinde plazma düzeyi arttıkça hücre canlılığı azalırken insan primer fibroblastlarında aynı belirgin kayıp görülmemiştir. H1299 hücrelerinde reaktif azot türlerinin etkisini sınamak için kullanılan 1 µM carboxy-PTIO, N₂/O₂ plazmasının sitotoksik etkisini azaltmıştır. Bununla birlikte çalışma yalnız belirli bir normal hücre tipiyle karşılaştırma yapmıştır; sonuç bütün normal dokuların plazmaya dirençli veya yöntemin insanlar için güvenli olduğu anlamına gelmez.
Apoptoz Annexin V/propidium iodide akış sitometrisi, pro-apoptotik Bax ve Bak1 genlerinin yükselmesi, anti-apoptotik Bcl-2, Bcl-xl ve Figure 2'de Bcl-w'nin azalması, PARP ve caspase-3 parçalanması, γH2AX artışı, p53 Ser15 fosforilasyonu, ER stresi göstergeleri BIP ve CHOP'un yükselmesi ve JC-1 ile ölçülen mitokondri membran potansiyeli kaybıyla desteklenmiştir.
Hücre içi reaktif oksijen türleri (ROS), N₂/O₂ plazması sonrasında zamanla yükselmiştir. Glutathione (GSH) ile ROS yükü azaltıldığında hücre canlılığının doza bağlı biçimde geri kazanılması, oksidatif stresin hücre ölümünde yalnız eşlik eden bir belirteç değil, önemli bir upstream sürücü olduğunu desteklemektedir. Bununla birlikte çalışma üretilen bütün spesifik oksijen ve azot türlerini tek tek tanımlamamış ve özellikle azot-türevi reaktif türlerin göreli katkısını tam olarak çözmemiştir.
RNA-seq ve fonksiyonel deneyler ferroptozla ilişkili genlerde değişiklik ve lipid peroksidasyonunda artış göstermiştir. Ferrostatin-1 hücre canlılığını kısmen kurtarmış, sorafenib plazma sitotoksisitesini güçlendirmiştir. Buna karşılık demir şelatörü deferoxamine hücre ölümünü veya lipid peroksidasyonunu anlamlı biçimde azaltmamıştır. Slc7a11 ve Slc7a5 yükselirken Acsl4 azalmıştır. Bu nedenle kaynak, hücre ölümünü klasik demire bağımlı ferroptoz olarak değil, baskın apoptoza eşlik eden oksidatif stres ve lipid-peroksidasyonuyla ilişkili sitotoksisite olarak yorumlamaktadır.
Fare deneyinde dişi C57BL/6 farelerde B16F10 melanoma hücreleriyle oluşturulan tümörlerin büyümesi, plazmayla muamele edilmiş PBS verilen grupta kontrole kıyasla azalmıştır. Ancak sistemik uygulama, organ düzeyi histopatoloji, normal doku karşılaştırması ve kapsamlı toksisite analizi yapılmamıştır. Dolayısıyla bu çalışma insanlarda kanser tedavisinin etkinliğini veya güvenliğini kanıtlamaz.
Plazma nedir?
Plazma, gaz moleküllerinin enerji alarak elektron, iyon ve farklı reaktif türlerin bulunduğu daha yüksek enerjili bir duruma geçtiği fiziksel ortamdır. Biyomedikal plazma çalışmalarında amaç yalnız yüksek sıcaklık üretmek değildir; hücrelerle etkileşebilecek reaktif oksijen türleri (reactive oxygen species, ROS), reaktif azot türleri (reactive nitrogen species, RNS), elektriksel alanlar ve diğer fizikokimyasal bileşenlerin kontrollü biçimde oluşturulmasıdır.
Bu makalenin deney düzeneğinde azot ve oksijen ayrı mass-flow controller sistemleriyle verilmekte, karıştırma odasında birleştirilmekte ve yüksek gerilimli plazma kaynağında işlenmektedir. Kaynak çıkış gaz sıcaklığını veya kesin atmosferik basınç değerini raporlamadığından Verianla bu cihaz için kaynakta bulunmayan bir sıcaklık veya basınç değeri üretmemektedir.
Neden azot ve oksijen birlikte kullanılmış?
Yazarların çalışma gerekçesi, helyum veya argon gibi soy gaz tabanlı sistemlerde reaktif tür kimyasının çevre havasının karışmasına ve dar katkı gazı koşullarına duyarlı olabilmesi; ayrıca soy gazların maliyet ve tedarik açısından dezavantaj oluşturabilmesidir. N₂/O₂ karışımı daha kolay erişilebilen gazlardan reaktif oksijen ve azot türlerini birlikte üretme ve kimyasal bileşimi kontrol etme olanağı açısından değerlendirilmiştir.
Bununla birlikte çalışma N₂/O₂ karışımının bütün alternatif gaz karışımlarından daha etkili, daha ucuz veya klinik olarak üstün olduğunu doğrudan karşılaştırmalı olarak göstermemiştir.
Plazma düzeneği nasıl çalışıyor?
Reaktif oksijen ve azot türleri ne demektir?
ROS, oksijen içeren yüksek reaktiviteli molekül ve radikallerin genel adıdır. RNS ise azot içeren reaktif türleri kapsar. Bu moleküller düşük ve düzenlenmiş düzeylerde hücresel sinyalleşmeye katkıda bulunabilirken aşırı üretildiklerinde proteinleri, lipidleri ve nükleik asitleri oksidatif olarak değiştirebilir.
Kaynak reaktif azot türlerini Griess Reagent tabanlı Nitrite Assay Kit ile değerlendirmiş ve absorbansı 540 nm'de ölçmüştür. Figure 1 bunu “nitric oxide concentration” olarak sunmaktadır. Bu nedenle Verianla bu ölçümü doğrudan bütün spesifik RNS türlerinin nicel kimyasal profili olarak yorumlamamaktadır.
Azot-Oksijen Plazması Kanser Hücrelerini Nasıl Öldürüyor?
Çalışmanın desteklediği ana mekanizma, N₂/O₂ plazmasıyla oluşturulan reaktif türlerin hücresel redoks dengesini bozması; bunun ROS artışı, DNA hasarı, ER stresi, mitokondri membran potansiyeli kaybı ve lipid peroksidasyonuyla ilişkili membran hasarını tetiklemesi ve bu stres yollarının ağırlıklı olarak kaspaz-bağımlı apoptotik hücre ölümünde birleşmesidir.
c-PTIO deneyi neyi gösteriyor?
Carboxy-PTIO, çalışmada NO ile ilişkili reaktif türlerin etkisini sınamak amacıyla kullanılan bir scavenger'dır. H1299 hücrelerinde 1 µM c-PTIO, N₂/O₂ plazmasıyla görülen hücre canlılığı kaybını azaltmıştır. Bu sonuç gaz kaynaklı reaktif azot türlerinin biyolojik etkide rol oynadığını destekler.
Ancak c-PTIO müdahalesi “bütün sitotoksisite yalnız NO tarafından oluşturuluyor” sonucunu göstermez. Çalışmanın sonraki deneyleri hücre içi ROS'un da merkezi rol taşıdığını göstermektedir.
ROS'un neden upstream sürücü olduğu düşünülüyor?
HEC1A hücrelerinde ROS floresans sinyali N₂/O₂ plazması sonrasında zamanla yükselmiştir. Yalnız bu korelasyon mekanizma için yeterli olmayacağından araştırmacılar glutathione (GSH) ile müdahale yapmıştır. Figure 3B'de 10 ve 100 µM GSH kullanıldığında hücre canlılığı doza bağlı biçimde yükselmiştir.
Bir biyolojik ara basamağın inhibisyonu veya temizlenmesi downstream sonucu azaltıyorsa bu, ara basamağın mekanizmada işlevsel rolünü destekler. GSH sonucu bu nedenle ROS'un yalnız hücre ölümüne eşlik eden bir belirteç olmadığını, sitotoksisiteye katkı sağlayan bir upstream faktör olduğunu göstermektedir.
γH2AX neyi gösterir?
H2AX, DNA hasarı yanıtında fosforile olabilen bir histon proteinidir. Fosforillenmiş biçimi γH2AX, özellikle DNA kırıkları ve DNA damage response aktivasyonu için yaygın kullanılan bir göstergedir. N₂/O₂ plazmasından sonra γH2AX'ın yükselmesi, hücrelerde DNA hasarı yanıtının aktive olduğunu desteklemiştir.
p53 Ser15 fosforilasyonu neden ölçülmüş?
p53, DNA hasarı ve hücresel stres altında hücre döngüsü durması veya apoptotik yanıtın düzenlenmesine katılan tümör baskılayıcı proteindir. Ser15 bölgesindeki fosforilasyon DNA damage response ile ilişkili aktivasyon göstergelerinden biridir. Çalışmada p53 Ser15 fosforilasyonu artmış ve γH2AX bulgusuyla birlikte DNA hasarı/stres yanıtını desteklemiştir.
BIP ve CHOP neyi gösteriyor?
BIP, endoplazmik retikulumdaki protein katlanma yükü ve unfolded protein response ile ilişkili şaperonlardan biridir. CHOP ise uzamış veya şiddetli ER stresi sırasında apoptotik programa katkıda bulunabilen stres yanıtı transkripsiyon faktörüdür. İki proteinin yükselmesi, N₂/O₂ plazmasının ER proteostazını bozduğunu destekleyen bulgulardandır.
PARP ve caspase-3 parçalanması neden önemlidir?
Caspase-3 apoptotik yürütücü kaspazlardan biridir. Aktive caspase-3 birçok hücresel hedefi keser; PARP da bu hedeflerden biridir. Cleaved caspase-3 ve cleaved PARP görülmesi, hücrenin yalnız stres altında olmadığını, apoptotik yürütme mekanizmasının aktive olduğunu destekleyen biyokimyasal kanıttır.
Mitokondri membran potansiyeli nasıl ölçüldü?
HeLa hücrelerinde JC-1 floresan boyası ve holotomography tabanlı canlı hücre görüntüleme kullanılmıştır. Sağlıklı polarize mitokondrilerde JC-1 daha fazla kırmızı aggregate sinyali oluştururken membran potansiyeli düştüğünde yeşil monomer sinyali artar.
N₂/O₂ plazması sonrasında kırmızı/yeşil floresans oranı azalmış ve JC-1 monomerlerinin göreli oranı yükselmiştir. Bu sonuç mitokondriyal depolarizasyonu ve intrinsic apoptotik yolun devreye girmesini desteklemektedir.
Methods bölümünde JC-1 konsantrasyonu 1 mM olarak basılmıştır. Bu değer Verianla tarafından başka bir birime sessizce çevrilmemiştir; kaynakta yazdığı biçimde korunmaktadır.
Lipid Peroksidasyonu Bu Çalışmada Ferroptoz Kanıtı mı?
Hayır. Lipid peroksidasyonu artmış ve ferrostatin-1 hücre ölümünü kısmen azaltmıştır; fakat demir şelasyonu sonucu kurtarmamış, ayrıca Slc7a11/Slc7a5 artışı ve Acsl4 azalması kanonik ferroptozdan çok koruyucu redoks adaptasyonuna işaret etmiştir. Kaynağın vardığı sonuç klasik demire bağımlı ferroptoz değil, apoptoza eşlik eden lipid-peroksidasyonuyla ilişkili oksidatif sitotoksisitedir.
Ferroptoz nedir?
Ferroptoz, demire bağımlı lipid peroksidasyonunun belirleyici olduğu düzenlenmiş hücre ölümü biçimidir. Apoptozdan farklı moleküler ve morfolojik özelliklere sahiptir. Bu nedenle bir hücrede lipid peroksidasyonunun artması tek başına ferroptoz tanısı için yeterli değildir.
RNA-seq neden ferroptoz olasılığını gündeme getirdi?
B16F10 hücrelerinde yapılan transcriptomic profiling, apoptotik sinyal yolları ve oksidatif stres yanıtlarının yanında ferroptozla ilişkilendirilmiş gen kümelerinde de değişiklik göstermiştir. Volcano plot'ta kaynak 335 genin anlamlı biçimde upregulated, 206 genin downregulated olduğunu göstermektedir.
Ferroptozla ilişkili seçilmiş genlerden Slc7a11 ve Slc7a5 yükselirken Acsl4 azalmıştır. Yazarlar özellikle bu örüntünün canonical ferroptosis'in aktif olarak ilerlemesinden çok oksidatif yük karşısında redox-regulatory ve anti-ferroptotic adaptasyonu düşündürdüğünü belirtmektedir.
Slc7a11 neden önemlidir?
Slc7a11, cystine/glutamate antiporter sisteminin önemli bileşenlerinden biridir ve hücrenin glutathione sentezi için gerekli cystine'i içeri almasına katkıda bulunur. Yükselmesi hücrenin oksidatif yükü tamponlamak için antioxidant kapasitesini korumaya çalıştığı bir stres-adaptasyon yanıtıyla uyumlu olabilir.
Acsl4 neden önemlidir?
ACSL4, çoklu doymamış yağ asitlerinin membran lipidlerine katılmasında rol oynayan ve birçok ferroptoz modelinde ferroptoz duyarlılığıyla ilişkilendirilen enzimdir. Çalışmada Acsl4 mRNA'sının azalması, yazarların canonical ferroptosis yerine koruyucu/anti-ferroptotic adaptasyon yorumunu destekleyen unsurlardan biridir.
Sorafenib ve ferrostatin-1 deneyleri neyi gösteriyor?
Kaynak sorafenib'i bu deneyde ferroptozu teşvik eden bir modülatör olarak kullanmıştır. 1 µM sorafenib N₂/O₂ plazmasıyla birlikte uygulandığında B16F10 hücrelerindeki sitotoksisite artmıştır.
10 µM ferrostatin-1 ise N₂/O₂ plazmasıyla azalan hücre canlılığını kısmen kurtarmıştır. Ferrostatin-1 lipid peroksidasyonunu engelleyen bir ferroptoz inhibitörü olduğundan bu sonuç lipid peroksidasyonunun hücre ölüm yüküne katkıda bulunduğunu destekler.
Ancak “kısmi kurtarma”, plazmanın bütün etkisinin ferroptoz üzerinden gerçekleşmediğini de gösterir.
Deferoxamine deneyi neden kritik?
Deferoxamine (DFO) demiri bağlayan bir şelatördür. Eğer gözlenen hücre ölümü klasik demire bağımlı ferroptozla açıklanıyor olsaydı demir şelasyonunun hücre ölümünü ve lipid peroksidasyonunu azaltması beklenirdi. Kaynak DFO'nun bunu anlamlı biçimde gerçekleştirmediğini bildirmektedir.
Bu nedenle yazarlar lipid peroksidasyonunun bulunduğunu kabul ederken sonucu klasik iron-dependent ferroptosis olarak sınıflandırmamaktadır.
Apoptoz ile lipid peroksidasyonu aynı anda bulunabilir mi?
Evet. Hücre ölüm mekanizmaları her zaman birbirinden tamamen izole değildir. Yoğun oksidatif stres lipid membranları, DNA, protein katlanma sistemleri ve mitokondriyi aynı anda etkileyebilir. Bu çalışmanın kanıt örüntüsü, baskın yürütme mekanizmasının apoptoz olduğunu; lipid peroksidasyonunun ise ek oksidatif hasar katmanı oluşturduğunu desteklemektedir.
Bu Çalışma İnsanlarda Kanser Tedavisi Kanıtı mı?
Hayır. Çalışmada insan kanser hücre hatları ve bir fare melanoma allograft modeli kullanılmıştır, fakat insan hastalarda N₂/O₂ plazma tedavisi uygulanmamış; klinik tümör yanıtı, doz, doku penetrasyonu, sistemik güvenlik, organ toksisitesi veya uzun dönem etkinlik değerlendirilmemiştir.
Fare deneyi nasıl yapıldı?
Yetişkin dişi C57BL/6 fareler her grupta n=9 olacak şekilde kullanılmıştır. 1 × 10⁶ B16F10 fare melanoma hücresi soğuk PBS ile Corning Matrigel'in 1:1 karışımı içinde hazırlanmış ve farelerin flank bölgesine subkutan olarak enjekte edilmiştir.
Tümörler yaklaşık 50 mm³'e ulaştığında fareler tedavi gruplarına randomize edilmiştir. Kontrol farelerine 100 µL PBS, deney grubuna 100 µL plazmayla muamele edilmiş PBS verilmiştir. Uygulama haftada beş kez, toplam 15 tedavi olacak biçimde 21 gün sürdürülmüştür.
Kaynak Methods bölümü bu uygulamaları “subcutaneous injections” olarak yazarken Abstract ve Discussion “intratumoral administration” ifadesini kullanmaktadır. Kaynak bu terminolojik farkı açıklamadığı için Verianla uygulamanın kesin anatomik konumunu bunlardan birini seçerek yeniden tanımlamamaktadır.
Tedavi sonunda tümörler çıkarılmış ve plazmayla muamele edilmiş PBS alan grupta tümör büyüklüğü kontrole kıyasla anlamlı biçimde daha düşük bulunmuştur.
Ancak çalışma normal organ histopatolojisi, sistemik toksisite veya normal-doku/tümör seçiciliğini in vivo karşılaştırmamıştır. Ayrıca uygulamanın lokal olması nedeniyle sistemik maruziyet sınırlıdır.
Allograft ile xenograft arasındaki fark nedir?
Syngeneic allograft, aynı türden ve genetik olarak uyumlu hayvan ile tümör hücresinin kullanıldığı tümör modelidir. Bu çalışmada B16F10 bir fare melanoma hücresi, C57BL/6 da fare olduğundan Methods bölümü sistemi syngeneic murine melanoma/allograft olarak tanımlamaktadır.
Xenograft ise farklı türler arasında nakledilen hücre veya dokuyu ifade eder; örneğin insan tümör hücresinin fareye verilmesi. Figure 1F açıklamasının B16F10/C57BL/6 deneyine “xenograft” demesi Methods tanımıyla uyumlu değildir. Bu Article in Press sürümündeki terminolojik tutarsızlık Verianla tarafından sessizce düzeltilmemiştir.
Çalışmanın Yöntemi ve Bulguları
Plazma üretim sisteminin teknik parametreleri
| Parametre | Kaynak değeri | Bilimsel rolü |
|---|---|---|
| Elektrot düzeni | İki paralel metal elektrot | Plazma oluşturacak elektrik alanın sağlanması |
| Dielektrik | Bir elektrot seramik dielektrik kaplı | Plazma oluşumunu destekleyen elektriksel yapı |
| Güç kaynağı | 5 kW, 30 kHz yüksek gerilim güç kaynağı | Plazma üretimi |
| Soğutma | Dolaşımlı su soğutma sistemi | Operasyon sıcaklığının korunması |
| Karıştırma odası | 135.200 mm³ | N₂ ve O₂ akışlarının karıştırılması |
| N₂ akışı | 10 cc/min | Azot bileşeni |
| O₂ akışı | 5 cc/min | Oksijen bileşeni |
| Gerilim ifadesi | 225 V | Kaynak bu değeri flow-controller cümlesinde verir; 5 kW/30 kHz güç sistemiyle kesin ilişkisini ayrıca açıklamaz |
| Kültür ortamının plazmayla işlenmesi | Varsayılan 10 dakika | Plazmayla aktive edilmiş ortam hazırlanması |
| Hücre inkübasyonu | Varsayılan 24 saat | Biyolojik etkinin değerlendirilmesi |
Çalışmada kullanılan hücre modelleri
| Hücre | Köken | Çalışmadaki ana kullanım |
|---|---|---|
| HEC1A | İnsan endometrial adenokarsinom | Canlılık, Annexin V/PI, ROS, DNA hasarı ve ER-stresi mekanizmasının ana modeli |
| HeLa | İnsan servikal karsinom | JC-1 mitokondri analizi ve canlı hücre lipid-peroksidasyon görüntülemesi |
| B16F10 | Fare melanoma | RNA-seq, ferroptoz/lipid-peroksidasyon modülatörleri ve in vivo tümör modeli |
| H1299 | İnsan küçük hücreli olmayan akciğer karsinomu | c-PTIO ile reaktif azot türlerinin rolünün değerlendirilmesi |
| Human primary fibroblasts | İnsan primer fibroblast | Normal hücre karşılaştırması |
Hücre kültürü koşulları
Bütün hücreler DMEM ortamında %10 fetal bovine serum ve %1 penicillin-streptomycin ile, 37 °C'de ve nemlendirilmiş %5 CO₂ inkübatörde yetiştirilmiştir.
MTT canlılık testi
Hücre canlılığı Cell Proliferation Kit I MTT yöntemiyle değerlendirilmiştir. Hücreler 96-well plate'lere 1 × 10⁴ hücre/well olacak şekilde ekilmiş ve absorbans SpectraMax 190 microplate reader ile 570 nm'de ölçülmüştür.
MTT metabolik aktiviteye dayalı göreli hücre canlılığı göstergesidir. Dolayısıyla MTT sinyalinin azalması tek başına hangi hücre ölüm biçiminin gerçekleştiğini belirlemez. Bu nedenle kaynak ayrıca Annexin V/PI, caspase/PARP ve diğer mekanistik deneyleri kullanmıştır.
Annexin V ve propidium iodide neyi ayırıyor?
Annexin V, apoptoz sırasında hücre zarının dış yüzeyine taşınan phosphatidylserine bağlanır. Propidium iodide (PI) ise membran bütünlüğünü kaybetmiş hücrelere girerek DNA'yı boyar.
| Annexin V | PI | Genel yorum |
|---|---|---|
| Negatif | Negatif | Canlı hücre |
| Pozitif | Negatif | Erken apoptozla uyumlu |
| Pozitif | Pozitif | Geç apoptoz / ileri membran kaybı |
| Negatif | Pozitif | Primer nekrotik veya ağır membran hasarlı hücrelerle uyumlu olabilir |
Kaynak her örnek için 10.000'den fazla hücre analiz etmiş ve BD FACSAria III Cell Sorter ile BD FACSDiva v8.0.3 kullanmıştır.
Article in Press Figure 2A'nın ana metni HEC1A'da belirgin apoptotik artış, primer fibroblastlarda ise aynı trendin bulunmadığını söylüyor ve FACS paneli bu anlatımla uyumludur. Buna karşılık sağdaki özet bar grafiğinin görünür legend/dolgu eşlemesi metinle tam uyumlu görünmemektedir. Bu nedenle Verianla Figure 2A'dan yeni kesin yüzde değerleri çıkarmamaktadır.
Apoptoz ilişkili genlerde ne değişti?
B16F10 hücrelerinde N₂/O₂ plazması sonrasında pro-apoptotik Bax ve Bak1 mRNA'ları yükselmiştir. Anti-apoptotik Bcl-2 ve Bcl-xl azalmıştır. Figure 2B ayrıca Bcl-w düzeyinde de belirgin azalma göstermektedir.
Kaynak bu bölümde özellikle mRNA düzeylerini değerlendirdiğini ve bu gen değişimlerinin protein düzeyinde ayrıca doğrulanması gerektiğini belirtmektedir.
qRT-PCR ve ΔΔCt yöntemi
RNA RNeasy Plus Mini Kit ile çıkarılmış, Nano-400A ile ölçülmüş, AccuPower RT PreMix ile cDNA'ya çevrilmiş ve AriaMx Real-Time PCR System üzerinde SYBR Green temelli qPCR yapılmıştır. GAPDH housekeeping gene olarak kullanılmıştır.
Kaynak gen ekspresyonunu ΔΔCt yöntemi ile analiz ettiğini bildirir. Kaynak denklemleri ayrı ayrı yazmadığından aşağıdaki matematik, yöntemin öğretici standart açılımıdır; çalışmanın yeni bir denklemi değildir:
\(\Delta Ct = Ct_{\mathrm{hedef}} - Ct_{\mathrm{referans}}\)
\(\Delta\Delta Ct = \Delta Ct_{\mathrm{işlem}} - \Delta Ct_{\mathrm{kontrol}}\)
\(\mathrm{Göreli\ ekspresyon} = 2^{-\Delta\Delta Ct}\)
Formül neyi hesaplar? Hedef gen mRNA'sının housekeeping gene normalize edilmiş düzeyinin kontrol koşuluna göre göreli değişimini.
Ct nedir? qPCR floresans sinyalinin belirlenen eşiği geçtiği cycle sayısıdır.
ΔCt ne yapar? Hedef geni aynı örnekteki referans gene normalize eder.
ΔΔCt ne yapar? Normalize edilmiş işlem grubunu normalize edilmiş kontrol grubuyla karşılaştırır.
2−ΔΔCt ne verir? Boyutsuz göreli kat değişimini.
Yorum sınırı: Kaynak ham Ct değerlerini tablo halinde vermediğinden Verianla yeni fold-change değerleri hesaplamamaktadır.
Kaynakta verilen qPCR primerleri
| Gen | Forward primer | Reverse primer |
|---|---|---|
| Bax | 5′-TTTTTGCTACAGGGTTTCAT-3′ | 5′-CTGTCCAGTTCATCTCCAAT-3′ |
| Bak1 | 5′-ACGACAGAGTTCCAGAAT-3′ | 5′-AGCTGATGCCACTCTTAAT-3′ |
| Bcl-2 | 5′-CCTGGGATGACTGAGTACC-3′ | 5′-CCAGGAGAAATCAAACAGAG-3′ |
| Bcl-xl | 5′-AGAGCTTTGAGCAGGTAGTG-3′ | 5′-CAATACCTGCATCTCCTTGT-3′ |
| Bcl-w | 5′-TGCTGAGAGTGTCAACAAAG-3′ | 5′-CCCGTATAGAGCTGTGAACT-3′ |
| Acsl4 | 5′-CTAGGACCGAAGGACACATA-3′ | 5′-CTAGTCCAGGGATACGTTCA-3′ |
| Slc7a5 | 5′-ACCCTCTCTACCAACCAGAT-3′ | 5′-ATCAGAATTGCTGTGAGCTT-3′ |
| Slc7a11 | 5′-TGGTCCTAAATAGCACGAGT-3′ | 5′-TGTTTGCCCTTTAATTAGCTG-3′ |
| Gapdh | 5′-CCAGTATGACTCCACTCACG-3′ | 5′-GGTGGTGAAGACACCAGTAG-3′ |
Western blot analizi
Hücreler RIPA buffer ile parçalanmış, 15.000 × g'de 5 dakika santrifüj edilmiş ve proteinler 5-20% gradient veya %15 SDS-PAGE jellerinde ayrılmıştır. Nitrocellulose membranlara transferden sonra γH2AX, BIP, CHOP, PARP, caspase-3, p53 ve phospho-p53(Ser15) antikorları kullanılmıştır.
Kaynak antikor dilüsyonunu metinde “1:2-3000” biçiminde basmaktadır. İfade erken-sürüm metninde tipografik olarak belirsizdir; Verianla bunu sessizce 1:2000 veya 1:3000 gibi yeni bir değere dönüştürmemektedir.
RNA-seq nasıl yapıldı?
B16F10 hücrelerinden total RNA RNeasy Mini Kit ile çıkarılmış; kalite Agilent 2100 Bioanalyzer ve RNA 6000 Nano LabChip ile kontrol edilmiştir. Bütün örneklerde RNA integrity number (RIN) >9 olarak raporlanmıştır.
Poly(A)+ mRNA, TruSeq Stranded mRNA LT Sample Prep Kit ile ayrılmış ve parçalanmış; sekanslama Illumina NovaSeq 6000 platformunda Macrogen tarafından gerçekleştirilmiştir.
Methods her koşul için üç biyolojik tekrar kullanıldığını belirtmektedir. Buna karşılık ana Article in Press Figure 4D heatmap'inde görünür satırlar Control #1, Control #2, N₂/O₂ Plasma #1 ve N₂/O₂ Plasma #2 biçimindedir. Kaynak üçüncü tekrarın heatmap'te neden görünmediğini açıklamamaktadır.
Diferansiyel gen kriteri nasıl tanımlandı?
Her gen için Student's t-test uygulanmış ve sample label permutation kullanılarak T-statistic için empirical null distributions oluşturulmuştur.
Bir genin differentially expressed gene (DEG) kabul edilmesi için iki koşul birlikte aranmıştır:
Adjusted p-value ≤ 0.05
ve
|log₂(fold change)| > 0.428
Kaynak 0.428 sınırının yaklaşık 1.35-fold değişime karşılık geldiğini ve null log₂ fold-change dağılımının 0.5. ve 99.5. yüzdeliklerinin ortalamasına dayandığını belirtmektedir.
log₂(fold-change) ne anlatır?
Fold-change bir genin işlem grubunda kontrole göre ne kadar değiştiğini ifade eder. Log₂ dönüşümü artış ve azalışları simetrik bir ölçeğe taşır. Pozitif log₂ fold-change yükselmeyi, negatif değer azalmayı gösterir.
−log₁₀(P) neden volcano plot'ta kullanılır?
Figure 4C'nin y ekseni \(-\log_{10}(P)\) dönüşümünü kullanmaktadır. P küçüldükçe −log₁₀(P) büyür; bu nedenle istatistiksel olarak daha küçük P değerleri grafikte daha yukarıda görünür. Bu dönüşüm yeni bir biyolojik büyüklük üretmez, yalnız P değerlerini grafik üzerinde okunabilir hale getirir.
RNA-seq'in ana görünür sonucu
| DEG sınıfı | Gen sayısı |
|---|---|
| Upregulated | 335 |
| Downregulated | 206 |
Pathway enrichment analizleri apoptosis, oxidative stress response ve reactive oxygen species response gibi süreçleri öne çıkarmıştır. Ferroptosis de enrichment sonuçlarında görünmüştür; ancak tek başına bir gen-set zenginleşmesi hücrenin ferroptozla öldüğünü kanıtlamaz. Bu nedenle kaynak fonksiyonel sorafenib, ferrostatin-1, lipid-peroksidasyon ve DFO deneylerini ayrıca yürütmüştür.
Holotomography tabanlı canlı hücre görüntüleme
Hücreler TomoDish içinde yaklaşık %60 confluency'ye ulaştığında kültür ortamı plasma-treated medium ile değiştirilmiş ve bir saat inkübe edilmiştir. Daha sonra ortam Liperfluo veya JC-1 içeren HBSS ile değiştirilmiştir.
Lipid peroxidation için 1 µmol/L Liperfluo; mitochondrial membrane potential için kaynakta 1 mM olarak yazılan JC-1 kullanılmıştır. 30 dakikalık boyama sonrasında hücreler Tomocube HT-2H mikroskobunda refractive-index temelli holotomography ile görüntülenmiştir. Floresans yoğunlukları ImageJ2 ile nicelleştirilmiştir.
İstatistiksel analiz
Veriler en az üç bağımsız deneyden elde edilmiş ve ortalama ± standart hata (mean ± SEM) olarak verilmiştir. İki grup karşılaştırmalarında two-tailed Student's t-test, çoklu grup karşılaştırmalarında one-way ANOVA ve Tukey post-hoc test kullanılmıştır.
İstatistiksel anlamlılık eşiği P<0.05'tir. İşaretleme sistemi *P<0.05, **P<0.01, ***P<0.001 ve N.S.=not significant şeklindedir.
Figure 1'in ana bulgusu
Plazma çıktısı yükseldikçe Griess-temelli NO/RNS sinyali artmıştır. HEC1A hücre canlılığı plazma dozuyla düşerken normal primer fibroblastlar kaynak yorumunda göreli olarak korunmuştur. c-PTIO'nun H1299 hücrelerinde canlılığı kurtarması reaktif azot türlerinin katkısını desteklemiştir.
B16F10/C57BL/6 fare deneyinde plazmayla muamele edilmiş PBS alan grupta tümör büyüklüğü kontrole göre anlamlı biçimde düşmüştür. Ham veri tablosu verilmediğinden Verianla grafikten yeni kesin tümör hacmi değerleri üretmemektedir.
Figure 2'nin ana bulgusu
Annexin V/PI dağılımı N₂/O₂ plazması sonrasında HEC1A hücrelerinde apoptotik popülasyon artışıyla uyumludur. B16F10 qPCR sonuçlarında Bax ve Bak1 yükselmiş, Bcl-2, Bcl-xl ve Figure 2B'de Bcl-w azalmıştır.
Figure 3'ün ana bulgusu
ROS sinyali 0, 2, 4 ve 8 saatlik zaman noktalarında genel olarak yükselen bir örüntü göstermiştir. GSH canlılığı doza bağlı biçimde kurtarmıştır. γH2AX, phospho-p53(Ser15), BIP ve CHOP artışı; PARP ve caspase-3 parçalanması; JC-1 kırmızı/yeşil oranındaki azalma birlikte DNA hasarı, ER stresi, mitokondri disfonksiyonu ve apoptotik yürütme mekanizmasını desteklemektedir.
Figure 4'ün ana bulgusu
Transcriptome analizi apoptosis ve oxidative-stress ilişkili gen programlarını doğrulamış; ferroptosis-associated genlerde de değişiklik göstermiştir. Sorafenib plazma sitotoksisitesini artırırken ferrostatin-1 kısmi rescue sağlamıştır. HeLa hücrelerinde Liperfluo sinyali lipid peroxidation artışını göstermiştir.
Supplementary Figure S2'ye ilişkin ana metin, DFO'nun hücre canlılığını veya lipid peroxidation'ı anlamlı biçimde kurtarmadığını bildirmektedir. Supplementary PDF kullanıcı tarafından ayrıca sağlanmadığından Verianla bu deneyin ham grafik değerlerini üretmemektedir.
Mekanizmanın Verianla için bağımsız yeniden inşası
Çalışmanın desteklediği sonuçlar
- N₂/O₂ plazmayla muamele edilmiş ortam araştırılan kanser hücrelerinde canlılığı azaltmıştır.
- İnsan primer fibroblastları in vitro karşılaştırmada kanser hücrelerinden daha az etkilenmiştir.
- c-PTIO sonucu reaktif azot türlerinin sitotoksik etkiye katkısını desteklemektedir.
- Hücre içi ROS artmış ve GSH hücre canlılığını kısmen/doza bağlı biçimde kurtarmıştır.
- Annexin V/PI, caspase-3 ve PARP sonuçları apoptozu desteklemektedir.
- γH2AX ve p53 Ser15 fosforilasyonu DNA damage response aktivasyonunu desteklemektedir.
- BIP ve CHOP artışı ER-stress/proteostatic-stress yanıtını desteklemektedir.
- JC-1 sonucu mitokondri membran potansiyelinin azaldığını göstermektedir.
- RNA-seq apoptosis ve oxidative-stress programlarını desteklemiştir.
- Ferrostatin-1'in kısmi rescue etkisi ve Liperfluo sonucu lipid peroxidation'ın hücre ölümüne katkısını desteklemektedir.
- DFO sonucunun kurtarma sağlamaması kanonik iron-dependent ferroptosis yorumuna karşıdır.
- Plazmayla muamele edilmiş PBS fare B16F10 tümör modelinde tümör büyümesini azaltmıştır.
Çalışmanın desteklemediği sonuçlar
- N₂/O₂ plazmasının insan kanser hastalarında etkili ve güvenli tedavi olduğu gösterilmemiştir.
- Bütün kanser türlerinin aynı duyarlılığa sahip olduğu gösterilmemiştir.
- Bütün normal insan dokularının tedaviden korunacağı gösterilmemiştir.
- İn vivo normal doku seçiciliği veya kapsamlı sistemik toksisite test edilmemiştir.
- Sistemik intravenöz veya intraperitoneal etkinlik gösterilmemiştir.
- Üretilen bütün ROS ve RNS türlerinin nicel kimyasal bileşimi belirlenmemiştir.
- Azot kaynaklı spesifik reaktif türlerin göreli biyolojik katkısı tam çözülmemiştir.
- Lipid peroxidation sonucu canonical ferroptosis kanıtı değildir.
- Sorafenib ve ferrostatin-1 sonuçları bütün ölüm mekanizmasının ferroptoz olduğunu göstermez.
- Lokal fare tedavisi insanlarda doku penetrasyonu veya klinik doz belirlemez.
Çalışmanın temel güçlü yönleri
Çalışma tek bir kanser hücre modeliyle sınırlı kalmamış; farklı doku kökenlerinden endometrial, servikal, melanoma ve akciğer kanseri modellerini birlikte değerlendirmiştir. Bu yaklaşım N₂/O₂ plazmasına yanıtın yalnız tek bir hücre hattına özgü olmadığını göstermeye yardımcı olmuştur.
İkinci güçlü yön, hücre ölümünün yalnız MTT canlılık azalmasıyla değerlendirilmemesidir. Annexin V/PI, apoptotik gen ekspresyonu, caspase/PARP parçalanması, DNA damage göstergeleri, ER-stress göstergeleri ve mitokondri membran potansiyeli birbirini tamamlayan bağımsız kanıt katmanları oluşturmuştur.
Üçüncü güçlü yön, oksidatif stres için yalnız ROS artışının gösterilmemesi; GSH ile rescue müdahalesinin yapılmasıdır. Böylece ROS ile sitotoksisite arasında işlevsel bağlantı güçlendirilmiştir.
Dördüncü güçlü yön, ferroptoz yorumunun yalnız ferroptosis-related gene set sonucuna bırakılmamasıdır. Sorafenib, ferrostatin-1, Liperfluo ve DFO deneyleri kullanılarak lipid peroxidation ile canonical ferroptosis birbirinden ayrılmıştır.
Beşinci güçlü yön, hücre kültürü sonuçlarının B16F10/C57BL/6 fare modeliyle in vivo tümör büyümesi düzeyinde ek olarak sınanmış olmasıdır.
Çalışmanın temel sınırlılıkları
Birinci sınırlılık: Normal hücre seçiciliği in vitro olarak yalnız insan primer fibroblastlarıyla değerlendirilmiştir. Farklı normal epitel, endotel, bağışıklık veya organ hücreleri sistematik olarak karşılaştırılmamıştır.
İkinci sınırlılık: İn vivo deney lokal uygulamaya dayanmaktadır. Normal organ histopatolojisi ve sistemik toksisite yapılmadığından fizyolojik güvenlik sınırı belirlenmemiştir.
Üçüncü sınırlılık: Reaktif türlerin bütün spektrumu karakterize edilmemiştir. NO/RNS için Griess/c-PTIO ve ROS için hücresel analiz yapılmasına rağmen spesifik nitrogen-derived reactive species'lerin tek tek katkısı bilinmemektedir.
Dördüncü sınırlılık: Mekanistik analizlerin tüm hücre modellerinde aynı derinlikte tekrarlandığı gösterilmemiştir. Bazı deneyler HEC1A, bazıları HeLa, B16F10 veya H1299 üzerinde yapılmıştır.
Beşinci sınırlılık: Çalışma klinik dozlama, doku penetrasyonu, pharmacodynamics ve uzun dönem tekrar uygulamalarını değerlendirmemiştir.
Altıncı sınırlılık: Article in Press sürümünde terminolojik/editoryal tutarsızlıklar bulunmaktadır: allograft/xenograft, intratumoral/subcutaneous enjeksiyon ifadesi, bazı Figure 2 legend görünümü ve Methods-heatmap biyolojik tekrar görünürlüğü gibi noktalar final dizgi öncesinde açıklığa kavuşabilir.
Yedinci sınırlılık: Supplementary Figure S1/S2 mevcut yüklenen ana PDF'nin tam bilimsel görsel gövdesinde bulunmadığından ek deneylerin ham grafikleri bu Verianla makalesinde yeniden üretilmemiştir.
Kaynak ve Yöntem Notu
Özgün başlık: Nitrogen-oxygen plasma induces selective cancer cell death via apoptosis with lipid-peroxidation-associated mechanisms across multiple cancer cell models.
Yazarlar ve sıra: Bum-Ho Bin, Sofia Brito, Sun Ju Park, Ki Bok Yoon, Hyojin Heo, Hantae Jo, Sehyun Chae, Byung Mook Weon, Sung Kweon Cho, Jiyoon Kim.
Eş katkı: Bum-Ho Bin, Sofia Brito ve Sung Kweon Cho.
Sorumlu yazar: Jiyoon Kim.
Kurum 1: Department of Biological Sciences, Ajou University, Suwon, Republic of Korea.
Kurum 2: The Anti-Aging Lab, Co. Ltd., Suwon, Republic of Korea.
Kurum 3: Department of Pharmacology, College of Medicine, The Catholic University of Korea, Seoul, Republic of Korea.
Kurum 4: Korea Research Institute of Bioscience & Biotechnology (KRIBB), Daejeon, Republic of Korea.
Kurum 5 için kaynak farkı: Article in Press PDF, Hantae Jo için Department of Neurosurgery, College of Medicine, The Catholic University of Korea, Seoul kaydını verir. Güncel Nature bibliyografik sayfası ise Department of Nuclear Medicine, Yonsei University College of Medicine, Seoul kaydını göstermektedir. Bu fark erken erişim sürümü ile güncel yayın metadata'sı arasında açıkça korunmuştur.
Kurum 6: Department of Smart Health Science and Technology, Kangwon National University, Chuncheon, Republic of Korea.
Kurum 7: Department of Biotechnology and Bioengineering, College of ACE, Kangwon National University, Chuncheon, Republic of Korea.
Kurum 8: School of Advanced Materials Science and Engineering, Sungkyunkwan University, Suwon, South Korea.
Kurum 9: Department of Pharmacology, Ajou University School of Medicine, Suwon, South Korea.
Kurum 10: Department of Medical Sciences, Graduate School, The Catholic University of Korea, Seoul, South Korea.
Kurum 11: Institute for Aging and Metabolic Diseases, College of Medicine, The Catholic University of Korea, Seoul, South Korea.
Dergi: Scientific Reports.
Yayınevi: Nature Portfolio / Springer Nature.
DOI: 10.1038/s41598-026-59131-4.
Alınma tarihi: 9 Mayıs 2025.
Kabul tarihi: 18 Haziran 2026.
Çevrimiçi yayın tarihi: 6 Temmuz 2026.
Kaynak türü ve hakemlik durumu: Hakem değerlendirmesinden geçmiş ve kabul edilmiş Scientific Reports araştırma makalesi; mevcut yüklenen PDF ve güncel Nature sayfası Article in Press/unedited early-access sürümü olarak işaretlenmiştir.
Version of Record durumu: Mevcut resmî sayfa bu sürümün son editoryal işlemlerden sonra otomatik olarak final Version of Record ile değiştirileceğini belirtmektedir; bu nedenle mevcut PDF final VOR olarak etiketlenmemiştir.
Cilt / sayı / makale numarası: Mevcut Article in Press PDF ve resmî erken erişim bibliyografik görünümünde nihai makale numarası açık biçimde verilmemektedir; Verianla bu alanı tahmin etmemiştir.
Lisans: Creative Commons Attribution 4.0 International (CC BY 4.0).
Çalışma türü: İn vitro hücre kültürü + moleküler mekanizma + transcriptomics + in vivo syngeneic murine melanoma tümör modeli.
Ana hücre modelleri: HEC1A, HeLa, B16F10, H1299 ve human primary fibroblasts.
Ana plazma cihazı: TGT, Daejeon, Korea tarafından sağlanan custom-built iki paralel elektrotlu plazma jet sistemi; bir elektrot seramik dielektrik kaplı; 5 kW ve 30 kHz high-voltage power supply; circulating water cooling.
Gaz parametreleri: N₂ 10 cc/min, O₂ 5 cc/min; 135.200 mm³ mixing chamber; kaynak aynı cümlede 225 V değerini verir fakat bu değerin yüksek-gerilim kaynağı parametreleriyle ilişkisini ayrıca açıklamaz.
RNS ölçümü: Nitrite Assay Kit / Griess Reagent; absorbans 540 nm, SpectraMax 190.
Varsayılan in vitro plazma uygulaması: Culture medium 10 dakika plazmayla muamele edilir; hücreler çoğunlukla 24 saat işleme alınır. Figure 1'de 0, 5 ve 10 dakikalık plazma işlem koşulları ayrıca bulunmaktadır.
Fare modeli: Dişi C57BL/6, n=9/grup; 1 × 10⁶ B16F10 hücresi; PBS:Matrigel 1:1; flank subcutaneous tumor establishment; yaklaşık 50 mm³'te randomizasyon.
Fare tedavisi: 100 µL PBS veya plasma-treated PBS; haftada beş kez, toplam 15 uygulama, 21 gün.
Enjeksiyon terminolojisi notu: Methods “subcutaneous injections”, Abstract ve Discussion ise “intratumoral administration” ifadesini kullanmaktadır. Kaynak farkı korunmuştur.
Tümör modeli terminolojisi notu: Methods B16F10/C57BL/6 sistemini syngeneic murine melanoma/allograft olarak tanımlar; Figure 1F caption “xenograft” kelimesini kullanır. Biyolojik model yapısı allograft tanımıyla uyumludur fakat Verianla kaynak metnindeki uyuşmazlığı saklamamaktadır.
Hayvan etik onayı: Semyung University Institutional Animal Care and Use Committee, Approval No. smecae 22-08-02; ARRIVE guidelines.
MTT: 1 × 10⁴ hücre/well, 96-well plate, absorbans 570 nm.
FACS: >10.000 hücre; Annexin V-FITC/PI apoptosis detection; BD FACSAria III; BD FACSDiva v8.0.3.
Lipid-peroksidasyon FACS: 1 µmol/L Liperfluo, 1 saat.
qRT-PCR: RNeasy Plus Mini Kit, AccuPower RT PreMix, SYBR Green, AriaMx Real-Time PCR System; GAPDH referans; ΔΔCt yöntemi.
Western blot hedefleri: γH2AX, BIP, CHOP, PARP, caspase-3, p53 ve phospho-p53(Ser15).
RNA-seq: RIN >9; Poly(A)+ mRNA; TruSeq Stranded mRNA LT Sample Prep Kit; Illumina NovaSeq 6000; Macrogen; kaynak Methods her koşul için üç biyolojik tekrar bildirir.
DEG kriterleri: adjusted p≤0.05 ve |log₂ fold-change|>0.428; kaynak bunu yaklaşık 1.35-fold eşiği olarak tanımlar.
Holotomography: Tomocube HT-2H; TomoStudio; ImageJ2; 1 µmol/L Liperfluo veya kaynakta 1 mM olarak basılan JC-1.
Ferroptoz modülatörleri: Sorafenib 1 µM; ferrostatin-1 10 µM; DFO konsantrasyonu ana PDF'nin ilgili ana metninde kesin olarak verilmemiştir ve Verianla tarafından uydurulmamıştır.
İstatistik: En az üç bağımsız deney; mean±SEM; two-tailed Student's t-test veya one-way ANOVA + Tukey post-hoc; P<0.05.
Ana ölüm mekanizması: Apoptoz; oxidative-stress-associated lipid peroxidation ek katkı sağlar.
Ferroptoz sınırı: Kanonik iron-dependent ferroptosis desteklenmemektedir; DFO rescue sağlamamış, Slc7a11/Slc7a5 yükselmiş ve Acsl4 azalmıştır.
Data availability: Raw ve processed RNA-seq verileri GEO GSE231561 altında depolanmıştır.
Finansman: Ajou University Research Fund; National Research Foundation of Korea Basic Science Research Program, RS-2021-NR060141 ve RS-2024-00405790; Korea Health Technology R&D Project/KHIDI, RS-2025-25459560.
Yazar katkıları: Sofia Brito ve Bum-Ho Bin çalışmayı tasarladı. Hyojin Heo, Ki Bok Yoon, Hantae Jo ve Sehyun Chae araştırma ve veri toplama yürüttü. Sofia Brito, Sun Ju Park ve Sung Kweon Cho formal analysis ve visualization gerçekleştirdi. Byung Mook Weon metodoloji ve teknik kaynak desteği verdi. Jiyoon Kim ve Bum-Ho Bin kaynak sağlama, supervision ve yorumlama görevlerini üstlendi. Sofia Brito ve Bum-Ho Bin özgün taslağı yazdı; Sun Ju Park, Sung Kweon Cho ve Jiyoon Kim metni gözden geçirip düzenledi.
Çıkar çatışması: Yazarlar competing interests olmadığını bildirmiştir.
Supplementary-material sınırı: Ana PDF Figure S1 ve Figure S2'ye atıf yapmaktadır. Kullanıcı tarafından ayrı supplementary dosya verilmediği için bu Verianla sürümü yalnız ana PDF'nin bu ek deneyler hakkında açıkça bildirdiği sonuçları kullanır; ek şekillerden görünmeyen yeni sayı çıkarmaz.
Figure 2 erken-sürüm notu: Figure 2A'nın ana metni ve FACS panelleri kanser hücresinde daha güçlü apoptosis yorumunu desteklerken bar-graph legend/dolgu görünümü Article in Press baskısında metinle tam uyumlu görünmemektedir. Bu nedenle kesin yüzde değerleri yeniden üretilmemiştir.
RNA-seq tekrar notu: Methods her koşul için üç biyolojik tekrar bildirirken Figure 4D heatmap görünür biçimde iki kontrol ve iki plasma satırı göstermektedir. Kaynak bu farkı açıklamamaktadır.
Klinik sınır: İnsanlarda tedavi denenmemiştir. İn vivo veri lokal B16F10/C57BL/6 fare modeline aittir; systemic exposure, organ toxicity, normal-tissue histopathology ve human therapeutic efficacy gösterilmemiştir.
Bir yorum bırakın
E-posta adresiniz yayınlanmayacaktır. Gerekli alanlar * ile işaretlenmiştir